
Образование субстратов и метаболитов в пищеварительном тракте коров при нормированном кормлении (Калашников А.П. и др., 1994) в зависимости от структуры рациона (г/сут на голо ву)
Образование субстратов и метаболитов в пищеварительном тракте коров при нормированном кормлении (Калашников А.П. и др., 1994) в зависимости от структуры рациона (г/сут на голову)
Субстраты | Тип рациона | |||||
Сено- конц. | силосно- сено-конц. | силосно- сено- конц. | зеленый корм с концентратами | сено-конц. сухостой | ||
50:50 | 65(конц.) 20(свек.) 15(груб.) | 30(конц.) 5(свекла) 65(груб.) | 50(конц) 50(зел) | 30 (конц.): 70 (зел.) | 35 (конц.): 65(сено) | |
Аминокислоты | 1486 | 1135 | 1142 | 1243 | 1182 | 965 |
Глюкоза | 800 | 771 | 687 | 761 | 658 | 518 |
Ацетат | 3520 | 2820 | 2840 | 2760 | 2800 | 2076 |
Пропионат | 1710 | 1440 | 1280 | 1320 | 1280 | 960 |
Бутират | 811 | 666 | 619 | 624 | 613 | 462 |
Высшие жирные кислоты | 153 | 193 | 208 | 251 | 253 | 104 |
Обменная энергия, МДж* | 165 | 127,8 | 125 | 132 | 130 | 97 |
Энергия всасывающихся субстратов, МДж | 160 | 133 | 128 | 133 | 130 | 96,5 |
* Фактические данные, полученные в балансовых опытах.
Сравнение переваренного сухого вещества во всем пищеварительном тракте с суммой образованных субстратов и метаболитов так же дает сопоставимые результаты (табл. 40,41).
К настоящему времени еще остается ряд вопросов, требующих дальнейших исследований. Необходимо уточнить стехиометрические коэффициенты образования основных ЛЖК при ферментации различных исходных компонентов. Требуется также проводить стандартизацию кормов, используемых в опытах как по сортам, так и по классам, для более точного применения полученных ранее закономерностей.
Таблица 40
Образование субстратов и метаболитов в пищеварительном тракте коров
Показатели, г | Рацион с низкой распадаемостью протеина и крахмала | Рацион с высокой распадаемостью протеина и крахмала |
Ацетат | 3265 | 3261 |
Пропионат | 1470 | 1450 |
Бутират | 896 | 913 |
Аммиак | 108 | 127 |
Глюкоза | 873 | 709 |
Аминокислоты | 1215 | 1022 |
Жирные кислоты | 405 | 482 |
СН4 | 304 | 314 |
СО2 | 1403 | 1450 |
Сумма образованных субстратов и метаболитов | 10600 | 10300 |
Видимо переваренное сухое вещество | 10480 | 9930 |
На основе представленных подходов и выявленных закономерностей произведен расчет образования субстратов или конечных продуктов переваривания питательных веществ кормов на рационах с различным уровнем концентрированных кормов по питательности от 30 до 60% или с изменением соотношения субстратов в пищеварительном тракте за счет непрерывной инфузии чистых питательных веществ в пищеварительный тракт в различных опытах (табл. 41, 42, 43). Соотношение субстратов, определенное нами, соответствует данным, имеющимся в литературе (Baldwin, 1987, 1995; Flachowsky, 1998). На основе анализа эффективности использования ОЭ и обменного белка на продуктивные цели будут выявляться оптимальный состав ОЭ и формулироваться рационы, обеспечивающие их образование.
Таблица 41
Образование субстратов в пищеварительном тракте коров по периодам опытов из кормов рациона и из инфузируемых веществ (% по энергии от суммы всосавшихся субстратов)
Периоды опыта | Образованные субстраты, г | |||||
ацетат | пропионат | бутират | глюкоза | амин.- ты | ВЖК | |
Сено-силосно-конц, удой 17кг, 44% концентр. | 30,4 | 20,6 | 11,1 | 8,2 | 22,2 | 7,2 |
+ инфузия ВЖК | 28,5 | 19,3 | 10,3 | 7,6 | 21,1 | 13,2 |
+ инфузия казеин | 28,8 | 19,4 | 10,4 | 8,4 | 26,4 | 7,5 |
+ инфузия каз+ацетат | 31,0 | 19,0 | 10,2 | 7,4 | 25,1 | 7,3 |
Сено-силосно-конц., удой 21кг. 46% концентр. | 30,0 | 20,3 | 10,8 | 9,0 | 22,3 | 7,6 |
+ инфузия ацетата | 33,9 | 19,5 | 10,4 | 7,8 | 21,3 | 7,1 |
+ инфузия глюкозы | 28,7 | 19,4 | 10,3 | 13,1 | 20,9 | 7,5 |
+ инфузия каз+глюкозы | 28,3 | 19,0 | 10,1 | 10,4 | 24,7 | 7,4 |
+ инфузия казеина+ВЖК | 27,2 | 18,5 | 9,8 | 7,7 | 24, | 12,1 |
Таблица 42
Образование субстратов в пищеварительном тракте коров по периодам опытов из кормов рациона и из инфузируемых веществ (% по энергии от суммы всосавшихся субстратов)
Периоды опыта | Образованные субстраты, г | |||||
ацетат | пропио-нат | бути-рат | глюкоза | аминокислоты | ВЖК | |
Сено-сил.-кон., конец лактации, удой 5кг, 40% концентратов | 30,9 | 20,4 | 11 | 8,8 | 21,7 | 6,9 |
+ инфузия казеина | 29,7 | 19,6 | 10,6 | 8,4 | 24,7 | 6,6 |
+ инфузия ацетата | 33,9 | 19,5 | 10,6 | 8,4 | 20,8 | 6,6 |
+ инфузия глюкозы | 29,6 | 19,5 | 10,6 | 12,6 | 20,8 | 6,6 |
Сено-сил.-кон.-нетели-30% конц. | 31,7 | 20,2 | 11,2 | 8,7 | 21,1 | 6,8 |
+ инфузия казеина | 30 | 19,1 | 10,6 | 8,2 | 25,2 | 6,5 |
+ инфузия ацетата | 35,7 | 19 | 10,5 | 8,2 | 19,9 | 6,4 |
Сено-сил.-кон. начало лактации, удой 15кг, 48% конц. | 30,4 | 20,7 | 11,1 | 9,2 | 21,6 | 6,6 |
+ инфузия ацетата | 33,4 | 19,8 | 10,7 | 8,8 | 20,7 | 6,4 |
+ инфузия пропионата | 29,2 | 24 | 10,7 | 8,8 | 20,7 | 6,4 |
+ инфузия глюкозы | 29,2 | 19,8 | 10,7 | 12,9 | 20,7 | 6,4 |
+ инфузия казеина | 29,3 | 19,9 | 10,7 | 8,8 | 24,5 | 6,4 |
+ инфузия казеина + пропионата | 28,5 | 22,1 | 10,4 | 8,6 | 23,8 | 6,2 |
Таким образом, на основании проведенных исследований конкретным законченным результатом работы можно считать создание алгоритма расчетов образования субстратов в пищеварительном тракте коров, как на основе прямых опытов, так и по установленным в многочисленных опытах закономерностях переваривания основных питательных веществ. На основе этого возникла реальная возможность проводить определение всего спектра образованных субстратов на типичных рационах со стандартным набором кормов. Правильность расчетов была проверена как по сумме всасывающихся субстратов, так и по СВ.
Таблица 43
Образование субстратов в пищеварительном тракте коров по периодам опытов из кормов рациона и из инфузируемых веществ (% по энергии от суммы всосавшихся субстратов)
Периоды опыта | Образованные субстраты, г | |||||
ацетат | пропио-нат | бути-рат | глюкоза | аминокислоты | ВЖК | |
Опыт с инфузией субстратов | ||||||
Сено-сил.-конц., начало лактации, удой 13кг, 60% концентратов | 28,8 | 20,4 | 10,6 | 9,6 | 23,5 | 7,0 |
+ инфузия ВЖК | 28,0 | 19,8 | 10,2 | 9,3 | 22,8 | 9,7 |
+ инфузия ацетата | 31,0 | 19,8 | 10,2 | 9,3 | 22,8 | 6,8 |
+ инфузия глутамата | 28,6 | 20,2 | 10,5 | 9,5 | 24,1 | 7,0 |
+ инфузия смеси изо-кислот | 28,8 | 20,4 | 10,6 | 9,6 | 23,5 | 7,0 |
Опыт с рационами | ||||||
Сено-сил.-конц. начало лактации, удой 15кг, основа- ячмень, 50% концентр. | 30,7 | 20,4 | 10,8 | 8,3 | 22,2 | 7,5 |
Основа-кукуруза | 30,0 | 20,1 | 10,7 | 8,5 | 21,9 | 8,6 |
Добавка кормового жира | 29,2 | 19,4 | 10,3 | 7,9 | 21,1 | 12,0 |
30% концентратов | 31,9 | 20,4 | 11,0 | 7,6 | 21,0 | 8,1 |
60% концентратов | 29,3 | 20,5 | 10,6 | 8,7 | 23,5 | 7,3 |
Для точного расчета образования и всасывания конечных продуктов переваривания требуется расширенная характеристика кормов не только по химическому составу, но и по доступности их к перевариванию. Результаты этих исследований показали, что состав рациона оказывает влияние на показатели распадаемости СВ, СП, крахмала и фракций клетчатки в рубце. Предлагается при составлении рационов применять значения показателей распадаемости, полученные на том же типе рациона, который планируется использовать, или вводить поправочные коэффициенты.
Наряду с определением количества и соотношения субстратов, необходимых животным, встают вопросы направленного регулирования их образования. Естественно, главным регулятором должен быть корм. По приведенным данным соотношение субстратов в основном зависит от соотношения грубых и концентрированных кормов в рационе, от переваримости входящих в них питательных веществ. На соотношение ЛЖК оказывает влияние технология кормления – кратность дачи кормов, непрерывное кормление. Существенным регулирующим моментом может быть физическая форма корма – измельчение, гранулирование, брикетирование. Качество протеина и углеводный состав оказывают прямое влияние на уровень и состав субстратов.
Регулирующего эффекта можно добиться и физико-химической предварительной обработкой кормов. Широко известны методы, предотвращающие распад протеина в преджелудках. Добавками, регулирующими процессы в преджелудках и оказывающими влияние на потребление и переваримость кормов, могут быть вещества и не кормовой природы. Сюда можно отнести буферные смеси различного состава, регулирующие рН рубцового содержимого в необходимых пределах.
Литература к главе 4
Новая протеиновая система оценки и нормирования протеина. Боровск, 1989
Рекомендации по использованию и нормированию жиров в кормлении сельскохозяйственных животных, М., 1987,40с.
Baldwin R.L. Modeling ruminant digestion and metabolism. Charinan &Hall, 1995, London
Baldwin R.L., France J., Beever D.E., Gill M., Thornley J.H.M. Metabolism of the lactating cow.3. Properties of mechanistic models suitable for evaluation of energetic relationships and factors involved in the partition of nutrients. J.Dairy Res.- 1987.-V.54.-P.133-150
Clapperttone J.L. Effect of concentrates with beef tallow on food intake and milk production of cоws fed grass silage. J. Dairy Sci. 66.1032-1038.
Clapperttone J.L., Steele W. 1983. Fat supplemention in animal production-ruminsnts. Procc. Of Nutr. Soc. 42.343-350.
Flachowsky G., Kirchgessner M. The energetic feed evaluation in Germany.Arch. Anim. Nutr,-1998.-V.51.-P.111-125
Gooden J.M. Lascelles A.K. 1973. Effect of dietary protected lipid on the uptake of precursors of milk fat by the bovine mammary gand. Austr. J.m Biolog. Sci. 26.1201-1210.
Heinrichs A.J. et. al. 1982. Feed intake patterns of cows fed high fat grain mixtures. J. Dairy Sci. 65.1325.1328
Kowalcyzk J. Et. Al. 1977 Effect of fat supplemention on voluntary food intake and rumen metabolism in sheep. Br. J. of Nutr. 37.251-257.
Macleod G.K. 1977. Feeding value of protected animal tallow for high yielding dairy cows. J. Dairy Sci. 60.726-738.
Mattias W.et. al. Effect of feeding animal fat to dairy cows in early lactation. J. Dairy Sci. 65 (Sappl.1), 151.
Metz S.H.M., Van Den Bergh S.G. 1977. Regulation of fat mobilization in adipose tissue of dairy cows in the period around parturition. Nether. J. Agr. Sci. 25.198-211.
Moore J.H.,., Christie W.W. 1981. Lipid metabolism in the mammary gland of ruminant animals. In: Lipid metabolism in ruminant animals. (w.W. Christie, Ed.) pp.227-277. New. York, Pergamon Press.
Murphy M.R., Baldwin R.L. and Koong LJ. (1982) Estimation of stoichiometric parameters for rumen fermentation of roughage and concentrate diets. Journal of Animal Science 55, 411—421
Ostergaard V. et. Al. 1981. The effect of dietary lipids on milk production in dairy cows. Copenhagen, beretning fra stations Husdyrbrugs Forsog 508.
Palmquist D.L. 1981. Metabolite, insulin and growth hormone concentration in blood plasma of cows fed high fat diets for entire lactations. J. Dairy Sci. 64 (Sappl),159.
Palmquist D.L. et. Al. 1978. High fat rations for dairy cows. Effects on feed intake, milk and fat production, and plasma metabolites. J. of Dairy Sci. 61.890-901
Palmquist D.L., Moser E.A. 1981. Dietary fat effect on blood insuline, glucose utilization and milk protein content of lactating cows. J. Dairy Sci. 64.1664.1670.
Rindsing R.B., Schultz L.H. 1974. Effect of feeding lauric acid to lactating cows on milk composition, rumen fermentation, and blood lipids. J. Dairy Sci. 57.1414-1418.
Selner D.R., Schultz L.H. 1980. Effects of feeding oleic acid or hydrogenated vegetable oils to lactating Holstein cows. J. Dairy Sci. 63.1235-1241.
Smith N.E. et. al. 1978 Effects of feeding protected tallow to dairy cows in early lactation. J. Dairy Sci. 61.747-756.
Storry J.E. et. Al. 1973. The effects of incrising amounts of dietary tallow on milk-fat secretion in the cow. J. Dairy Res. 40.293-299.
Yang Y.T. , Baldwin R.L. 1973 Lipolysis in isolated cow adipose cells. J. Dairy Sci. 56.366-374.
Yang Y.T. et. Al. 1978 Effects of long supplementation with lipids on lactating dairy cows. J. Dairy Sci.61.180-188.
5. Экспериментальная проверка эффективности нормирования питания коров с учетом субстратного обеспечения метаболизма
Следующим этапом исследований являлась оценка эффективности нормирования питания лактирующих коров на основе оптимизации рационов по количеству и соотношению конечных продуктов переваривания.
5.1. Экспериментальная проверка эффективности применения новых норм в доступных питательных веществах в условиях вивария
Продолжение · 18
На основании фундаментальных физиолого-биохимических исследований, проведенных во ВНИИФБиП в предыдущие годы, установлено, что для эффективного синтеза компонентов молока требуется определенное соотношение субстратов, поступающих из желудочно-кишечного тракта в метаболический фонд. Было показано, что увеличение доли высших жирных кислот (ВЖК) в составе обменной энергии (ОЭ) приводит к повышению эффективности молокообразования за счет увеличения поступления в секреторные клетки молочной железы готовых предшественников для синтеза молочного жира. В частности, для коров в начале лактации и при продуктивности около 20кг/сут молока оптимальный состав ОЭ с учетом энергетического вклада ацетата, пропионата, бутирата, глюкозы, аминокислот и ВЖК должен быть представлен следующим их соотношением: 30; 18; 10; 8,5; 23,5 и 10%. На основании полученных экспериментальных данных обоснованы оптимальные потребности в основных субстратах у коров для достижения высокой эффективности биоконверсии питательных веществ корма в молочную продукцию.
Главной задачей исследований было оценить в условиях вивария института эффективность нового способа нормирования питания лактирующих коров, заключающегося в оптимизации рационов по количеству и соотношению конечных продуктов переваривания.
Цель исследований: оптимизировать состав обменной энергии и обменного протеина рационов для коров в начале и середине лактации на основе ранее установленных параметров. В задачи исследований входило:- изучить особенности обмена энергии в организме лактирующих коров и определить эффективность использования обменной энергии на производство молока в разные периоды начала лактации при оптимизированном и неоптимизированном составе обменной энергии и обменного протеина; установить поглощение метаболитов углеводно-липидного обмена молочной железой коров в зависимости от сбалансированности рационов в разные фазы лактации (в начальный период, разгар и середине лактации); определить гормональный статус у коров в зависимости от сбалансированности рационов в разные фазы лактации (в начальный период, разгар и середине лактации) и изучить его связь с продуктивностью животных; определить количественные аспекты всасывания конечных продуктов переваривания кормов у коров в зависимости от сбалансированности рационов в разные фазы лактации (в начальный период, разгар и середине лактации); уточнить потребность коров в незаменимых аминокислотах в зависимости от сбалансированности рационов в разные фазы лактации.
Экспериментальная проработка поставленных задач осуществлялась методом групп-периодов в опытах на половозрелых высокопродуктивных коровах в первые месяцы лактации (30-130 день лактации). Коровы были хирургически подготовлены к опытам путем имплантации лодочки на сонную артерию и канюль на рубец и 12-ти перстную кишку. Во все периоды эксперимента коровы получали рацион с содержанием концентрированных кормов на уровне 55%. Кормление было трехразовым.
Проведено четыре периода опыта на 25-й, 55-й, 85-й и 120-й дни лактации. Образцы крови сонной артерии и молочной вены отбирали пункцией сосудов до кормления, через 3 часа и через 8 после утреннего кормления). Для определения всасывания субстратов из пищеварительного тракта на основном рационе проведен баланс на уровне ЖКТ и 12-ти перстной кишки. Определено поступление из преджелудков СВ, ОВ, микробного и кормового протеина, аммонийного азота, липидов, ВЖК, крахмала, фракций клетчатки и их переваривание в кишечнике.
После отела коровы получали одинаковые рационы (в состав комбикорма входили корма с высокой распадаемостью протеина и крахмала) до 25 дня. В это время был проведен респирационные исследования. В дальнейшем, на основании учета живой массы и суточного удоя коровы были разделены на две группы. Обе группы получали изоэнергетические рационы (табл.44, 45), различающиеся составом комбикормов (табл.46), что обеспечивало разный набор образования конечных продуктов переваривания. Заключительный период (90-120день лактации) проведен на одинаковых рационах.
Таблица 44
Рационы кормления коров опытной группы
Корма, кг | 1 период – 10-25-й-день лактации | 2 период – 25-55-й день лактации | 3 период – 55-85-й день лактации | 4 период – 85-115-й день лактации |
Сено | 4,5 | 4,5 | 4,5 | 4,5 |
Силос разнотравный, | 15 | 15 | 18 | 21 |
Патока кормовая | 0 | 1,5 | 1,5 | 1,5 |
Комбикорм | 8,4 | 9,0 | 9,0 | 8,4 |
Таблица 45
Рационы кормления коров контрольной группы
Корма, кг | 1 период 10-25-й день лактации | 2 период 25-55-й день лактации | 3 период 55-85-й день лактации | 4 период 85-115-й день лактации |
Сено | 4,5 | 4,5 | 4,5 | 4,5 |
Сенаж разнотравный | 15 | 15 | 18 | 21 |
Патока кормовая | 0 | 1,5 | 1,5 | 1,5 |
Комбикорм | 8,4 | 9,9 | 10,5 | 8,4 |
Таблица 46
Состав комбикормов по периодам опыта (%)
Корма | Периоды опыта | |||||||
Опыт | контроль | |||||||
1 | 2 | 3 | 4 | 1 | 2 | 3 | 4 | |
Кукуруза | 8,3 | 18 | ||||||
Ячмень | 40 | 29 | 27 | 45,4 | 40 | 40,1 | 45,4 | 45,4 |
Пшеница | 18 | 14,1 | 14 | 25,6 | 18 | 23,2 | 25,6 | 25,6 |
Отруби пшеничные | 13,5 | 6,2 | 10 | 13,5 | ||||
Соевый шрот | 15,3 | 12 | 15 | 10,7 | 15 | 15 | ||
Кукурузный жмых | 17,8 | 13,4 | ||||||
Кукурузный глютен | 0,83 | 0,5 | 0 | 0 | 0 | |||
Кровяная мука | 2,1 | 8 | 0 | 0 | 0 | |||
Рыбная мука | 2,0 | |||||||
Подсолнечный шрот | 25 | 0 | 10 | 25 | 8,9 | 10 | 10 | |
Жир | 2,1 | 3 | 0 | |||||
Мочевина | 0,83 | 1,5 | ||||||
Премикс П-60-3 | 1 | 0,83 | 1 | 1 | 1 | 0,9 | 1 | 1 |
Соль поваренная | 1 | 1,25 | 1 | 1,5 | 1,5 | 1,3 | 1,5 | 1,5 |
Трикальций фосфат | 1,5 | 1,25 | 1,5 | 1,5 | 1,5 | 1,3 | 1,5 | 1,5 |
На 55-й и 8-й5 и 115 дне лактации проведены балансовые опыты, респирационные исследования, отбор проб крови, рубцового и дуоденального содержимого.
Каждая группа коров содержалась на рационах с оптимальным содержанием доступных питательных веществ в рационе (нераспадаемый протеин, фракции клетчатки, распадаемый и нераспадаемый крахмал, липиды) для данной фазы лактации и данного уровня молочной продуктивности (табл. 47, 48). В плазме артериальной крови лактирующих коров определена концентрация гормонов: инсулина, тироксина, трийодтиронина с целью выявления взаимосвязей этих гормонов с потоками метаболитов из желудочно-кишечного тракта при разном соотношении у коров. Определяли артерио-венозную разница метаболитов по молочной железе и эффективность их поглощения (глюкоза, ЛЖК, кетоновые тела, НЭЖК, триацилглицеролы, ВЖК, свободные аминокислоты и мочевина (Методы биохимического анализа, Боровск, 1997).
Таблица 47
Состав рационов по фактической поедаемости (г)
№ рационов | СВ (кг) | Зола | Сырая клетчатка | Жир | Лигнин | Гемицеллюл. | Целлюлоза | СП | НДК |
1-к | 16,5 | 1253,9 | 3715,6 | 436,8 | 1222,1 | 3139,8 | 2973,2 | 2182,7 | 7335,2 |
1-о | 16,4 | 1248,6 | 3690,6 | 435,5 | 1214,5 | 3125,0 | 2956,8 | 2178,8 | 7296,4 |
2к | 18,9 | 1033,7 | 3883,3 | 614,3 | 1315,7 | 3105,5 | 3030,3 | 2527,5 | 7451,5 |
2о | 18,3 | 1027,1 | 3878,2 | 699,9 | 1347,1 | 3006,4 | 2972,5 | 2477,0 | 7326,0 |
3к | 19,8 | 1478,7 | 4272,9 | 479,7 | 1348,2 | 3486,0 | 3262,5 | 2698,7 | 8096,6 |
3о | 19,1 | 1321,4 | 4359,6 | 780,9 | 1298,4 | 3541,7 | 3250,5 | 2919,9 | 8090,6 |
4к | 19,4 | 1510,3 | 4539,6 | 485,1 | 1473,0 | 3620,7 | 3502,2 | 2555,9 | 8595,9 |
4о | 19,1 | 1472,8 | 4401,2 | 477,2 | 1432,1 | 3554,1 | 3425,8 | 2535,9 | 8411,9 |
Таблица 48
Содержание питательных веществ по периодам опыта от СВ рационов (%)
№ рационов | Зола | Сырая клетчатка | Жир | Лигнин | Гемицеллюл. | Целлюлоза | СП | НДК |
1-к | 7,6 | 22,5 | 2,6 | 7,4 | 19,0 | 18,0 | 13,2 | 44,5 |
1-о | 7,6 | 22,5 | 2,7 | 7,4 | 19,1 | 18,0 | 13,3 | 44,5 |
2-к | 5,5 | 20,5 | 3,2 | 6,9 | 16,4 | 16,0 | 13,4 | 39,3 |
2-о | 5,6 | 21,2 | 3,8 | 7,4 | 16,5 | 16,3 | 13,5 | 40,1 |
3-к | 7,5 | 21,6 | 2,4 | 6,8 | 17,6 | 16,5 | 13,6 | 40,9 |
3-о | 6,9 | 22,8 | 4,1 | 6,8 | 18,5 | 17,0 | 15,3 | 42,4 |
4-к | 7,8 | 23,4 | 2,5 | 7,6 | 18,7 | 18,1 | 13,2 | 44,3 |
4-о | 7,7 | 23,0 | 2,5 | 7,5 | 18,6 | 17,9 | 13,3 | 44,0 |
Базовый рацион подопытных животных состоял из сена 20%, силоса –30% и концентратов-50% по питательности (табл.49).
Таблица 49
Структура рационов (% от СВ)
Корма | Периоды опыта | |||||||
Опыт | Контроль | |||||||
1 | 2 | 3 | 4 | 1 | 2 | 3 | 4 | |
грубые корма | 55,1 | 49,8 | 53,5 | 57,5 | 55,1 | 47,6 | 49,9 | 57,5 |
концентраты | 44,9 | 45,5 | 42,1 | 38,2 | 44,9 | 47,8 | 45,9 | 38,2 |
патока | 0 | 4,67 | 4,36 | 4,2 | 0 | 4,46 | 4,07 | 4,2 |
Рационы коров контрольной и опытной группы до 25-го дня лактации были идентичными, в состав комбикорма включали компоненты с высокой доступностью для переваривания в рубце. В результате на 25-й день лактации потребление сухого вещества составило 3,3кг на 100кг живой массы.
В дальнейшем коровы контрольной группы получали рацион согласно норм потребности, разработанных ВНИИФБиП (Физиологические потребности в питательных веществах и нормирование питания молочных коров., Боровск., 2001) . Рацион коров опытной группы был составлен с учетом субстратной характеристики обменной энергии и аминокислотного состава обменного протеина (приложение 1,2). Коровы обеих групп получали одинаковое количество обменного протеина, а в опытной группе валовой и обменной энергии было на 6% меньше. В составе ОЭ рационов опытной группы больше содержалось ВЖК (на 40%), аминокислот и глюкозы (на 3-5%) и меньше ЛЖК на 8%. Это обеспечивало поступление в организм коров, при меньшем содержании комбикорма в рационе (на 10%) одинаковое количество аминокислот и глюкозы (табл.50, 51).
Таблица 50
Образование субстратов в пищеварительном тракте коров по периодам опытов из кормов рациона (г)
Периоды опыта, день лактации | Образованные субстраты, г | |||||
ацетат | пропионат | бутират | глюкоза | аминокислоты | ВЖК | |
1 период, 25 –й день | 3034,1 | 1523,0 | 688,4 | 601,1 | 1158,7 | 331,9 |
2 период, 55 –й контроль | 3579,4 | 1718,2 | 820,8 | 756,3 | 1709,0 | 415,6 |
2 период, 55 –й опыт | 3224,2 | 1550,5 | 778,4 | 763,8 | 1725,5 | 518,7 |
3 период, 85 –й контроль | 3853,6 | 1939,3 | 926,6 | 872,0 | 1740,6 | 349,5 |
3 период, 85 –й опыт | 3288,0 | 1621,6 | 774,2 | 797,6 | 1741,8 | 514,0 |
4 период, 115-й день | 3755,2 | 1811,9 | 880,2 | 690,6 | 1573,4 | 337,7 |
Состав обменного протеина у коров опытной группы обеспечивал потребность коров в незаменимых аминокислотах, а в контрольной обеспеченность составляла 80-90%, за счет разного состава комбикормов. Ранее проведенные исследования показали, что увеличение в составе ОЭ энергетической доли ВЖК приводит к повышению эффективности молокообразования. Поэтому рацион коров опытной группы содержал на 4,8 МДж ОЭ меньше. На 55-й, 85-й и 115-й день лактации проводили балансовые опыты по изучению переваримости в преджелудках и кишечнике, обмена энергии, определяли поглощение метаболитов крови молочной железой и исследовали гормональный статус. С 85-го по 115-й день лактации коровы обеих групп получали идентичные рационы.
Таблица 51
Образование субстратов в пищеварительном тракте коров по периодам опытов из кормов рациона (% по энергии от суммы всосавшихся субстратов)
Продолжение · 19
Периоды опыта | Образованные субстраты, % | ||||||
ацетат | пропионат | бутират | глюкоза | аминокислоты | ВЖК | ||
1 период, 25 –й день | 30,61 | 21,86 | 11,85 | 6,80 | 19,71 | 9,17 | |
2 период, 55 –й контроль | 29,11 | 19,89 | 11,39 | 6,90 | 23,45 | 9,26 | |
2 период, 55 –й опыт | 26,99 | 18,47 | 11,12 | 7,17 | 24,36 | 11,90 | |
3 период, 85 –й контроль | 29,49 | 21,12 | 12,10 | 7,48 | 22,47 | 7,33 | |
3 период, 85 –й опыт | 27,05 | 18,98 | 10,87 | 7,35 | 24,17 | 11,59 | |
4 период, 115 | 30,81 | 21,15 | 12,32 | 6,35 | 21,77 | 7,59 | |
После того как группы коров стали получать различные рационы, молочная продуктивность в опытной группе стала возрастать по сравнению с опытной. На пике молочной продуктивности удой в опытной группе составил 28,9±0,87 кг, а в контрольной 27,6±1,63 кг (4,7%). На 55-й день разница в продуктивности составила 15,7%, на 85-й-12,5%, на 115-й день при идентичных рационах разница сохранилась (12,5%) и даже на 153-й день (19,6%) в пользу опытной группы (рис.9).
Рис.9. Молочная продуктивность коров в начале лактации.
Коровы контрольной группы в течение двух месяцев лактации теряли по 15 кг живой массы, а затем восстанавливали ее по 0,63кг в сут в течение третьего месяца и по 0,13кг в четвертый. Коровы опытной группы за второй месяц потеряли всего 5,5 кг, а восстанавливали массу по 0,4кг в сут за третий месяц и по 0,06кг за четвертый (рис.10). Таким образом, динамика изменения живой массы коров опытной группы была более сглаженной.
Рис.10 Динамика изменения живого веса коров в опыте
Установлено, что на 55-й день в крови коров обеих групп концентрация инсулина в сыворотке крови коров существенно возрастала, как после первого, так и после второго приема корма (рис.11). Это свидетельствует, что к концу второго месяца лактации наступила активация функциональной активности инсулярного аппарата поджелудочной железы, что оказало влияние на перераспределение потоков метаболитов в инсулинзависимые органы и ткани лактирующих коров. Отмечено также существенное снижение концентрации трийодтиронина в крови коров, что свидетельствует о торможении мобилизации жировых депо. В то же время если у контрольных животных выброс инсулина после приема корма превышал исходный уровень в 2,6 раз, то у опытных – только в 1,38 раза.
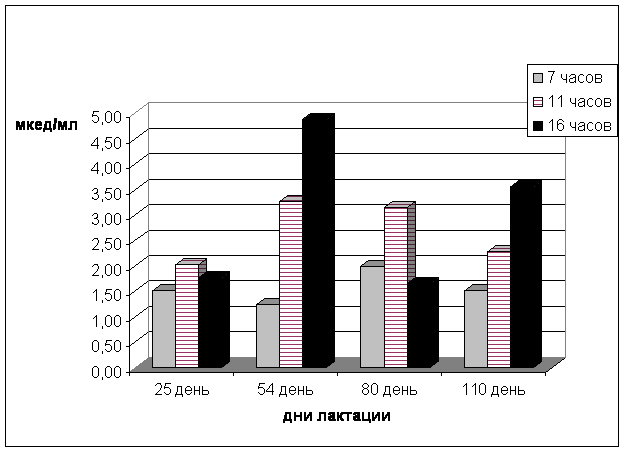
Указанные различия в темпах мобилизации у коров контрольной и опытной групп связаны с разным составом обменной энергии, в основном за счет большей долей ВЖК в опытной группе. В результате в артериальной крови у них всегда наблюдали повышенное содержание триацилглицеролов по сравнению с контрольными животными (рис.12).
Рис. 12 Процентное отношение среднесуточной артериальной концентрации триацилглицеролов в опытной группе к контрольной.
В предыдущих исследованиях нами показано, что по ходу лактации у коров снижается использование ВЖК в энергетическом обмене и увеличивается доля использования ацетата. В текущих исследованиях отмечена аналогичная закономерность по использованию этих субстратов и молочной железой. По ходу лактации поглощение триацилглицеролов и НЭЖК снижается, а ацетата и бутирата увеличивается, в основном за счет изменения эффективности поглощения этих метаболитов.
За счет более равномерной мобилизации жировых депо из организма коров опытной группы, доля неэстерефицированных жирных кислот (НЭЖК) от суммы поглощенных молочной железой липидных компонентов во все периоды лактации была на уровне 25%, в то время как у коров контрольной группы достигала на 55-й день 35%, а к 115-му дню снижалась до 15% (рис.13).
Рис.13 Относительное поглощение НЭЖК молочной железой от суммы поглощенных триацилглицеролов и НЭЖК
При этом жирнокислотный состав молока коров контрольной и опытной групп не различался, т.к. увеличенное поглощение триацилглицеролов молочной железой у коров опытной группы компенсировалось меньшим поступлением НЭЖК и большим выделением липидов с молоком.
Балансовые обменные опыты показали, что в период 85-го дня лактации наблюдалась уже отложение энергии в тканях (11,6 ± 0,55 МДж/сут), при этом также избыток обменного белка шел на отложение в тканях (63,9±12,7). На торможение липолиза и активацию липогенеза указывает повышение дыхательного коэффициента у коров контрольной группы до 0,88 и сохранения у коров опытной группе на уровне первого месяца лактации -0,78.
За счет использования в рационах коров опытной группы белковых кормов с разным набором незаменимых аминокислот в нераспадаемом протеине, в химусе, поступающем в кишечник содержание метионина было выше на 42%, лейцина на 17%, фенилаланина на 17%, лизина на 24,6%, гистидина на 76,3%, чем у коров контрольной группы (табл.52).
Таблица 52
Содержание незаменимых аминокислот в химусе двенадцатиперстной кишки, % от суммы кислот
Аминокислоты | Предварительный период -25-й день лактации | Контроль 25-85-й день лактации | Опыт 25-85-й день лактации | Заключительный период 85-115-й день лактации |
Метионин | 1,67 | 1,97 | 2,80 | 2,24 |
Лейцин | 7,94 | 7,47 | 8,75 | 7,60 |
Фенилаланин | 5,38 | 5,33 | 6,37 | 5,47 |
Лизин | 6,60 | 6,00 | 7,48 | 6,13 |
Гистидин | 1,98 | 1,44 | 2,54 | 1,56 |
В результате этого в составе обменного белка концентрация этих аминокислот была также увеличена –метионина на 32,6%, лейцина на 2,1%, фенилаланина на 13,4%, лизина на 21,4%, гистидина на 74,4% (табл.53).
Таблица 53
Содержание незаменимых аминокислот в составе обменного белка
Аминокислоты | Контроль | Опыт | Норма |
Метионин | 1,53 | 2,03 | 2-2,5 |
Лейцин | 6,94 | 7,09 | 7-8 |
Фенилаланин | 5,00 | 5,67 | 4,5-5 |
Лизин | 6,21 | 7,54 | 6,8-7,5 |
Гистидин | 1,41 | 2,46 | 2,2-2,7 |
При одинаковом поступлении обменного белка среднесуточная концентрация незаменимых аминокислот была выше в цельной крови коров опытной группы (метионина на 13,4; лейцина на 55,5; фенилаланина на 27,7; лизина на 1,3 и гистидина на 51,5%), что и приводило к повышению продукции молочного белка у коров опытной группы за 3 месяца опыта с 25-го по 115-й день лактации на 11,5%, удоя- на 13,4%, молочного жира- на 4,4%, белковомолочности - на -2,6%).
Общая эффективность использования обменной энергии на образование молока в этот период достигала в контрольной группе 46,2%; 41,1% и 36,2%, а в опытной группе 55,4%, 45,4 и 40,6% (рис.14). За счет оптимизации аминокислотного питания эффективность использования азота в опытной группе достоверно возрастала с 40,3 до 52,5% (протеин молока от переваренного протеина корма) на второй месяц лактации, с 38,5 до 41,2 – в третий и с37,8 до 43,2 в четвертый (рис.15). Следовательно, за счет дополнительной оптимизации рационов, с учетом субстратной обеспеченности энергетического обмена и синтеза компонентов молока, можно повысить эффективность использования обменной энергии и обменного протеина на образование молока, как основной продукции у лактирующих коров. Расход концентратов за время проведения опыта составил в контрольной группе 400г на литр молока, а в опытной 330г/литр. В опытной группе также отмечено большее потребление грубых кормов на 133 г по сухому веществу.
Рис.14 Общая эффективность использования обменной энергии на образование молока
Рис. 15 Эффективность использования переваримого протеина на образование молочного белка.
Проведенная экспериментальная проверка эффективности нормирования питания высокопродуктивных коров с учетом субстратного обеспечения энергетических и продуктивных функций показала, что за счет дополнительной оптимизации рационов можно повысить эффективность использования обменной энергии и обменного протеина на образование молока на 5% и увеличить продуктивность на 10-15%.
5.2. Практическое применение подходов к определению поступления конечных продуктов переваривания при всасывании для оптимизации питания молочного скота в научно-хозяйственных опытах
Для проверки практического использования разработанных нами ряда критериев и подходов при нормировании кормления был проведен научно-хозяйственный опыт в ПХ «Пушкинское» Нижегородской области на двух группах коров черно-пестрой голштинизированной породы, по 10 голов. Коровы были подобраны в группы по принципу парных аналогов: по молочной продуктивности за предыдущую лактацию, по живой массе, по срокам отела. Учет молочной продуктивности коров проводили через каждые 10 дней. Опыт проводился с 30-го по 80-й день лактации.
На основе анализа кормов, рациона и молочной продуктивности и состава молока были определены параметры питания, нуждающиеся в оптимизации. Ставилась задача увеличить обеспеченность организма коров глюкозой, аминокислотами, высшими жирными кислотами и витамином А. С этой целью были введены комплексные кормовые добавки в состав комбикорма и премикса. Для коров опытной группы часть ячменя и подсолнечного жмыха в составе комбикорма была заменена на кукурузу, кукурузный глютен, кровяную муку и говяжий жир. В составе премикса витаминный препарат Микровит А 500 был заменен на препарат микровит-супра 1000 по активности. При этом кукурузное зерно вводили для обеспечения поступления в кишечник 1000-1200 г крахмала, липиды в составе рациона доводили до 4% для обеспечения за счет липидов корма вместо 60 -70% синтеза молочного жира, белковые добавки (кровяную муку и кукурузный глютен)- для обеспечения дополнительного поступления 180г обменного протеина (табл. 54).
Таблица 54
Исходные данные для оптимизации рационов
Показатели | Контроль | Опыт |
% липидов корма от молочного жира | 60 | 70 |
Поступление крахмала в кишечник, г | 700 | 1100 |
Поступление обменного белка, г | 1730 | 1910 |
Во время опыта коровы всех групп получали изопротеионовые рационы, согласно молочной продуктивности (табл. 55, 56). Однако в опытной группе был снижен уровень распадаемого протеина, за счет подбора компонентов комбикорма и был увеличено содержание нераспадаемого протеина. За счет включения более энергоемких добавок в комбикорм возросло и содержание обменной энергии в рационах опытной группы.
Таблица 55
Рационы кормления лактирующих коров в контрольной группе
Показатели | Ед. изм | Суточный удой, кг | ||
30 | 35,0 | 40 | ||
Сено козлятник-овсянница | кг | 2,0 | 2,0 | 2,0 |
Солома ячменная | кг | 4 | 4 | 4 |
Силос кукурузный- | кг | 20,0 | 20,0 | 20,0 |
Комбикорм | кг | 11,5 | 13,25 | 15 |
Свекла кормовая. | кг | 12,0 | 14,0 | 16,0 |
Патока свекольная | кг | 1,5 | 2 | 2 |
Итого | кг | 53,0 | 57,2 | 61,0 |
В рационе содержится | ||||
ОЭ | МДж | 205,3 | 228,0 | 245,8 |
СВ | кг | 21,3 | 23,5 | 25,4 |
СП | г | 2783 | 3159 | 3486 |
РП | г | 2043 | 2308 | 2535 |
СК | г | 3950 | 4079 | 4209 |
Крахмал | г | 4448 | 5096 | 5745 |
Сахар | г | 2022 | 2461 | 2661 |
Сырой жир | г | 631 | 708 | 786 |
Витамин А | тыс МЕ | 172 | 198 | 220 |
Таблица 56
Рационы кормления лактирующих коров в опытной группе
Показатели | Ед. изм | Суточный удой, кг | ||
30 | 35,0 | 40 | ||
Сено козлятниково-овсянница | кг | 2,0 | 2,0 | 2,0 |
Солома ячменная | кг | 4 | 4 | 4 |
Силос кукурузный- | кг | 20,0 | 20,0 | 20,0 |
Комбикорм | кг | 11,5 | 13,25 | 15 |
Свекла кормовая. | кг | 12,0 | 14,0 | 16,0 |
Патока свекольная | кг | 1,5 | 2 | 2 |
Итого | кг | 53,0 | 57,2 | 61,0 |
В рационе содержится | ||||
ОЭ | МДж | 210,3 | 233,8 | 252,5 |
СВ | кг | 21,3 | 23,6 | 25,4 |
СП | г | 2785 | 3162 | 3484 |
РП | г | 1773 | 1993 | 2174 |
СК | г | 3893 | 4012 | 4132 |
Крахмал | г | 4646 | 5328 | 6009 |
Сахар | г | 2023 | 2462 | 2661 |
Сырой жир | г | 845 | 958 | 1071 |
Витамин А | тыс. МЕ | 172 | 198 | 220 |
Грубые корма раздавались в виде кормосмеси два раза в сутки, свекла, патока и концентраты -6 раз в сутки, с равными интервалами. В конце опыта у коров с помощью пищеводного зонда были отобраны пробы рубцового содержимого, и взята кровь из яремной вены.
Анализ рубцового содержимого показал, что частая раздача концентратов поддерживала уровень рН рубцового содержимого на оптимальном уровне для деятельности микрофлоры (табл. 57). При этом наблюдалось и нормальное количество инфузорий. В то же время из-за относительно невысокого содержания СП в рационе -13%, уровень аммиака в рубце не был оптимальным для синтетической деятельности рубцовой микрофлоры. Но разницы между группами отмечено не было и можно предполагать, что в обеих группах у животных микробный синтез в рубце шел с одинаковой эффективностью.
Таблица 57
Показатели рубцовой ферментации в рубце у коров
Показатели | Контроль | Опыт |
рН | 6,6±0,05 | 6,6±0,11 |
Аммиак, мг% | 7,3±0,61 | 6,5±1,33 |
ЛЖК, ммоль/100мл | 12,2±0,37 | 12,1±0.,5 |
С2 | 63,4±0,76 | 64,3±1.29 |
С3 | 24,2±0,89 | 25,3±1,51 |
С4 | 12,4±0,63 | 10,7±0,81 |
Общее кол-во бактерий, млрд/мл | 8,9±0,88 | 9,9±0,58 |
Число инфузорий, тыс/мл | 210±2,8 | 210±60,4 |
Амилолитическая активность, ед/мл | 57,1±4,02 | 60,5±1,35 |
Целлюлозолитическая активность, % | 10,46±1,5 | 9,7±1,10 |
