
лейкоза крупного рогатого скота, Т – лимфотропные вирусы человека 1 и 2 типов, вирус лейкоза обезьян и рода Lentivirus, объединяющего 5 подродов лентивирусов (от латинского lenti – медленный). К ним относят лентивирусы коз и овец, вирус иммунодефицита приматов, лентивирусы лошадей, лентивирусы кошек, лентивирусы крупного рогатого скота. Ретровирусным инфекциям свойственен ряд общих признаков: длительность инкубационного периода, хроническое или латентное течение, прижизненная персистенция вируса и строго ограниченный круг восприимчивых животных (D. Beier, P. Blankenstein, H. Fechner, 1992; P. Lundberg, G. Splitter, 2000; А.П. Лиманский, L. Geue, О.Ю. Лиманская, D. Beier, 2004).
Ретровирусы проникают в клетку путем эндоцитоза, РНК освобождается и транскрибируется в двухцепочечную ДНК - копию, которая встраивается как провирус в ДНК клетки хозяина. Интегрированный в геном вирус, остается не доступным для воздействия специфических антител и персистирует в организме на протяжении всей жизни животного (В. А. Крикун, 2002). В благоприятных условиях с интегрированного провируса транскрибируется как вирусная РНК – копия, так и РНК, которые транслируются в белки. Затем происходит сборка новых вирионов, которые отпочковываются от клеточной мембраны для инфицирования новых клеток.
Зрелые вирионы состоят из центрально расположенного электронно-плотного нуклеотида, диаметр которого варьирует от 50 до 90 нм. Сердцевина вириона (cor) отделена от вирусной оболочки промежуточным слоем. Внешняя оболочка представлена двухконтурной мембраной; на еѐ поверхности имеются шипики длинной 8-11нм. с пуговкообразными утолщениями на концах (В.М. Авилов, В.М. Нахмансон, 1995; А.Д. Белов, Г.В. Рогожина, 1997; А.Д. Альштеин, 2000).
Основным биохимическим признаком семейства Retroviridae является наличие в вирионе обратной транскриптазы (ОТ) (РНК – зависимой ДНК – полимеразы) (Л.Г Бурба, 1988, Н.В. Сюрин, Р.В. Белоусова, Н.В. Фомина, 1991, Б.Г. Орлянкин, 1996, Л.Б. Прохватилова, 1998).
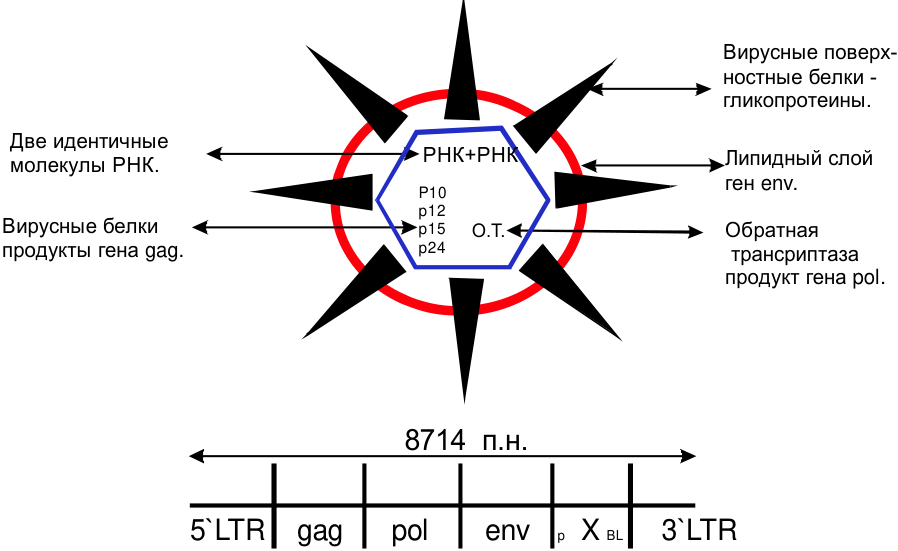
Геном вируса лейкоза и морфологическая структура представлены на рис 1. LTR – длинные концевые повторы (long terminal repeat); gag – ген кодирующий белки сердцевины (определяет группоспецифический антиген (group specific antigen); pol – ген, кодирующий обратную транскриптазу (polymerase); env –ген кодирующий белки оболочки (envelope); XBL – не идентифицированная область (Л.Б. Прохватилова и др, 1998).
Белки ВЛКРС представлены негликолизированными (p10, p12, p15, p24) и гликолизированными (gp30 с молекулярной массой 30-50кД и gp 51 с молекулярной массой 5170кД).
Белки (p10, p12, p15, p24) относятся к структурным внутренним белкам. Первым выделенным белком был p24. Этот белок является нейтральным и умеренно гидрофобным.
Белок p15 – слабый основной белок, не содержащий остатки метионина. Он является главным фосфопротеином вирионов ВЛКРС. Имеет две молекулярные формы и участвует в комплексах с гомологичными молекулами, с p10, липидами и РНК вируса.
Белок p12 обогащен пролином, лизином и аргинином. Его молекула имеет низкий уровень вторичной организации и тесно связанна с вирусной РНК. Данный белок образован 69 аминокислотами.
Белок p10 – сильный основной белок способный связываться с однонитевой ДНК (Y. Da, R.D. Shanks, J.A. Stewart, H.A. Lewin, 1993, Y. Aida et al., 1995, Н.И. Снежков, 1995).
Вирусные поверх-
ностные белки -
гликопротеины.
Две идентичные
РНК+РНК Липидный слой
молекулы РНК.
ген env.
P10
p12
Вирусные белки p15 О.Т. Обратная
продукты гена gag. p24 трансриптаза
продукт гена pol.
8714 п.н.
5LTR gag pol env Xp BL 3LTR
Обратная траскриптаза или РНК-зависимая ДНК-полимераза – фермент, необходимый для репликации РНК-содержащих онковирусов. РНК-зависимая ДНКполимеразная активность связанна со всеми четырьмя дезоксирибонуклеозидтрансфосфатами а так же с Mg2+ .
Главные гликопротеины вирусной оболочки gp 51 и gp 30. Причем gp 51 трансмембранный белок, содержащий 268 аминокислот и являющийся главным антигеном вируса лейкоза, ответственным за образование нейтрализующих антител. При помощи моноклональных антител было выявлено 8 антигенных детерминант, обозначаемых как A,B,C,D,I,F,G,H. Из которых F,G,H отвечают за выработку нейтрализующих антител.
В отличие от Т – клеточного лейкоза человека ВЛКРС поражает В – лимфоциты, встраиваясь в геном клетки – хозяина в виде ДНК – копии (провируса). Интегрированный в клеточный геном провирус, может долгое время не экспрессироваться, чем и объясняется наличие длительного латентного периода в течение заболевания (Б. Г. Орлянкин, 1996, S.Tajima, Y.Aida, 2005).
Доказано, что единственным местом локализации ВЛКРС являются В – лимфоциты. Поэтому выделение вируса возможно с кровью и любым секретом или экскретом, содержащим лимфоциты: молоком, слюной, слизистыми секретами, фекалиями, мочой и др. (М. И. Гулюкин, Н. В. Замараева, В. А. Седов и др., 1999, С. А. Мурватуллоев, 1999).
Существует два основных пути передачи вируса: вертикальный – от матери – плоду и горизонтальный – от одного животного – другому (В.А. Крикун, 1985; Г.Ф. Коромыслов, В.П. Шишков, 1993; Н.В. Замараева, М.И. Гулюкин, М.Н. Снежков, 1996; O.C. Straub, 1978; K. Oshima et al., 1981). Инфицирование плода происходит трансплацентарным путем через кровь матери. Частота заражения новорожденных телят зависит от стадии инфекционного процесса матери. От коров с гематологическими проявлениями болезни выявляют 18–20 % телят, инфицированных ВЛКРС, от коров с бессимптомной инфекцией – 2–3% (Г.Ф.Коромыслов, М.И. Гулюкин, Г.А. Симонян,
1999).
Передача ВЛКРС восприимчивому крупному рогатому скоту может осуществляться со всеми секретами и экскретами при попадании в них лимфоцитов, зараженных ВЛКРС (Н.И. Петров, 1997; Н.И. Петров, 1998; Н.И. Петров, 2004) . Установлено, что для экспериментального заражения телят достаточно ввести им внутрикожно 2500 лимфоцитов крови от зараженного животного (такое количество лимфоцитов содержится примерно в 0,0005 мл цельной крови). Взаимодействие ВЛКРС с восприимчивым крупным рогатым скотом происходит на уровне генетического аппарата лимфоидной клетки и обуславливает пожизненную персистенцию вируса в макроорганизме (Р.Ф. Галеев, 1999, Ю.П. Смирнов, 1999)
Среди основных факторов, обуславливающих передачу вируса лейкоза, наибольшее значение имеет перенос возбудителя через кровь и препаратов из нее, при ветеринарных и зоотехнических обработках, т.е. ятрогенный способ передачи инфекции (В. М. Авилов, В. М. Нахмансон, 1995).
В сперме инфицированных быков-производителей ВЛКРС не выявлен. Не наблюдается определенного влияния передачи ВЛКРС потомству от серопозитивных быков-производителей при естественном оплодотворении серонегативных коров. Однако у быков с воспалением генитальных органов в сперме могут быть лимфоциты, инфицированные ВЛКРС. Экспериментально установлено, что коров можно инфицировать путем нанесения таких лимфоцитов на слизистую оболочку матки. Изучение возможности передачи вируса лейкоза при эмбриопересадках подтвердили отсутствие передачи ВЛКРС от коров доноров коровам-реципиентам через эмбрионы (Апалькин В.А., Гулюкин М.И., Петров Н.И., 2005). В эксперименте J. Kohara, S. Konnai, M. Onuma (2006) была доказана возможность инфицирования здоровых животных ВЛКРС при ректальном исследовании. У трех животных из четырех после ректального исследования с использованием одной перчатки выявляли провирусную ДНК методом ПЦР через 1-5 недель, а антитела в РИД через 7-10 недель.
Механизм передачи ВЛКРС еще окончательно не изучен. Экспериментально подтверждена возможность заражения животных путем переноса ВЛКРС при ректальной пальпации в случае повреждения слизистой оболочки. Не получено достаточных доказательств о влиянии жалящих и кровососущих насекомых в распространении лейкоза (П.Н. Смирнов, В.В. Храмцов, В.В. Смирнова, 2005, А.М. Смирнов, 2005).
В отношении роли секретов слюнных, слезных желез, мочи и кала в распространении возбудителя большинство исследователей приходит к выводу, что вирус лейкоза в них не обнаруживают, а при контаминации их кровью инфицированного ВЛКРС он не может в них сохраняться длительное время, т.е. эти секреты и экскреты не могут служить существенными факторами передачи ВЛКРС (В.Н. Сюрин, А.Я. Самуйленко и др., 1998, Ю.П. Смирнов, 1999, М.И. Гулюкин, Г.А. Симонян, А.К. Мироменко, 2005).
Учитывая все это, надо полагать, что в практических условиях основной способ заражения восприимчивого организма сопряжен с нарушением правил асептики, т.е. с попаданием лимфоцитов в организм восприимчивого животного при инъекциях, нумерации, хирургических операциях, фиксации животных при проведении ветеринарнозоотехнических манипуляций. Совместное проведение отелов здоровых, инфицированных ВЛКРС и больных животных способствует распространению инфекции ( www.vetlab.spb.ru) .
Клиническая картина злокачественных заболеваний кроветворной ткани крупного рогатого скота отличается большой вариабельностью признаков в зависимости от стадии болезни, еѐ продолжительности, формы проявления и поражения тех или иных органов (А. Д. Белов, Г. В. Рогожина, 1997). У телят 1,5 – 3 - месячного возраста все виды гемобластозов характеризуются обычно острым течением и заканчиваются гибелью через 1 – 2 недели после появления признаков болезни. У молодняка в возрасте 8 – 9 месяцев или 1 – 2 года болезнь протекает в виде подострых, редко острых случаев. Развитие
