
хому веществу, сахаропротеиновому отношению, витаминам обуславливает задержку овуляции и различную степень дегенерации яйцеклеток. При этом органические различной степени нарушения печени резко снижают функции гипофиза. Замедляется рост фолликулов. Предполостные и малые фолликулы подвергаются постепенной дегенерации. В гранулезной оболочке растущих фолликулов из-за недостатка гонадотропной активизации происходит торможение ароматозной системы, образования рецепторов к гонадотропинам, и возникают условия для персистенции фолликулов, продолжительность которой зависит от способности теки-ткани синтезировать андрогены.
Избыток ФСГ во время стимуляции яичников может вызвать развитие большого количества полостных и предовуляторных фолликулов, что при недостатке ЛГ будет главной причиной образования фолликулярных кист. Синтез эстрогенов, в котором участвует большое количество полостных фолликулов, недостаточен для формирования доминантных фолликулов и осуществления процесса овуляции, вследствие недостаточного синтеза ЛГ-рецепторов. Дополнительное же введение ЛГ в этом случае дублирует физиологический гормональный профиль во время фолликулярного развития, повышает оплодотворяемость гамет и улучшает качество эмбрионов.
Причиной снижения эстрогенной функции яичников могут служить хронические эндометриты. При этом отмечаются нарушения овуляции и недостаточность желтого тела, хотя функции гипофиза могут оставаться нормальными. Скорее, это связано с нарушением рецепторного аппарата, связывающего деятельность яичников с гипоталамо-гипофизарным комплексом. В результате не происходит предовуляторного подъема эстрогенов и обуславливает монотонный характер выделения ЛГ. И хотя в течение цикла секреция ЛГ будет осуществляться, более низкое его количество вызовет запоздалую овуляцию, недостаточную
для образования полноценного желтого тела. Воспалительные процессы также могут вызывать нарушения в синтезе простагландинов. Поэтому овуляция напрямую зависит от величины и особенно тонической активности матки. Процессы фолликулогенеза и гаметогенеза непосредственно связаны не только с недостаточностью кормления, но и с ожирением коров. При этом эстрогены по принципу обратной связи задерживают выделение ФСГ и повышают чувствительность гипофиза к действию люлиберина. Возникает ситуация когда тормозятся завершающие стадии роста фолликулов и их созревание, под действием ЛГ уменьшается пролиферативная и ароматозная активность гранулезы и наблюдается снижение или отсутствие предовуляторного типа эстрогенов. Это приводит к лютеинизации, или атрезии, фолликулов и нередко может наблюдаться поликистоз яичников. Возможны и другие отклонения [255].
Исходя из вышеизложенного, можно судить о сложности и многогранности воздействий, определяющих регуляцию, как целостного организма, так и половой цикличности животных, в частности. В этой связи каждый происходящий половой цикл самок, как по качеству, так и по длительности проявления, отличается от предыдущего и не будет абсолютно похож на будущий. Тем не менее, с целью наглядного представления о динамике полового цикла часто его моделируют. Такой условный, или «идеальный», половой цикл можно представить следующим образом. По В.В. Ельчанинову, он имеет три недельных (циркосептальных) периода (рис. 1). В течение первой недели после овуляции происходит формирование желтого тела за счет интенсивного размножения клеток бывшей теки и зернистого слоя стенок фолликула. Формирующееся желтое тело с нарастающей активностью вырабатывает прогестерон, повышая его количество до оптимального уровня. В течение
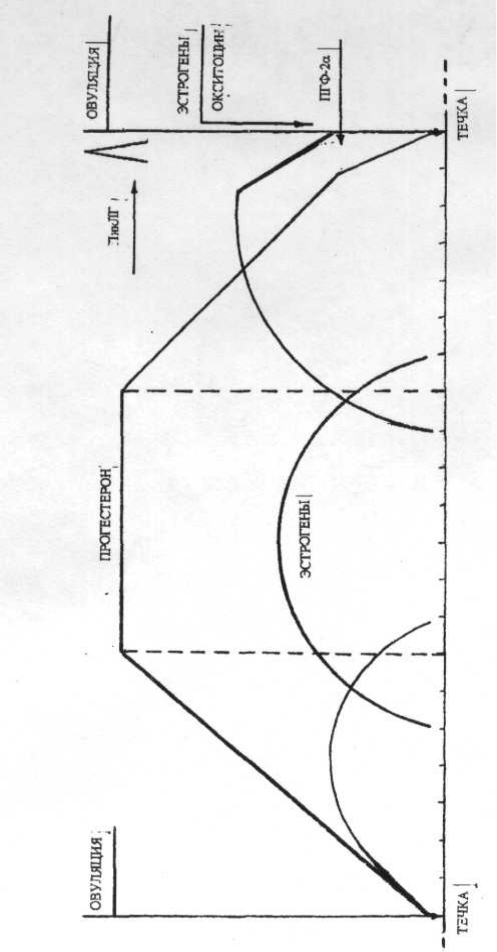
82
