
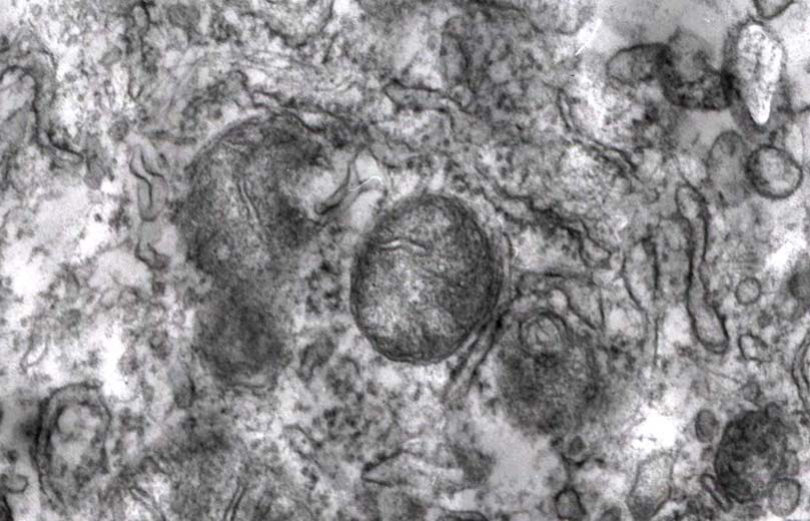

мембраны, лизосом, а также синтез белков на экспорт для экзоцитоза. В отличие от шероховатой на мембранах гладкой эндоплазматической сети нет рибосом. Объем гладкой эндоплазматической сети небольшой (8-10%) и локализуется главным образом в апикальной, верхней части клетки, вблизи участвуя в синтезе липидов и некоторых внутриклеточных полисахаридов. Ближе к периферии клетки гранулярная и гладкая эндоплазматическая сеть имеет расширенные профили, что свидетельствует об активных синтетических процессах. Аппарат Гольджи располагается около ядра и имеет несколько расширенные профили, что свидетельствует об интенсивно происходящих процессах синтеза полисахаридов и выделения готовых секретов за пределы клетки. Кроме того, аппарат Гольджи является источником лизосом, которые в данной стадии возбуждения полового цикла достаточно активны, осуществляя переваривание материала, расщепление белков, полисахаридов и липидов.
Митохондрии располагаются разрозненно, однако можно наблюдать их концентрацию по периферии, ближе к апикальной части клетки.
Митохондрии различаются по своей структуре; одни из них
электронно-плотные, с ярко выраженными параллельными кристами, другие – набухшие, светлые, с менее выраженными непараллельными кристами в виде лучей, отходящих от середины. Относительный объем митохондрий в секреторных клетках составляет 20-23%. Наблюдаемая картина свидетельствует об их неодинаковом морфофункциональном состоянии. В цитоплазме наблюдается небольшие островки просветления, расположенные чаще всего ближе к апикальному краю и вокруг крупных митохондрий.
На апикальной поверхности секреторных клеток расположено большое количество микроворсинок. Микроворсинки представляют собой короткие выросты плазматической мембраны длиной 0,5-1,3 мкм и диаметром 0,05-0,16 мкм. В большинстве случаев они прямые, иногда имеют извитую форму, но всегда ориентированы в радиальном направлении и характеризуются относительно равномерной плотностью распределения.
Кроме секреторных эндометрий содержит большое количество мерцательных клеток, характеризующихся наличием плотных расположенных ресничек. Эти реснички перемещают слизь с инородными частицами и остатками отмерших клеток и создают ток жидкости около клеточной поверхности. При этом реснички направляют ток жидкости к шейке матки. Реснички имеют цилиндрическую форму, они гораздо длиннее микроворсинок (до 5-8 мкм), почти вдвое толще (диаметром 0,1-0,2 мкм) и сгруппированы в пучки из 35-50 образований. В отличие от микроворсинок реснички одного пучка расположены практически параллельно друг другу и волнообразно изогнуты.
Мерцательные клетки характеризуется довольно однообразной структурой и содержат мелкие удлиненные митохондрии, рибосомы, субнуклеарно расположенный пластинчатый комплекс, лизосомы.
По данным E. Schueller (1968), О.В. Волковой (1983), отсутствует строгое разграничение эпителия на два вида клеток. Мерцательные клетки могут проявлять способность к секреции. При этом изменяются их гистохимические и ультраструктурные характеристики. Вариации в количестве в количестве обусловлены изменением гормонального фона в организме. Возрастание числа мерцательных клеток наблюдается при повышении уровня эстрогенов, а при повышении уровня прогестерона и соответственно уменьшения эстрогенов отмечается обратный эффект.
Микрорельеф эпителиальной выстилки полости матки, характерный для преимущественно эстрогенного влияния, существенно
меняет свой вид с наступлением лютеиновой фазы полового цикла. В этот период для слизистой оболочки матки характерно наличие широких уплощенных складок, на вершине которых открываются многочисленные железы. В большинстве случаев эпителиоциты формируют плотный монослой с почти не различимыми клеточными границами, лишь в валике, окружающем устья протоков желез, отчетливо выделяются приподнятые клетки с четким контуром. На апикальной поверхности эпителиоцитов в этот период микроворсинки и реснички отсутствуют. Основными в рельефе апикальной поверхности эпителиоцитов являются сферические (0,2-0,3 мкм в диаметре) выпуклости и хорошо выраженные инвагинации, окруженные валиком с глубоким центральным вдавлением. Для лютеиновой фазы полового цикла весьма характерно и наличие на апикальной поверхности эпителия слизи, которая либо сконцентрирована в виде глобул диаметром 2-5 мкм, либо равномерно покрывает поверхность клеток.
Эти гормонозависимые изменения рельефа эпителиальной поверхности имеют глубокий физиологический смысл – наличие микроворсинок и ресничек не только определяет направление тока жидкости в полости репродуктивного тракта и ориентацию сперматозоидов, но и предупреждает адгезию сперматозоидов на стенках матки и позволяет им беспрепятственно мигрировать в яйцепроводе для встречи с яйцеклеткой. Соответствующий состав жидкости и наличие у клетки поверхностного отрицательного заряда, поддерживаемого определенным уровнем метаболизма и генерацией трансмембранного потенциала, служит, очевидно, той же цели – держать в отдалении от стенок репродуктивного тракта сперматозоиды и обеспечивать их продвижение к яйцеклетке.
В лютеиновой фазе полового цикла для нидации оплодотворенной яйцеклетки необходима соответствующая подготовка поверхности эпителиоцитов, в частности, секреторная трансформация эндометрия и устранение микроворсинок, обеспечивающих отрицательный заряд клеточной мембраны. Показано, что редукция отрицательного заряда апикальной мембраны эпителиоцитов эндометрия имеет непосредственное отношение к успешной имплантации яйцеклетки.
При смене гормонального фона – снижении содержания эстрогенов и повышении уровня прогестерона соответственно меняется и специализированная функция эндометрия. Сущность этих изменений теперь заключается в создании оптимальных условий для полноценной имплантации яйцеклетки, а именно – редукции микроворсинок и
