
N-ацетилглюкозаминовым остаткам белков прозрачной оболочки яйцеклетки. Таким образом, по типу ключ-замок прикрепляется спермий к ооциту.
Акросомная реакция приводит к выделению ферментов, лизирующих связи между фолликулярными клетками, окружающими ооцит (рисунок 1.8). Ферменты, выделенные из акросомного пузырька, называют лизинами. Они включают гиалуронидазу, расщепляющую гиалуроновую кислоту матрикса, и фермент, рассеивающий клетки лучистого венца. Кроме того, спермии содержат акрозин, разрушающий прозрачную оболочку в месте прикрепления.
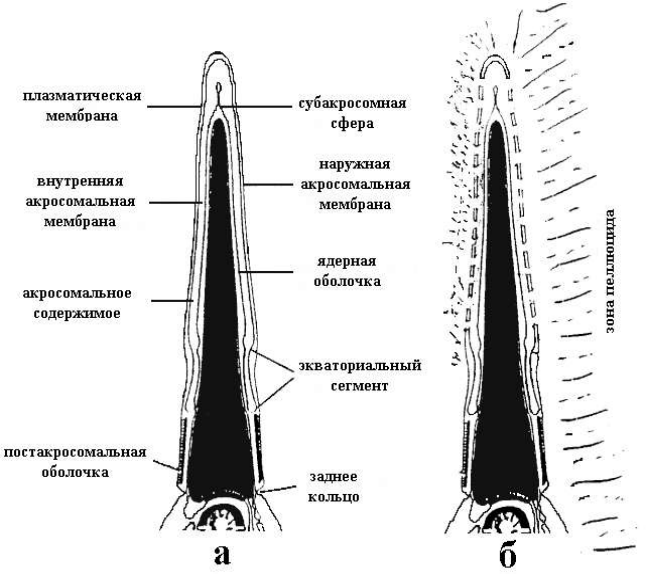
а – интактный спермий
б – спермий в процессе слияния плазмы яйцеклетки и наружной акросомальной мембраны
Рисунок 1.8 – Схематичное изображение акросомной реакции
Морфологическим выражением акросомной реакции является разрыв акросомного пузырька, который происходит в результате кальций-зависимого слияния наружной акросомной мембраны и прилежащей к ней плазматической мембраны спермия в передней половине головки. Во время акросомной реакции плазматическая мембрана, покрывающая постакросомальную область головки (ее экваториальный сегмент), приобретает свойства, делающие возможным слияние этой части плазматической мембраны спермия с плазматической мембраной яйцеклетки.
Спермии быстро проходят через блестящую оболочку. Это прохождение осуществляется благодаря совместным действиям акрозина, связанного с внутренней акросомной мембраной, и активных движений хвоста спермия. Пройдя через блестящую оболочку спермий, попадает в перивителлиновое пространство. Если блок полиспермии функционирует на уровне блестящей оболочки, то в перивителлиновое пространство попадает один спермий. Если полиспермия блокируется на уровне плазматической мембраны яйцеклетки, то в перивителлиновом пространстве можно найти много спермиев, хотя только один из них сольется с яйцеклеткой.
Спермий сливается с плазматической мембраной яйцеклетки экваториальным постакросомальным районом головки. Процесс слияния происходит при взаимодействии этого специализированного района мембраны спермия и микроворсинок плазматической мембраны яйцеклетки и занимает несколько минут.
После проникновения в яйцеклетку головка спермия быстро теряет оболочки, и хроматин начинает деконденсироваться. Вследствие контакта деконденсирующегося хроматина спермия с цитоплазмой яйца происходят локальные изменения субкортикального слоя, в который попадает спермий. Молекулы глобулярного актина полимеризуются, образуя скопление микрофиламентов. Плазматическая мембрана яйцеклетки выпячивается, образуя «бугорок» и теряя микроворсинки, появляется так называемый конус оплодотворения.
1.5 ПРЕДИМПЛАНТАЦИОННОЕ РАЗВИТИЕ
Деление бластомеров эмбриона происходит синхронно, так что при каждом дроблении количество бластомеров удваивается.
До середины 2-клеточной стадии зародыши полностью зависят от ооплазматических запасов белков и м-РНК. С середины 2-клеточной стадии активируются гены зародыша. В это же время начинают разрушаться м-РНК ооцита, но белки, транслированные с этих м-РНК сохраняются до стадии бластоцисты, а некоторые и позже. В конце двухбластомерной стадии в некоторых ядрах появляются типичные ядрышки, то есть активируются рибосомальные гены зародыша. Эти гены, на данной стадии, экспрессируются и в основном они необходимы для поддержания жизнедеятельности клеток. Ядра, находясь под контролем цитоплазматических факторов яйца, выполняют преимущественно функции клеточных органоидов, обеспечивающих упорядоченность дробления.
До стадии развития в 16 клеток бластомеры располагаются свободно друг от друга и легко различимы. Во время последующих двух делений, в ходе которых возникает морула , бластомеры (от 16 до 64) начинают уплотнятся. Этот процесс называется компактизацией. Компактизация, представляет самое важное отличие дробления зародышей от всех других типов дробления.
Известно, что плазматическая мембрана каждого бластомера покрыта микроворсинками, которые возникают, благодаря образованию актиновых микрофиламентов. При помощи микроворсинок соседние бластомеры прикрепляются друг к другу. Медиаторами межклеточной адгезии служат гликопротеины, функционирующие на поверхностях микроворсинок. Одним из этих гликопротеинов является увоморулин. Антитела к увоморулину вызывают декомпактизацию бластомеров. При компактизации происходит уплощение контактирующих поверхностей соседних бластомеров, микроворсинки укорачиваются путем деполимеризации актина. Таким образом, бластомеры приобретают полярность, которая выражается в наличии микроворсинок только на наружной части их мембран, не контактирующей с
