
одной до четырех). Доминантные фолликулы, образующиеся в начале и средине лютеиновой фазы полового цикла, не способны при активно функционирующем желтом теле достичь овуляторной стадии зрелости и поэтому подвергаются обратному развитию. При спонтанной или индуцированной с помощью препаратов ПгФ-2 альфа регрессии желтого тела полового цикла доминантный фолликул последней волны роста вступает в финальную стадию развития, созревает и овулирует. Для достижения предовуляторной стадии зрелости лидирующему фолликулу с момента его эхографической идентификации необходимо в среднем 6,9 дня (Hamilton S.A. et al., 1995). На стадии овуляторной зрелости доминантные фолликулы у коров достигают в среднем 16…16,5 мм (Ginther O.J. et al., 1989; Hamilton S.A. et al., 1995), а у телок – 13 мм в диаметре (Ginther O.J. et al., 1989).
Волнообразный характер фолликулярного роста также сохраняется в течение большей части беременности. Рост антральных фолликулов в этот период носит незавершенный характер. Высокие концентрации лютеального и/или плацентарного прогестерона через механизмы отрицательный обратной связи блокируют преовуляторный выброс ЛГ и соответственно процесс созревания доминантных фолликулов и их овуляции. Смена одного ановуляторного доминантного фолликула на другой происходит в среднем через каждые 6…12 дней. С каждой волной фолликулярного роста эхографические размеры доминантного фолликула прогрессивно уменьшаются. Так, если в начале беременности доминантные фолликулы первой и второй волн фолликулярного роста достигают в размере 15,7 и 13,1 мм, то в конце беременности их размеры уменьшаются соответственно до 8,5 мм. В последние 3 нед стельности высокие концентрации плацентарных эстрогенов через механизмы обратной связи истощают запасы гонадотропинов в гипофизе (аденогипофизе), что ведет к прекращению циклического роста фолликулов в яичниках.
После родов у новотельных коров быстро восстанавливаются запасы гонадотропинов (ФСГ и ЛГ) в передней доле гипофиза и возобновляется
циклический рост антральных фолликулов. Первый доминантный фолликул образуется уже на 8 - 10 день после отела, который может овулировать с образованием желтого тела, трансформироваться в кисту яичника, либо, не достигнув стадии овуляторной зрелости, подвергнуться атрезии и запустить новую овуляторную или ановуляторную волну роста фолликулов.
5.2. Компактные и кистозные желтые тела полового цикла
Компактные и кистозные желтые тела образуются после овуляции на месте овулирующего фолликула и эффективно распознаются с помощью УЗИ. При сканировании яичников компактные желтые тела полового цикла визуализируются как эхопозитивные овальные или округлые образования с четко очерченными контурами (рис.11б). Их диаметр составляет 10…30 мм и
более.
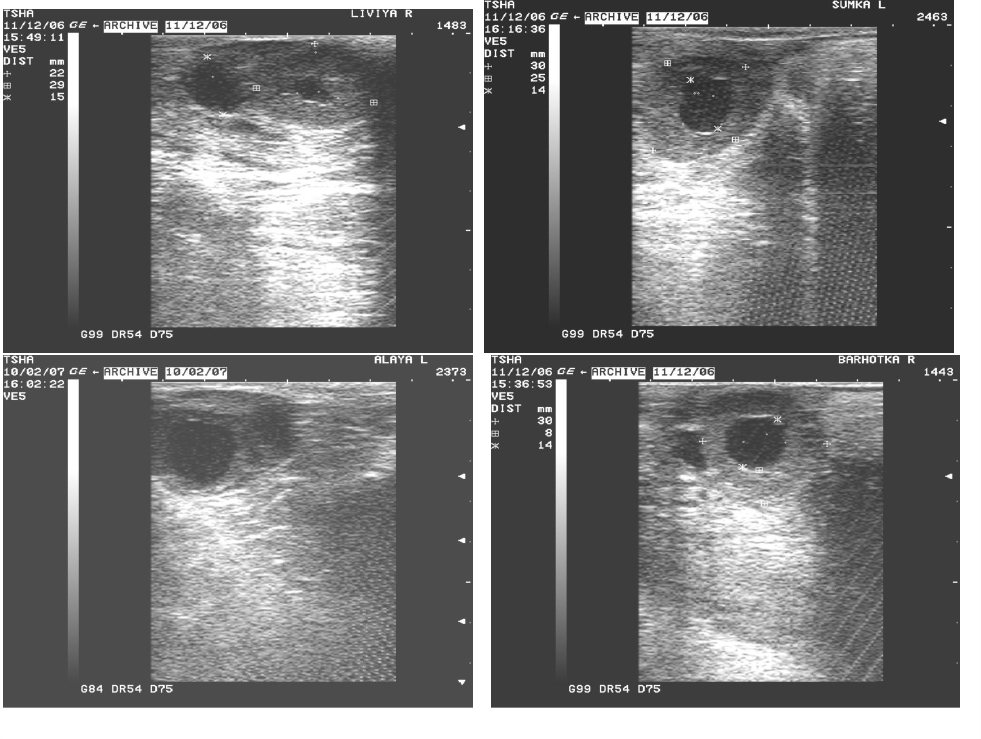
Кистозные желтые тела от желтых тел солидного типа отличаются только тем, что содержат различную по форме и размеру полость с анэхогенным содержимым. Примеры эхограмм яичников кистозными желтыми телами приведены на рис. 12.
По данным литературы (Kito S. et al., 1989; Kahn W., 1989; Kastelic J.P. et al., 1990), кистозные желтые тела встречаются в 37,2…79,0 % случаев, в том числе с размером полости 10 и более мм – в 24,4…27,5%, а 20 мм и более – в 8,9% случаев. Практически все исследователи рассматривают их как один из анатомических вариантов желтого тела полового цикла. Причина их образования неизвестна. В полости кистозных желтых тел часто обнаруживают сгустки крови. Кистозная жидкость содержит много прогестерона: почти в 2,4 раза больше, чем в содержимом лютеиновых кист (Kondoh M. et al., 1990). Коровы с кистозными желтыми телами, как правило, проявляют нормальные половые циклы, оплодотворяются и имеют достаточное количество лютеиновой ткани, вырабатывающей прогестерон, необходимый для поддержания беременности.
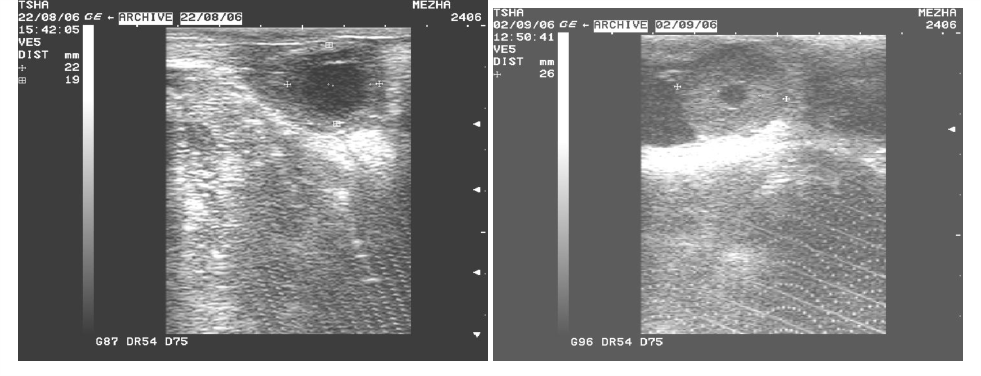
При инволюции кистозного желтого тела полового цикла или его трансформации в желтое тело беременности полость исчезает (Kito S. et al., 1989; Kastelic J.P. et al., 1990). При безрезультатном осеменении полость
