
Если происходит падение концентрации глюкозы в плазме крови ниже определенного уровня, то секреция лактозы будет прекращена. Лактирующие жвачные часто испытывают недостаток глюкозы при высокой молочной продукции. 60–70% глюкозы плазмы используется на синтез лактозы, 20–30% глюкозы затрачивается на получение НАДФН для синтеза жирных кислот молока, а небольшое количество глюкозы идет на получение глицерофосфата, используемого при этерификации жирных кислот. При этом только следовые количества глюкозы крови жвачных окисляются на синтез АТФ.
Отметим, что в тонком кишечнике новорожденных телят лактоза молока гидролизуется ферментом лактазы на свободные молекулы глюкозы и галактозы. Последняя может быть использована на различные цели, включая синтез ганглиозидов развивающегося мозга. Пик активности лактазы кишечника отмечается в первое время после рождения телят.
Молоко является прекрасной средой для роста и развития различных видов бактерий, вызывающих брожение лактозы. В частности, молочнокислое брожение вызывается молочнокислыми бактериями, включая некоторые виды Lactobacillus, под влиянием ферментов которых молекула лактозы с участием воды распадается на четыре молекулы молочной кислоты. Это брожение является основой для получения ряда молочнокислых продуктов для питания человека.
Пропионовокислое брожение вызывается пропионовокислыми бактериями. При этом виде брожения молочная кислота распадается с образованием пропионовой, уксусной кислот, СО2 и Н2О. Этот вид брожения используют при производстве сыров.
Спиртовое брожение протекает под влиянием отдельных видов
дрожжей:
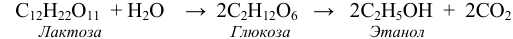
С12Н22О11 + Н2О → 2С2Н12О6 → 2С2Н5ОН + 2СО2
Лактоза Глюкоза Этанол
Спиртовое брожение в таких молочных продуктах, как кумыс, кефир и другие, протекает обычно вместе с молочнокислым. Поэтому молоко становится кислым, накапливает спирт и углекислоту, которая делает продукт бродящим. Отметим, что кефир обычно приготавливают из коровьего молока путем внесения в молоко закваски кефирных грибков. В зависимости от продолжительности брожения получают слабый (односуточный) кефир с количеством спирта не более 0,1% или крепкий кефир (0,5% спирта).
У млекопитающих с простым желудком важнейшим предшественником для синтеза жирных кислот является глюкоза. У жвачных животных наиболее важными предшественниками являются ацетат, образующийся в рубце, и бета-гидроксибутират стенки рубца. В синтезе жирных кислот молока различают три этапа: образование ацетил-КоА,
178
удлинение углеродной цепи кислоты, формирование ненасыщенных связей кислот.
У млекопитающих с простым желудком глюкоза в процессе гликолиза переходит в пировиноградную кислоту. Последняя, реагируя с щавелевоуксусной кислотой в митохондрии, трансформируется в цитрат. Цитрат проникает сквозь митохондриальную мембрану и в цитозоле в присутствии цитрат-лиазы формирует ацетил-КоА и щавелевоуксусную кислоту. Ацетил-КоА затем участвует в реакциях синтеза жирной кислоты. У жвачных животных существует недостаток цитрат-лиазы, а поэтому они неспособны использовать глюкозу для синтеза жирных кислот. Они используют в этих целях ацетат. Все компоненты для синтеза жирной кислоты находятся в цитозоле. Синтез жирной кислоты использует такие витамины, как биотин, пантотеновая кислота, фолиевая кислота. Малонил-S-АПБ является начальным субстратом для синтеза жирной кислоты. Взаимодействие малонил-S-АПБ и ацетил-S-АПБ приводит к образованию бутирил-S-АПБ. Последующее удлинение молекулы масляной кислоты (С4) до пальмитиновой (С16) осуществляется 7 раз за счет малонил-S-АПБ. НАДФН, необходимый в реакциях восстановления при биосинтезе жирной кислоты, синтезируется в пентозо-фосфатном окислении глюкозо-6-фосфата.
В жировой ткани, печени, других тканях депо жира – пальмитиновая кислота (С15Н31СООН) – реализуется как конечный продукт синтеза. Молоко жвачных животных содержит 5–8% жирных кислот с 4 и 6 атомами углерода, которые не обнаруживаются в других тканях животного. Молоко жвачных животных содержит так же небольшие количества жирных кислот с разветвленными углеродными цепями и с нечетными количествами атомов углерода. Эти кислоты в основном продуцируются микроорганизмами в пищеварительном тракте из разветвленных аминокислот и из пропионата.
Образующиеся первоначально в молочной железе жирные кислоты являются насыщенными. Однако, наличие в эпителиальных клетках ферментов десатуразы эндоплазматического эпителия приводит к образованию ненасыщенных связей в молекулах жирных кислот. Поэтому в молоке происходит увеличение ненасыщенных жирных кислот (например, олеиновая – С17Н33СООН из стеариновой – С17Н35СООН). Этерификация жирных кислот имеет место в эндоплазматическом ретикулуме, поэтому почти все молекулы синтезированных жирных кислот в составе молока присутствуют в форме эфиров.
В свежем нормальном молоке концентрация свободных жирных кислот низкая. Молоко содержит фермент липопротеин липазу, физиологическая функция которой – гидролиз триглицеридов в структуре липопротеинов плазмы. Эта липаза появляется в молоке в случае анормальной секреции эпителиальными клетками молочной железы, которые продуцируют этот фермент. Если активность липазы в молоке
179
высокая, то триглицериды жиров распадаются, и в молоке возрастает уровень свободных жирных кислот. Даже умеренное повышение уровня свободных жирных кислот придает молоку неприятный вкус. Дальнейшее повышение концентрации свободных жирных кислот приводит к выраженному горькому вкусу молока, непригодного для потребления. Это происходит при наличии в молоке низкомолекулярных жирных кислот, моно- и диглицеридов.
Процесс образования молока и молокоотделения регулируется с помощью гормонов; в частности, пролактин гипофиза стимулирует синтез отдельных компонентов молока, а прогестерон тормозит этот процесс, включая и синтез лактозы. С началом лактации концентрация прогестерона в крови заметно снижается и усиливается синтез лактозы.
Действие пролактина на метаболические циклы разностороннее, но наиболее полно изучено его стимулирующее влияние на лактогенез в молочной железе. Пик секреции пролактина приходится на сухостойный период и в первый месяц лактации. Секреция пролактина усиливается актом сосания. При этом сенсорный импульс направляется в гипоталамус, где синтез допамина, основного ингибитора секреции пролактина, блокируется, и нейроны паравентрикулярного ядра стимулируются для продукции вазоактивного кишечного пептида, стимулятора реализации пролактина. Короткоживущий прилив секреции пролактина наступает немедленно после окончания удаления молока из вымени.
Пролактин – белок с молекулярной массой 23–25 тыс., который синтезируется лактофорами – ацидофильными клетками гипофиза. Пролактин получен в кристаллическом виде. Пролактин модулирует действие антидиуретического гормона и альдостерона в почках, и таким образом, опосредованно влияет на метаболизм электролитов. У самок пролактин способствует стимуляции и поддержанию функции желтых тел, отсюда его название «лютеотропный». Как препарат, пролактин находит практическое применение в животноводстве при пониженной секреции молочной железы у коров.
Плазматические мембраны молочной железы располагают специфическими рецепторами пролактина, посредством которых гормон осуществляет инактивацию, связанную с мембранами Na+ -K+ -АТФ-азы, активацию синтеза цАМФ с участием ионов кальция, синтез простагландинов и синтез полиаминов, например, спермидина, который усиливает синтез РНК и индукцию синтеза белка в процессе лактации.
Следует указать, что другим важным гормоном, необходимым для синтеза молока у жвачных, является гормон роста. Гормон роста – белок с молекулярной массой 22 000. Имеется интерес использования гормона роста в дополнительном получении молока от коров путем экзогенного введения гормона.
