
ВЗАИМОСВЯЗЬ ОБМЕНА УГЛЕВОДОВ, ЖИРОВ, БЕЛКОВ В ОРГАНИЗМЕ ЖВАЧНЫХ ЖИВОТНЫХ
В учебных пособиях для более детального изложения вопросы обмена углеводов, жиров, белков обычно излагаются обособленно. В реальности основные обмены веществ в организме животного представляют собой единство биохимических процессов. При этом основная стратегия всего клеточного метаболизма организма жвачного животного состоит в получении энергии в виде макроэргических соединений, в первую очередь, из углеводов. Доля углеводов в суточном рационе жвачных животных достигает 80%. Окисление 1 г глюкозы до СО2 и Н2О дает образование 4,2 ккал (17,6 кДж) энергии.
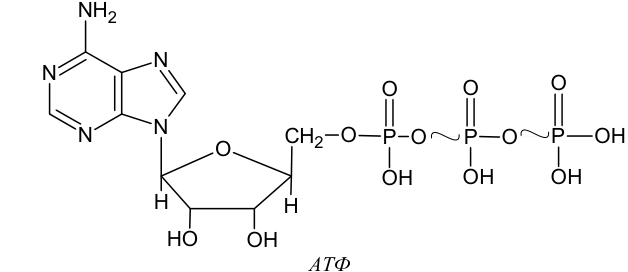
Носителями энергии являются углеводы, жиры, белки кормов. Независимо от их органического строения, получение заключенной в их химических связях энергии достигается только путем окислительновосстановительного распада в ферментативных реакциях биологического окисления. При этом универсальным получаемым макроэргическим соединением – донором энергии является АТФ.
NH2
N
N
O O O
N
N CH2 O P O P O P OH
O
OH OH OH
H H
HO OH
АТФ
Единство метаболизма углеводов, жиров, белков выражается в наличии одних и тех же метаболитов. Эта ситуация позволяет вовлекать продукты обмена углеводов в реакции обмена белков или жиров. Организм животного способен депонировать относительно небольшие количества углеводов в форме гликогена печени и мышц. Значительный избыток углеводов вызывает превращение углеводов в жиры с последующим их депонированием. Компоненты нейтральных жиров – жирные кислоты и глицерин – происходят из продуктов обмена углеводов. Избыток углеводов в организме может привести и к образованию дополнительных количеств холестерола, синтезирующегося из ацетилкоэнзима А.
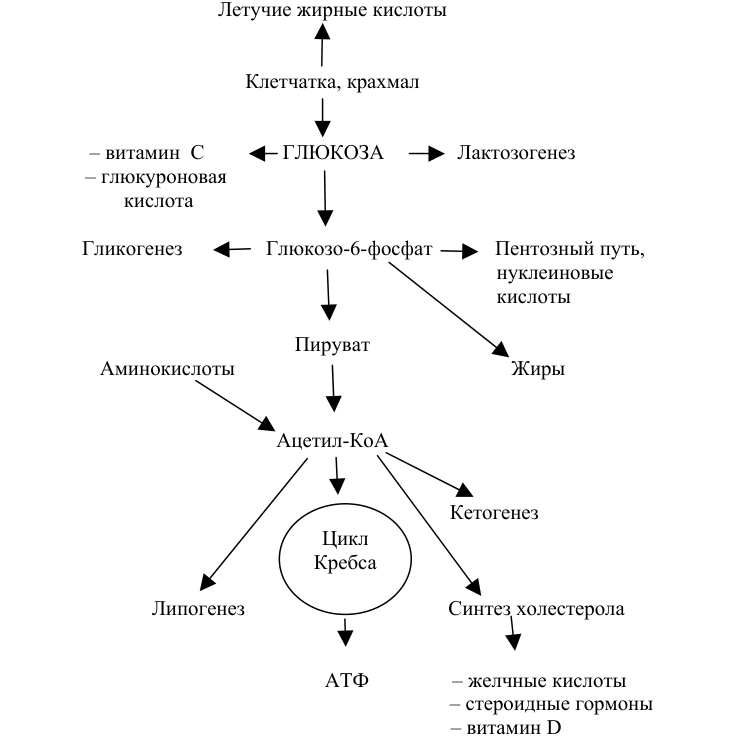
Метаболические пути углеводов, белков, жиров претерпевают интеграцию. Так глюкозо-6-фосфат является перекрестком углеводного обмена в печени. Действительно, глюкозо-6-фосфат под влиянием
глюкозо-6-фосфатазы переходит в свободную глюкозу, которая повышает уровень сахара в крови. Глюкозо-6-фосфат может поступать в процесс синтеза гликогена в печени. В анаэробном гликолизе глюкозо6-фосфат трансформируется в пируват, который в пируват-дегидрогеназной реакции переходит в ацетил-КоА, являющийся в цикле Кребса с реакциями окислительного фосфорилирования источником АТФ. Наконец, глюкозо-6-фосфат может вступать в пентозофосфатный путь, дающий восстанавливающие эквиваленты (НАДФН Н+ ), необходимые для биосинтеза холестерола и жирных кислот, а так же рибозо-5-фосфат, предшественник для биосинтеза нуклеотидов.
Интегрирующим посредником также является ацетил-КоА, образующийся из глюкозы, аланина или из жирной кислоты, который вовлекает все эти соединения в цикл трикарбоновых кислот. Отметим, что если в аэробных условиях окисление молекулы глюкозы приводит к получению 38 молекул АТФ, то в анаэробном гликолизе окисление молекулы глюкозы (до стадии получения молочной кислоты) приводит к получению лишь 2 молекул АТФ. Таким образом, при окислении глюкозы в аэробных условиях выход энергии в 19 раз выше, чем при окислении этой молекулы в анаэробных условиях.
При голодании животного энергетические питательные вещества не поступают из кишечника в ткани, и в печени имеет место минимум гликогена. В этих условиях ткани, использующие глюкозу, являются полностью зависимыми от печеночного глюконеогенеза. Жировая ткань не может быть использована на синтез глюкозы, так как ацетил-КоА, полученный при окислении жирных кислот, не может быть конвертирован в метаболиты глюконеогенеза. Поэтому белки скелетных мышц будут являться энергетическим резервом организма, активными поставщиками углерода для синтеза глюкозы (окисление 1 г белка дает 4,2 ккал, 16,8 кДж).
Мышечные белки распадаются до свободных аминокислот, поступающих затем в печень, где углеродный скелет аминокислот трансформируется в ацетил-КоА, ацетоацетил-КоА, поступающие на синтез кетоновых тел, жирных кислот.
Кетогенные аминокислоты при распаде образуют ацетоацетилКоА, из которого происходит синтез кетоновых тел, поэтому накопление их в организме возможно и при избытке белков в рационе жвачных.
Катаболизм многих аминокислот белков мышц приводит к получению пирувата и альфа-кетоглутарата, которые путем аминирования или переаминирования могут быть превращены в аланин и глутамин. Аланин, таким образом, является количественно важной глюкогенной аминокислотой в печени при голодании животного. Аминокислоты, поступающие в печень, имеют различное назначение. Они могут поступать на биосинтез белков, которые печень постоянно обновляет и которые поступают в кровяное русло.
Взаимосвязь обмена углеводов, белков, жиров
Летучие жирные кислоты
Клетчатка, крахмал
– витамин С ГЛЮКОЗА Лактозогенез
– глюкуроновая
кислота
Гликогенез Глюкозо-6-фосфат Пентозный путь,
нуклеиновые
кислоты
Пируват
Аминокислоты Жиры
Ацетил-КоА
Кетогенез
Цикл
Кребса
Липогенез Синтез холестерола
АТФ – желчные кислоты
– стероидные гормоны
– витамин D
Из печени аминокислоты могут поступать в различные органы на синтез тканевых белков. Часть аминокислот является основой в синтезах нуклеотидов, гормонов, ферментов в печени и других тканях. При голодании определенные мышечные белки деградируют в аминокислоты.
Синтез нуклеопротеинов так же связан с обменом углеводов. За счет пентозофосфатного пути образуются пуриновые (аденин, гуанин) и пиримидиновые основания (урацил, цитозин, тимин) нуклеотидов.
Жирные кислоты запасаются в жировой ткани в форме триглицеридов (триацилглицеридов), которые являются идеальной формой
