
Взаимосвязь обмена углеводов, белков, жиров
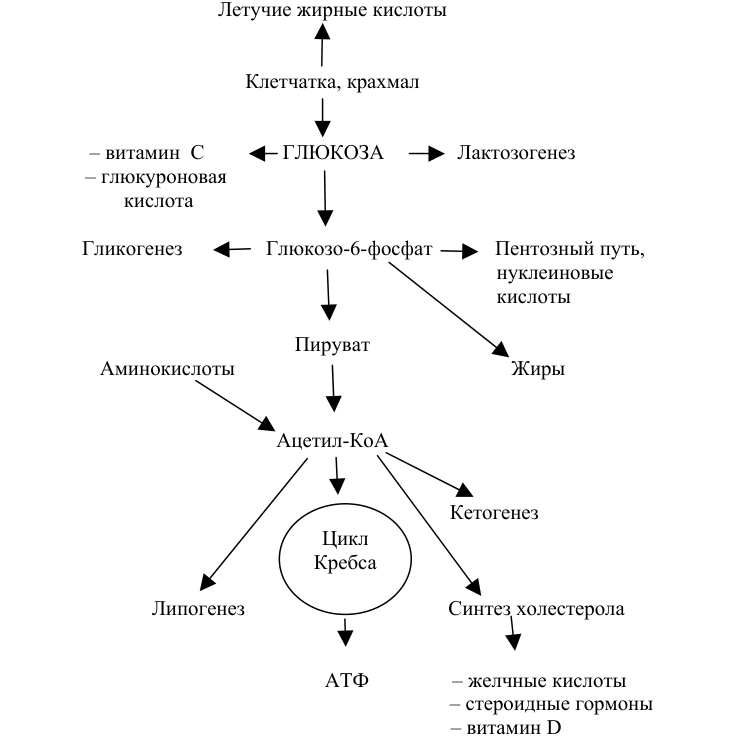
Летучие жирные кислоты
Клетчатка, крахмал
– витамин С ГЛЮКОЗА Лактозогенез
– глюкуроновая
кислота
Гликогенез Глюкозо-6-фосфат Пентозный путь,
нуклеиновые
кислоты
Пируват
Аминокислоты Жиры
Ацетил-КоА
Кетогенез
Цикл
Кребса
Липогенез Синтез холестерола
АТФ – желчные кислоты
– стероидные гормоны
– витамин D
Из печени аминокислоты могут поступать в различные органы на синтез тканевых белков. Часть аминокислот является основой в синтезах нуклеотидов, гормонов, ферментов в печени и других тканях. При голодании определенные мышечные белки деградируют в аминокислоты.
Синтез нуклеопротеинов так же связан с обменом углеводов. За счет пентозофосфатного пути образуются пуриновые (аденин, гуанин) и пиримидиновые основания (урацил, цитозин, тимин) нуклеотидов.
Жирные кислоты запасаются в жировой ткани в форме триглицеридов (триацилглицеридов), которые являются идеальной формой
запаса энергии для животного организма. Окисление 1 г жира в организме приводит к получению 9,3 ккал (38,9 кДж) энергии. Молекулы триглицеридов представляют собой высоко восстановленные молекулы, так как содержат меньше кислорода по сравнению с количеством атомов углерода и водорода. Это означает, что они являются концентрированным источником энергии, превышающим в более чем в 2 раза количество энергии в расчете на 1 г массы углевода или аминокислоты. Дополнительно, жировая ткань содержит меньше эндогенной воды, по сравнению с белками или гликогеном, что позволяет получать из нее максимальное количество энергии при минимальной ее массе.
Жировая ткань также является метаболически важной при голодании животного как источник энергии. При этом снижается инсулин-глюкагоновое отношение с резким увеличением липолиза. Это приводит к подъему уровня жирных кислот в крови, которые могут рассматриваться как альтернативный источник энергии для многих тканей. Мозг не окисляет жирные кислоты, так как они не способны проходить через гематоэнцефалический барьер. Жирные кислоты играют важную роль в печени, обеспечивая за счет бета-окисления большие количества АТФ, необходимого для глюконеогенеза.
В этих условиях ацетил-КоА, образующийся за счет бетаокисления жирных кислот, трансформируется в митохондриях клеток печени в кетоновые тела, которые поступают в кровь, легко проникают через гематоэнцефалический барьер в мозг, являясь хорошим источником энергии для клеток мозга. При длительном голодании мозг на 60–70% удовлетворяет потребность в энергии за счет кетоновых тел. Однако кетоновые тела не могут полностью заменить глюкозу для функций центральной нервной системы.
Следует указать, что уровень глюкозы в крови животного поддерживается в узких границах, тогда как концентрация жирных кислот и кетоновых тел может варьировать в значительных пределах. Постоянный уровень глюкозы в крови связан с абсолютной потребностью в ней мозга. Если концентрация глюкозы в крови упадет ниже 1,5 мМ (1 мМ = 18 мг), то животное впадает в кому от недостатка энергии для мозга. С другой стороны, следует избегать гипергликемии как возможного риска развития гипергликемической комы.
Сердечная мышца использует различные субстраты для получения энергии, но 60–90% общей энергии образуются при окислении жирных кислот. Глюкоза, пируват используются сердечной мышцей в первую очередь после приема корма животным, когда еще уровень свободных жирных кислот в крови остается низким. Только при длительном голодании животного кетоновые тела (ацето-уксусная, бетагидроксимасляная кислоты) будут являться более предпочтительным субстратом в качестве источника для сердечной мышцы.
Гормоны играют ключевую роль в интеграции метаболизма животного. Среди них инсулин и глюкагон играют определяющую роль в метаболическоим гомеостазе глюкозы. Эти два гормона имеют противоположные биохимические эффекты. Инсулин является анаболическим гормоном, ускоряющим синтез гликогена, триглицеридов, белков. Глюкагон – катаболический гормон, который способствует распаду белков и жиров. Глюкагон стимулирует распад гликогена и угнетает синтез этого полисахарида посредством цАМФ. Глюкагон повышает уровень цАМФ в жировых клетках, который активизирует липазу для распада триглицеридов.
Отметим, что плод является также тканью, потребляющей питательные вещества матери. В качестве источника энергии в первую очередь плод использует глюкозу, но могут быть использованы также аминокислоты, молочная кислота, кетоновые тела. Жирные кислоты не проходят сквозь плаценту в плод, однако холестерол липопротеинов низкой плотности является важным предшественником плацентарных стероидов. На протяжении беременности коровы плацента секретирует гормональный полипептид, плацентарный лактоген и два стероидных гормона – эстрадиол и прогестерон. Плацентарный лактоген стимулирует липолиз в жировой ткани. Известно, что состояние голода у беременной коровы наступает более быстро, чем у небеременной. Это является результатом повышенного использования глюкозы и аминокислот растущим плодом. При этом уровень глюкозы, аминокислот и инсулина в крови быстро падает, а уровень глюкагона и плацентарного лактогена повышается, стимулируя липолиз и кетогенез. Потребление глюкозы и аминокислот плодом может быть причиной развития гипогликемии в организме матери.
Нужно помнить, что именно через биохимические показатели, отражающих течение метаболических реакций на молекулярном уровне, возможно своевременно диагностировать те или иные нарушения обмена веществ в организме, а следовательно, и принять необходимые меры к их устранению.
