
В легких эта реакция является обратимой. Парциальное давление СО2 в альвеолах ниже, чем в венозной крови и СО2 поступает из эритроцитов в альвеолярный воздух. Указанные реакции могут протекать в обоих направлениях. Уменьшение количества одного из компонентов уравнения, согласно закону действия масс, направляет ход реакции в сторону этого компонента. Когда СО2 выходит из эритроцитов в альвеолы, реакция пойдет влево с образованием угольной кислоты, удаляя таким образом ионы Н+ . Поэтому в организме не происходит аккумуляции ионов Н+ в артериальной крови здоровых животных, так как СО2 эффективно удаляется через легкие. Если вентиляция легких животного слабая, например, при болезнях, то парциальное давление СО2 в альвеолярном воздухе, а значит и в других тканях, увеличивается, вызывая повышение концентрации Н+ . Напротив, если ситуация не связана с увеличением СО2, то концентрация Н+ в организме будет падать. Следует отметить, что концентрация свободных ионов водорода (Н+ ) в организме животного сравнительно низкая. Например, концентрация Na+ в организме в миллион раз выше концентрации Н+ .
Буферные системы находятся как внутри клеток, так и во внеклеточной жидкости. Бикарбонатная буферная система плазмы крови, как и межклеточной жидкости, представлена слабой углекислотой (Н2СО3) и бикарбонатом натрия (NaНСО3) в отношении 1:20. При поступлении в кровь более сильной кислоты, например, НСl, часть бикарбоната буфера расходуется на нейтрализацию этой кислоты:
NаНСО3 + НСl → NaCl + Н2СО3
При этом дополнительное количество угольной кислоты распадается на Н2О и СО2. СО2 возбуждает дыхательный центр головного мозга, усиливая вентиляцию легких и выведение СО2 из организма. NaС1 выделяется из тканей с мочой. В результате рН среды остается неизмененной. При поступлении в кровь основных соединений они нейтрализуются за счет реакции с угольной кислотой:
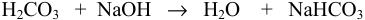
Н2СО3 + NaОН → Н2О + NaНСО3
Полученный бикарбонат идет на пополнение буферной системы. В клетках почечных канальцев Н+ и HCO3− образуются из диоксида и воды. Ионы водорода используются на получение кислого фосфата, а бикарбонат поступает во внеклеточную жидкость. Поэтому в клетках почечных канальцев ионы водорода и бикарбоната образуются всегда в эквимолярных количествах: это необходимо для реабсорбции бикарбоната. Удаление одного иона бикарбоната из организма имеет эффект добавления в организм иона Н+ .
Главенствующим буфером в клубочковом фильтрате является бикарбонатная буферная система. При прохождении мочи сквозь почечные
канальцы большинство ионов бикарбоната реабсорбируется и в кислой моче практически нет бикарбоната. Однако в моче есть две важные буферные системы, которые могут связать ион Н+ , генерируя при этом новый ион бикарбоната:
-
фосфатный буфер (NaН2РО4 / Na2НРО4);
-
аммонийный (NH4Cl / NH4ОН).
Фосфатная буферная система представлена двумя солями фосфорной кислоты с различной степенью выраженности кислотных свойств (NaН2РО4 и Na2НРО4) в отношении 1:4. Фосфатный буфер является основной защитной системой почек. Фосфаты присутствуют в почечном фильтрате на 80% в виде двухвалентного аниона HPO24−. Этот анион реагирует с поступающими в почки Н+ , образуя H2PO−4 :
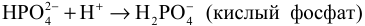
HPO24− + H+ → H2PO−4 (кислый фосфат)
При сильно выраженной кислой среде практически весь фосфат находится в виде полученного кислого фосфата. За счет этой реакции в тканях может быть нейтрализовано большое количество ионов Н+ , поступающих в межклеточную жидкость без расхода ионов Na+ или бикарбоната (HCO3− ).
Со щелочными поступающими соединениями в почках реагирует однозамещенный фосфат буфера – NaН2РО4:
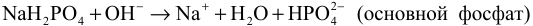
NaH2PO4 + OH− → Na + + H2O + HPO24− (основной фосфат)
Получаемые таким образом как кислые, так и основные фосфаты не накапливаются в тканях и удаляются с мочой. Фосфатная буферная система на основе солей фосфорной кислоты имеет меньшее значение для крови, так как концентрация необходимых фосфатов в крови недостаточна для компенсации количества образующихся ионов Н+ .
Мочевая экскреция Н+ в форме слабой кислоты зависит от двух
факторов:
-
рН мочи;
-
количество фосфатного буфера в почечных канальцах.
При падении рН межклеточной жидкости больше Н+ секретируется почечными эпителиальными клетками, чем необходимо для реабсорбции HCO3−. Это повышение концентрации Н+ приводит к ускорению реакции между Н+ и HPO24− и образованию H2PO−4. Концентрация фосфатного буфера в почечных канальцах постоянно низкая, а поэтому только ограниченные количества ионов Н+ могут быть экскретированы в мочу в виде фосфатов. Для удаления больших количеств ионов Н+ почки наделены функцией образования аммиака.
Аммонийный буфер – это отношение слабого основания (NН4ОН) и соли этого основания (NН4Cl). Сравнительно большое количество NH+ 4 образуется в эпителиальных клетках канальцев в результате дезаминирования глутаминовой кислоты и переходом ее в альфакетоглутарат:
Глутаминовая кислота → NH+4 + альфа-кетоглутарат
Ион аммония переходит в просвет канальца, где вытесняет Na+ из Na2SO4, и в виде (NH4)2SO4 в составе мочи выводится из организма. Свободный ион Na+ возвращается в эпителий почечных канальцев. За счет этих превращений предохраняется выход Na+ из организма.
Таким образом, каждый ион Н+ , экскретируемый в виде NH+4 , восполняет в крови один ион HCO3−. Основное количество диоксида углерода в крови животного находится в виде бикарбоната.
При нормальной внутриклеточной величине рН только около 1% NH3 находится в свободном виде. Аммиак быстро проходит сквозь мембраны клеток и поступает в просвет канальцев (в мочу), где реагирует с ионами Н+ , образуя NH+4 . В форме аммония аммиак не способен реабсорбироваться мембранами клеток почечных трубочек и поэтому выводится из организма в составе мочи. В сутки из организма животного выводится более 50 ммолей аммиака.
При ацидозах усиливается диффузия аммиака в просвет канальцев и за счет притока ионов Н+ рН в жидкости канальцев падает. В этой ситуации NH3 переходит в NH+4 . Экскреция аммония с мочой незначительна в случае повышения рН мочи более 6,0. При ацидозах образование NH+ 4 может быть повышено в 10 раз. Однако при выраженных ацидозах образование NH+ 4 не может полностью возместить выход в мочу таких катионов, как Na+ , создавая их дефицит в организме.
Аммиак очень токсичен для органов и тканей животного. Однако постоянное обезвреживание аммиака обеспечивает его незначительную концентрацию в организме (циркулирующая кровь содержит лишь следы аммиака в форме NH4+ , 1–2 мг на литр). Следовательно, в тканях имеется активный акцептор и донор аминогрупп или аммиака. Такими веществами являются глутаминовая кислота и глутамин. Во всех тканях (мозг, мышцы, почки, печень) аммиак способен связываться с глутаминовой кислотой, образуя глутамин. Глутамин является механизмом временного связывания аммиака и основной формой его транспорта в печень.
Концентрация глутамина в крови составляет 6–10 мг%, что и определяет важность этого амида для организма. Глутамин не токсичен, не ионизирует и поэтому участвует в регуляции рН мочи. В печени
91
