
Мочевина плохо всасывается в канальцах и поэтому значительная ее часть из фильтрата переходит во вторичную мочу. Если содержание мочевины в крови коров составляет 0,03%, то в моче она составляет 2–3%. В сутки с мочой корова выделяет до 100 г мочевины. Конечные продукты метаболизма углеводов, белков, жиров реабсорбируются в кровь только в небольших количествах и животные освобождаются от них путем экскреции мочи. За счет реабсорбции в организм возвращаются около 99% объема ультрафильтрата.
На третьем этапе образования мочи за счет активного транспорта происходит секреция клетками почечных канальцев продуктов метаболизма во вторичную мочу.
Количество суточной мочи у жвачных зависит от характера кормления, количества выпиваемой воды, физической нагрузки. Количество мочи в сутки у коров составляет 6–20 л, у овец – 1–2 л. При многих болезнях скота количество выделяемой мочи значительно уменьшается и это состояние называется олигоурией. Плотность мочи у коров – 1,025– 1,050. Цвет мочи крупного рогатого скота от светло-желтого до темнокоричневого, что объясняется разным составом рационов. Запах мочи у коров может иметь запах ацетона, например при кетонемии.
Корма травоядных включают катионы солей органических кислот (Na+ , K+ , Ca2+ , Mg2+ , NH+4 ) в относительном избытке, которые в значительном количестве удаляются из организма в составе угольной кислоты. Поэтому в моче крупного рогатого скота они появляются в виде солей угольной кислоты: NaHCO3, СаСО3, KНСО3, Са(НСО3)2. Растворы этих солей имеют щелочную реакцию. Действительно:
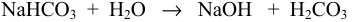
NаНСО3 + Н2О → NаОН + Н2СО3
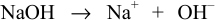
NаОН → Na + + OH –
Поэтому при нормальном метаболизме моча травоядных имеет щелочную реакцию.
Почечный клиренс (почечное очищение) – это показатель, по которому определяют скорость почечной экскреции отдельных веществ из крови. Почечный клиренс – это объем плазмы крови, который в единицу времени (мл/мин) может быть очищен от определенного конкретного вещества. Например, для мочевины величина клиренса составляет 70; это значит, что в течение минуты 70 мл плазмы крови, из взятых 125 мл, полностью освобождаются от мочевины.
Для обеспечения процессов концентрирования и селективного транспорта почки должны иметь источники энергии. Основной расход энергии в форме АТФ в почках связан с процессом реабсорбции NaCI почечными клубочками в межклеточную жидкость.
Почки жвачных животных могут использовать в качестве субстратов для получения АТФ жирные высокомолекулярные карбоно-
вые кислоты, моносахариды, кетоновые тела. Для коры почек важнейшим источником энергии являются жирные кислоты. Основным источником АТФ в почках является аэробный путь окисления субстратов, тогда как анаэробный гликолиз дает всего несколько процентов от всей получаемой АТФ. За счет глюконеогенеза под контролем адреналина и глюкагона кора почек способна синтезировать глюкозу быстрее, чем печень, но почки не поставляют значительных количеств глюкозы в кровяное русло. Субстратом для глюконеогенеза в почках в основном является глутамин. Глюкоза, синтезируемая в коре почек, служит важным источником энергии и для мозгового слоя.
Почки имеют активный фермент Na+ ,K+ -АТФ-азу, который гидролизует молекулу АТФ в присутствии натрия и калия с использованием высвобождающейся энергии на активный перенос натрия в ткани:
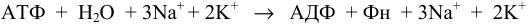
АТФ + H2O + 3Na + + 2K + → АДФ + Фн + 3Na + + 2K +
Гидролиз одной молекулы АТФ обеспечивает перенос трех ионов натрия и двух ионов калия.
Роль почек видна в поддержании постоянства кислотнощелочного равновесия организма. Выведение многих кислых продуктов метаболизма только в форме катионов (Na+ , K+ ) привело бы к значительному снижению содержания последних в организме. Однако почки располагают несколькими механизмами, позволяющими, с одной стороны, обеспечить выведение кислот, а с другой – сохранить необходимые для организма катионы.
Одним из таких механизмов является возможность выведения слабых кислот как таковых. Находящиеся в фильтрате анионы кислот (АК– ) соединяются с ионом водорода, образующимся при диссоциации угольной кислоты (H2CO3 → H+ + HCO3− ) с образованием слабодиссоциирующих карбоновых кислот по схеме:
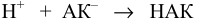
Н + + АК – → НАК
Однако сильные кислоты выделяться с мочой не могут как таковые. В этом случае для экономии натрия используется другой, менее важный катион – ион аммония (NH+4 ). Источником этого иона является процесс дезаминирования аминокислот, и прежде всего – глутамина. В результате этого типа реакции образуется свободный аммиак, который соединяется с протоном, образуя ион аммония:
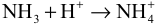
NH3 + H+ → NH+4
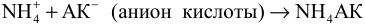
NH+4 + АК− (анион кислоты) → NH4АК
Таким образом, участвуя в удалении из организма кислых продуктов метаболизма, почки при этом выполняют и сберегающую

97
натрий функцию. Экономия натрия достигается и за счет превращения Na2НРО4 в NaН2РО4. В плазме крови, и следовательно, в первичной моче, преобладает двухосновной фосфат, который переходит за счет иона водорода в одноосновной фосфат, тогда как другой ион натрия из просвета почечного канальца поступает обратно в кровь. Таким образом, в основе этих превращений лежит секреция ионов водорода и реабсорбция ионов натрия и бикарбоната.
Внутрисекреторная функция почек связана с синтезом белка ренина (340 аминокислот), фермента аспартил-протеиназы (КФ 3.4.23.15), обладающего протеолитическим действием. Субстратом в реакции с участием ренина является белок ангиотензиноген, поступающий из печени в кровь. В составе его молекулы свыше 400 аминокислот. Ренин катализирует гидролиз ангиотензиногена плазмы крови, образуя ангиотензин I, состоящий из 10 аминокислот. Ангиотензин конвертирующий фермент катализирует превращение ангиотензина I в ангиотензин II (8 аминокислот). Ангиотензин II быстро распадается под действием ангиотензиназы, присутствующей в многих тканях. Период полураспада его составляет одну минуту. Ангиотензин II оказывает влияние на кору надпочечников, стимулируя выделение альдостерона. Альдостерон повышает реабсорбцию натрия и воды в канальцах, что приводит к изменению кровяного давления. Вероятно, повышение уровня ренина является важной причиной развития гипертонии. Таким образом, система ренин–ангиотензина играет определяющую роль в повышении кровяного давления и уменьшении выведения из организма натрия и воды.
Почки также стимулируют эритропоэз. Пролиферативная активность эритропоэза контролируется эритропоэтином (цитокином) почек. Синтезируемый в печени профактор (бета-глобулин) переходит в почки, где превращается в активный эритропоэтин. Эритропоэтин – полипептидный гормон (мол. м. = 51 000), синтезируемый в почках; он контролирует дифференцировку стволовых клеток костного мозга. В условиях недостатка кислорода в организме эритропоэтин в течение нескольких часов трансформирует недифференцированные клетки костного мозга в эритроциты. При должном уровне эритропоэтина в почках синтез гемоглобина в костном мозге протекает активно. Хронические болезни почек приводят к прогрессивным потерям эритропоэтин-синтезирующих клеток, что является причиной снижения синтеза эритропоэтина и развития анемии. В настоящее время эритропоэтин получают методом генной инженерии.
В моче животного содержится свыше 200 различных органических и неорганических компонентов. Состав мочи формируется из компонентов крови, однако отличия их по составу весьма значительны. В частности, моча не содержит в норме таких компонентов плазмы крови, как белки, полипептиды, глюкоза. Экскреторная функция почек находится под контролем центральной нервной системы, гормонов
