
вые кислоты, моносахариды, кетоновые тела. Для коры почек важнейшим источником энергии являются жирные кислоты. Основным источником АТФ в почках является аэробный путь окисления субстратов, тогда как анаэробный гликолиз дает всего несколько процентов от всей получаемой АТФ. За счет глюконеогенеза под контролем адреналина и глюкагона кора почек способна синтезировать глюкозу быстрее, чем печень, но почки не поставляют значительных количеств глюкозы в кровяное русло. Субстратом для глюконеогенеза в почках в основном является глутамин. Глюкоза, синтезируемая в коре почек, служит важным источником энергии и для мозгового слоя.
Почки имеют активный фермент Na+ ,K+ -АТФ-азу, который гидролизует молекулу АТФ в присутствии натрия и калия с использованием высвобождающейся энергии на активный перенос натрия в ткани:
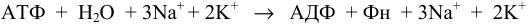
АТФ + H2O + 3Na + + 2K + → АДФ + Фн + 3Na + + 2K +
Гидролиз одной молекулы АТФ обеспечивает перенос трех ионов натрия и двух ионов калия.
Роль почек видна в поддержании постоянства кислотнощелочного равновесия организма. Выведение многих кислых продуктов метаболизма только в форме катионов (Na+ , K+ ) привело бы к значительному снижению содержания последних в организме. Однако почки располагают несколькими механизмами, позволяющими, с одной стороны, обеспечить выведение кислот, а с другой – сохранить необходимые для организма катионы.
Одним из таких механизмов является возможность выведения слабых кислот как таковых. Находящиеся в фильтрате анионы кислот (АК– ) соединяются с ионом водорода, образующимся при диссоциации угольной кислоты (H2CO3 → H+ + HCO3− ) с образованием слабодиссоциирующих карбоновых кислот по схеме:
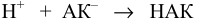
Н + + АК – → НАК
Однако сильные кислоты выделяться с мочой не могут как таковые. В этом случае для экономии натрия используется другой, менее важный катион – ион аммония (NH+4 ). Источником этого иона является процесс дезаминирования аминокислот, и прежде всего – глутамина. В результате этого типа реакции образуется свободный аммиак, который соединяется с протоном, образуя ион аммония:
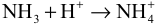
NH3 + H+ → NH+4
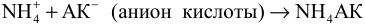
NH+4 + АК− (анион кислоты) → NH4АК
Таким образом, участвуя в удалении из организма кислых продуктов метаболизма, почки при этом выполняют и сберегающую

97
натрий функцию. Экономия натрия достигается и за счет превращения Na2НРО4 в NaН2РО4. В плазме крови, и следовательно, в первичной моче, преобладает двухосновной фосфат, который переходит за счет иона водорода в одноосновной фосфат, тогда как другой ион натрия из просвета почечного канальца поступает обратно в кровь. Таким образом, в основе этих превращений лежит секреция ионов водорода и реабсорбция ионов натрия и бикарбоната.
Внутрисекреторная функция почек связана с синтезом белка ренина (340 аминокислот), фермента аспартил-протеиназы (КФ 3.4.23.15), обладающего протеолитическим действием. Субстратом в реакции с участием ренина является белок ангиотензиноген, поступающий из печени в кровь. В составе его молекулы свыше 400 аминокислот. Ренин катализирует гидролиз ангиотензиногена плазмы крови, образуя ангиотензин I, состоящий из 10 аминокислот. Ангиотензин конвертирующий фермент катализирует превращение ангиотензина I в ангиотензин II (8 аминокислот). Ангиотензин II быстро распадается под действием ангиотензиназы, присутствующей в многих тканях. Период полураспада его составляет одну минуту. Ангиотензин II оказывает влияние на кору надпочечников, стимулируя выделение альдостерона. Альдостерон повышает реабсорбцию натрия и воды в канальцах, что приводит к изменению кровяного давления. Вероятно, повышение уровня ренина является важной причиной развития гипертонии. Таким образом, система ренин–ангиотензина играет определяющую роль в повышении кровяного давления и уменьшении выведения из организма натрия и воды.
Почки также стимулируют эритропоэз. Пролиферативная активность эритропоэза контролируется эритропоэтином (цитокином) почек. Синтезируемый в печени профактор (бета-глобулин) переходит в почки, где превращается в активный эритропоэтин. Эритропоэтин – полипептидный гормон (мол. м. = 51 000), синтезируемый в почках; он контролирует дифференцировку стволовых клеток костного мозга. В условиях недостатка кислорода в организме эритропоэтин в течение нескольких часов трансформирует недифференцированные клетки костного мозга в эритроциты. При должном уровне эритропоэтина в почках синтез гемоглобина в костном мозге протекает активно. Хронические болезни почек приводят к прогрессивным потерям эритропоэтин-синтезирующих клеток, что является причиной снижения синтеза эритропоэтина и развития анемии. В настоящее время эритропоэтин получают методом генной инженерии.
В моче животного содержится свыше 200 различных органических и неорганических компонентов. Состав мочи формируется из компонентов крови, однако отличия их по составу весьма значительны. В частности, моча не содержит в норме таких компонентов плазмы крови, как белки, полипептиды, глюкоза. Экскреторная функция почек находится под контролем центральной нервной системы, гормонов
гипофиза и надпочечников. Поэтому болевые ощущения и стрессовые ситуации могут рефлекторно вызвать анурию (прекращение образования мочи), а болезни ЦНС, гипофиза, надпочечников могут привести к полиурии (повышенное выделение мочи).
Органические компоненты мочи представлены в основном азотсодержащими веществами – продуктами обмена белков. Одним из таких веществ мочи крупного рогатого скота является мочевина. На ее долю приходится более 80% от общего азота мочи. Количество выделяемой мочи увеличивается при скармливании рационов, богатых белками. В моче жвачных содержится небольшое количество мочевой кислоты, образующейся при катаболизме пуриновых оснований.
В моче содержится креатин и креатинин – ангидрид креатина. Креатин играет важнейшую роль в метаболизме макроэргических фосфатов. Количество креатинина в моче зависит от функциональной активности мышечной ткани животного, где креатинфосфат обеспечивает энергией мышечное сокращение. Креатин находится в моче в очень небольших количествах, тогда как содержание креатинина составляет у крупного рогатого скота 0,09%. Увеличение креатина в моче при диабете, миозитах, мышечных дистрофиях при недостаточности витамина Е приводит к развитию креатинурии.
Моча жвачных в значительном количестве содержит гиппуровую кислоту (комплекс бензойной кислоты и глицина).
В сутки с мочой коровы выделяется до 150 г этой кислоты. В моче жвачных содержится небольшое количество индоксилсерной кислоты (индикан). Увеличение ее количества в моче свидетельствует о скорости гниения белков в толстом кишечнике, о функциональном состоянии печени, преджелудков. Из безазотистых компонентов в моче постоянно присутствуют органические кислоты, такие как щавелевая, молочная, лимонная, масляная, ацетоуксусная, глюкуроновая, фенолы.
На долю минеральных соединений мочи приходится около 40% ее плотного осадка. Анионы мочи представлены хлором, остатками фосфорной и серной кислот. Постоянными катионами мочи являются: натрий, калий, кальций, магний и аммонийный ион. Выделение с мочой натрия и калия превышает выделение кальция и магния, так как щелочноземельные элементы в значительной степени выделяются из организма желудочно-кишечным трактом. Значительное увеличение уровня аммонийных ионов (аммиака мочи) наблюдается при ацидозах.
Признаком патологии может быть обнаружение в моче компонентов, которых в норме нет. В моче здоровых животных отсутствует белок. То небольшое количество полипептидов, которое может выделяться, не обнаруживается обычными качественными реакциями, используемыми в практической работе. Наиболее простым способом обнаружения являются реакции, основанные на осаждении белка концентрированными кислотами (азотная, сульфосалициловая).
