Приведенные материалы свидетельствуют, что для прогрессивного роста мелких антральных фолликулов до стадии доминантного фолликула необходимо взаимодействие двух гормонов гипофиза – ФСГ и ЛГ.
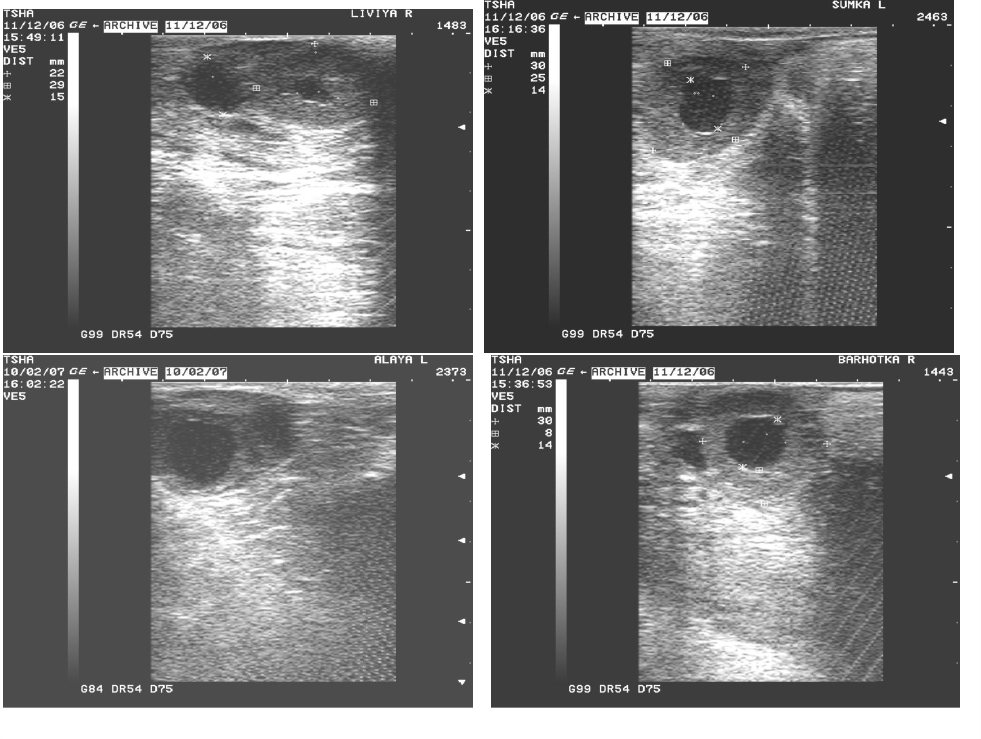
Динамические эхографические наблюдения за параметрами фолликулогенеза показали, что рост и развитие антральных фолликулов, как у половозрелых, так и неполовозрелых самок крупного рогатого скота имеет циклический характер и происходит волнообразно. В течение каждой волны фолликулярного роста из когорты, начавших активно расти мелких антральных фолликулов, размером 3…5 мм, формируется доминантный фолликул, отличающийся от субдоминантных более крупными размерами. Четко выраженный циклический рост антральных фолликулов у неполовозрелых (препубертатных) телок начинает регистрироваться с 2-х недельного возраста. Он носит незавершенный характер: антральные фолликулы хотя и достигают крупных размеров, до стадии овуляторной зрелости не развиваются и подвергаются атрезии. Смена одного ановуляторного доминантного фолликула на другой происходит в среднем через каждые 7 дней. Размеры доминантного фолликула с каждой новой волной фолликулярного роста возрастают: с 8,5 мм в возрасте 2 нед до 11,5 мм в возрасте 34 нед (Evans A.S.O. et al., 1994). Абортивный рост антральных фолликулов у препубертатных телок объясняют повышенной чувствительностью гипоталамуса к негативным воздействиям низких доз эстрадиола через механизмы отрицательной обратной связи. В первый проявленный овуляторный половой цикл размер доминантного фолликула составляет в среднем 13 мм.
У циклирующих половозрелых телок и полновозрастных небеременных коров смена одного доминантного фолликула на другой происходит в среднем через каждые 8,5 дня с колебаниями от 6 до 14 дней (Hamilton S.A. et al., 1995). В течение одного цикла, как правило, регистрируется две или три волны фолликулярного роста (с колебаниями от
одной до четырех). Доминантные фолликулы, образующиеся в начале и средине лютеиновой фазы полового цикла, не способны при активно функционирующем желтом теле достичь овуляторной стадии зрелости и поэтому подвергаются обратному развитию. При спонтанной или индуцированной с помощью препаратов ПгФ-2 альфа регрессии желтого тела полового цикла доминантный фолликул последней волны роста вступает в финальную стадию развития, созревает и овулирует. Для достижения предовуляторной стадии зрелости лидирующему фолликулу с момента его эхографической идентификации необходимо в среднем 6,9 дня (Hamilton S.A. et al., 1995). На стадии овуляторной зрелости доминантные фолликулы у коров достигают в среднем 16…16,5 мм (Ginther O.J. et al., 1989; Hamilton S.A. et al., 1995), а у телок – 13 мм в диаметре (Ginther O.J. et al., 1989).
Волнообразный характер фолликулярного роста также сохраняется в течение большей части беременности. Рост антральных фолликулов в этот период носит незавершенный характер. Высокие концентрации лютеального и/или плацентарного прогестерона через механизмы отрицательный обратной связи блокируют преовуляторный выброс ЛГ и соответственно процесс созревания доминантных фолликулов и их овуляции. Смена одного ановуляторного доминантного фолликула на другой происходит в среднем через каждые 6…12 дней. С каждой волной фолликулярного роста эхографические размеры доминантного фолликула прогрессивно уменьшаются. Так, если в начале беременности доминантные фолликулы первой и второй волн фолликулярного роста достигают в размере 15,7 и 13,1 мм, то в конце беременности их размеры уменьшаются соответственно до 8,5 мм. В последние 3 нед стельности высокие концентрации плацентарных эстрогенов через механизмы обратной связи истощают запасы гонадотропинов в гипофизе (аденогипофизе), что ведет к прекращению циклического роста фолликулов в яичниках.
После родов у новотельных коров быстро восстанавливаются запасы гонадотропинов (ФСГ и ЛГ) в передней доле гипофиза и возобновляется
циклический рост антральных фолликулов. Первый доминантный фолликул образуется уже на 8 - 10 день после отела, который может овулировать с образованием желтого тела, трансформироваться в кисту яичника, либо, не достигнув стадии овуляторной зрелости, подвергнуться атрезии и запустить новую овуляторную или ановуляторную волну роста фолликулов.
5.2. Компактные и кистозные желтые тела полового цикла
Компактные и кистозные желтые тела образуются после овуляции на месте овулирующего фолликула и эффективно распознаются с помощью УЗИ. При сканировании яичников компактные желтые тела полового цикла визуализируются как эхопозитивные овальные или округлые образования с четко очерченными контурами (рис.11б). Их диаметр составляет 10…30 мм и
более.