
Кистозные желтые тела от желтых тел солидного типа отличаются только тем, что содержат различную по форме и размеру полость с анэхогенным содержимым. Примеры эхограмм яичников кистозными желтыми телами приведены на рис. 12.
По данным литературы (Kito S. et al., 1989; Kahn W., 1989; Kastelic J.P. et al., 1990), кистозные желтые тела встречаются в 37,2…79,0 % случаев, в том числе с размером полости 10 и более мм – в 24,4…27,5%, а 20 мм и более – в 8,9% случаев. Практически все исследователи рассматривают их как один из анатомических вариантов желтого тела полового цикла. Причина их образования неизвестна. В полости кистозных желтых тел часто обнаруживают сгустки крови. Кистозная жидкость содержит много прогестерона: почти в 2,4 раза больше, чем в содержимом лютеиновых кист (Kondoh M. et al., 1990). Коровы с кистозными желтыми телами, как правило, проявляют нормальные половые циклы, оплодотворяются и имеют достаточное количество лютеиновой ткани, вырабатывающей прогестерон, необходимый для поддержания беременности.
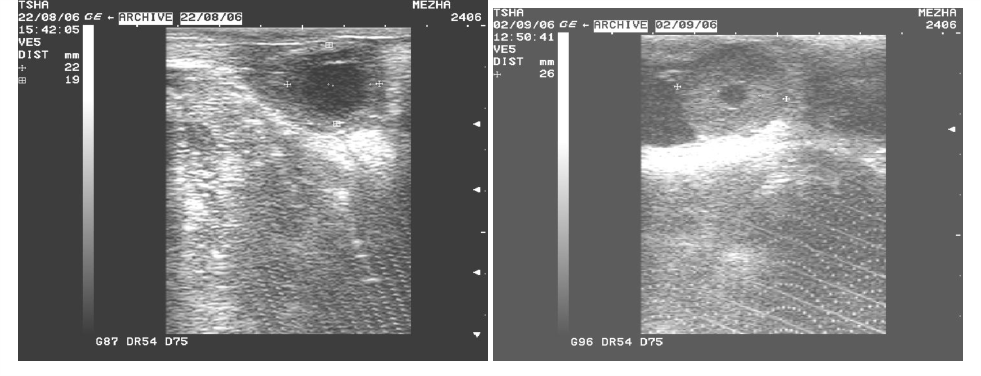
При инволюции кистозного желтого тела полового цикла или его трансформации в желтое тело беременности полость исчезает (Kito S. et al., 1989; Kastelic J.P. et al., 1990). При безрезультатном осеменении полость
размером более 10 мм исчезает в желтом теле в среднем к 17,4 дню полового цикла, при развитии беременности к 20,2 дню после осеменения (Kastelic J.P. et al., 1990). Интересно отметить, что даже при развитии на 7 день после искусственного осеменения кистозного желтого тела с размером полости более 15 мм вероятность наступления беременности у коров сохраняется (Kito S. et al., 1989). На ранних стадиях лютеогенеза кистозные желтые тела (рис.13) с полостью более 20 мм могут симулировать лютеиновые кисты.
5.3. Кисты яичников
Кисты яичников являются достаточно распространенной дисгормональной патологией и причиной бесплодия у коров. В среднем они регистрируются у 3,8-10,5% бесплодных коров. Они возникают из неовулировавщих зрелых фолликулов при ановуляторном половом цикле изза несвоевременной и/или недостаточной секреции ЛГ в период половой охоты вследствие неспособности гипоталамо-гипофизарной системы адекватно реагировать на эстрогенную стимуляцию через механизмы положительной обратной связи.
По строению (наличию/отсутствию пристеночной лютеиновой ткани) и показателю концентрации прогестерона в крови/молоке кисты яичников делят на лютеиновые и фолликулярные.
а б
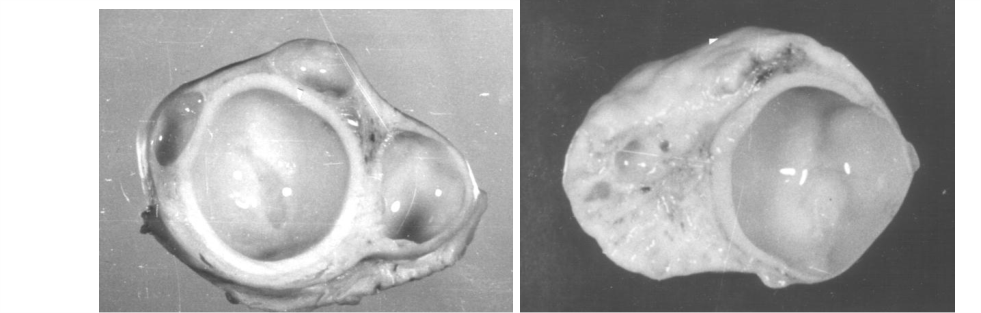
Рис. 14. Яичники с лютеиновыми кистами на разрезе: а) стенка кисты на всем протяжении выстлана слоем лютеиновой ткани; б) верхушка кисты нелютеинизирована, полупрозрачна; лютеиновая ткань визуализируется в виде ободка на базальной и боковой поверхности кисты.
Лютеиновые кисты могут быть как толстостенными (рис.14а), так и тонкостенными (рис.14б) жидкостными образованиями и достигают в размере 26,8±2,0 мм. Их внутренняя поверхность частично или на всем протяжении выстлана слоем лютеиновой ткани толщиною до 1…5 мм. По внешнему виду, микро- и ультрамикроскопическому строению она идентична ткани желтых тел полового цикла (Дюльгер Г.П., 1992; 2010; Gasse H.,1983; Peukert-Adam J.,1981) и проходит те же стадии развития: образования, расцвета и регрессии.
Тонкостенные лютеиновые кисты встречаются чаще (Дюльгер Г.П., 1992; Peukert-Adam, 1981) или с такой же частотой (Leidl W. et al.,1979), что и толстостенные.
Фолликулярные кисты представляют собой тонкостенные или относительно толстостенные напряженно или мягко флюктуирующие шаровидные образования (рис.15) диаметром 28,4±1,7 мм.
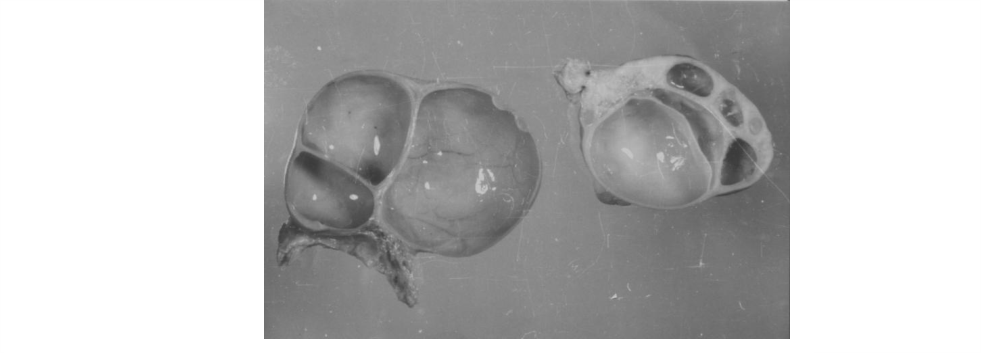
В большинстве случаев они определяются как тонкостенные структуры с полупрозрачной и отчетливо флюктуирующей стенкой. При расположении в толще яичника и выраженном фиброзе стенки как относительно толстостенные образования с непрозрачной и нечетко флюктуирующей стенкой.
Для кист яичников свойственен транзиторный характер существования (Шипилов В.С., Дюльгер Г.П., 1990; Carrol D. et al., 1990; Cook D. et al., 1990;
