
Динамика концентрации кортизола у коров в связи со сроком лактации (n = 12), M ± m
| Месяцы лактации | Концентрация кортизола, |
|---|---|
| нмоль/л | |
| 1 | 47,01±1,59 |
| 2 | 82,38±2,24 |
| 3 | 64,04±2,07 |
| 4 | 34,31±0,98 |
| 5 | 44,29±0,85 |
| 6 | 68,5±1,84 |
| 7 | 47,9±1,19 |
| 8 | 34,56±1,25 |
| 9 | 24,47±1,34 |
| 10 и более | 45,44±0,55 |
Результаты исследования показывают зависимость секреции кортизола от срока отела. Так, в течение месяца перед родами уровень гормона постепенно падает, однако за 2 дня до отела отмечается активация синтеза кортизола. В дальнейшем, в течение первого месяца лактации уровень кортизола стабилизируется, но становится ниже, чем в последний месяц стельности. При наблюдении динамики концентрации кортизола в продуктивный период у лактирующих коров можно выделить на втором месяце его увеличение, соответствующее пику лактации.
Катехоламины
Мозговой слой надпочечников является продолжением симпатической нервной системы. В хромаффинных клетках мозгового вещества надпочечников и адренергических симпатических волокнах постганглионарных нейронов образуются из тирозина гормоны – адреналин, норадреналин и дофамин, содержащие в своей структуре 3,4-диоксифенольное (катехоловое) кольцо, а поэтому названные катехоламинами. На долю адреналина приходится порядка 80% всех катехоламинов.
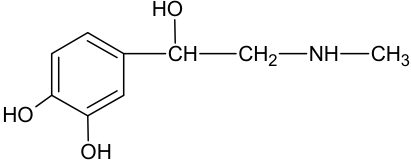
HO
CH CH2 NH CH3
HO
OH
Адреналин
Образующиеся под действием цитозольных ферментов норадреналин и адреналин в окончаниях симпатических нервов и мозговом слое надпочечников поступают в секреторные гранулы, что предохраняет их от действия ферментов деградации. В хромаффинных гранулах мозгового слоя надпочечников катехоламины прочно связаны с АТФ и специфическими белками – хромогранинами, что предотвращает диффузию гормонов из гранул в цитоплазму.
Адреналин и норадреналин синтезируются также клетками симпатической нервной системы и поэтому рассматриваются как симпатомиметические нейромедиаторы. В норме содержание катехоламинов в крови животного низкое, но при эмоциональных возбуждениях, физических нагрузках их уровень резко возрастает, особенно в мышцах, обеспечивая таким образом защитные реакции организма.
Катехоламины проявляют свои эффекты через посредство адренэргических рецепторов. Их мишенями являются клетки скелетных и сердечной мышц, печени, жировой ткани. Адреналин влияет на углеводный обмен за счет повышения уровня глюкозы в крови в результате ускорения распада гликогена в мышцах и печени.
Эффект адреналина ярко проявляется в ускорении гликогенолиза в скелетной мышце с накоплением лактата до 500 мг%, который поступает частично в печень, где превращается в гликоген. Адреналин мобилизует гликоген печени, по крайней мере, тремя различными механизмами. Во-первых, через стимуляцию глюкагона. Во-вторых, адреналин связывается на поверхности клеток печени с рецепторами, что приводит на мембране к активации фермента аденилатциклазы с увеличением внутриклеточного уровня цАМФ. В свою очередь, это вызывает два взаимосвязанных эффекта – увеличение скорости гликолиза и понижение скорости гликогенеза. В-третьих, образование инозитолтрифосфата под влиянием адреналина стимулирует реализацию Са2+ из эндоплазматического ретикулума клеток с последующей активацией различных фосфорилаз, прежде всего, фосфорилазы гликогена. Все эти механизмы приводят к повышению уровня глюкозо-6-фосфата, необходимого для гликолиза и получения АТФ в мышцах.
Однако адреналин активирует процессы утилизации глюкозы и через стимуляцию выхода инсулина и тироксина, что имеет важное
значение для мобилизации защитных механизмов в неблагоприятных условиях для организма. В жировой ткани адреналин усиливает липолиз с выходом свободных жирных кислот и глицерина. В скелетных мышцах под влиянием адреналина активируется гликолиз с выходом пирувата и лактата, в то же время подавляется протеолиз и уменьшается выход аланина и глутамина. Также известно, что адреналин усиливает выделение вазопрессина и ренина, что приводит к сохранению воды в организме. Адреналин усиливает и учащает сердечные сокращения, повышает артериальное давление, расслабляет гладкую мускулатуру бронхов, кишечника, расширяет сосуды мышц и сердца, суживает сосуды кожи, слизистых оболочек и органов брюшной полости.
Норадреналин практически не оказывает влияния на углеводный обмен. Он повышает давление в основном за счет диастолического, вызывая сужение артериол мышц. Кроме того, через α-рецепторы гормон опосредует ряд физиологических проявлений в различных органах: сокращение артериол кожи, слизитых оболочек и органов брюшной полости, сокращение сфинктеров, расширение зрачка. Кроме того, именно норадреналин стимулирует секрецию АКТГ в передней доле гипофиза.
Распад катехоламинов происходит в печени за счет реакций метилирования, окислительного дезаминирования, синтеза парных соединений, выводимых из организма с мочой.
Половые гормоны
Основная функция половых гормонов – обеспечение развития, роста, регуляция репродуктивной системы. Андрогены – мужские половые гормоны, их молекулярная структура включает 19 атомов углерода. Эстрогены – женские половые гормоны, включающие 18 атомов углерода и одно ароматическое ядро, а также прогестерон, представляющий собой структуру С21-стероид.
Андрогены
Андрогены продуцируются в основном в клетках Лейдига семенников, в небольшом количестве – в яичниках и коре надпочечников животных обоих полов. Андрогены влияют на развитие, поддержание и функции мужских репродуктивных органов, на развитие вторичных половых признаков. Они оказывают выраженный анаболический эффект, приводящий к усвоению азота, увеличению мышечной и костной ткани. Влияя на нервную систему, андрогены определяют характерное половое поведение. Рецепторы для андрогенов выявлены в мозге, мышцах и в других тканях-мишенях.
Основной мужской половой гормон – тестостерон (от лат . testis – семенник), а из мочи самцов выделяют андростерон, являющийся продуктом распада тестостерона.
