
CH3 OH
CH3
O
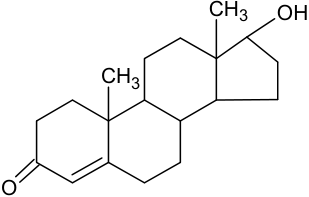
Тестостерон
Синтез и выделение андрогенов железами происходит непрерывно. Можно рассматривать тестостерон как прогормон, поскольку в различных тканях вне семенников он трансформируется в 5-α-дигидротестостерон. В клетках-мишенях тестостерон связывается с белкамирецепторами в ядре, вызывая изменения экспрессии генов и метаболизма. Недостаток тестостерона приводит к снижению синтеза белков тканей, ожирению, утрачивается волосяной покров. Функции семенников находятся под контролем ЛГ и ФСГ передней доли гипофиза.
Получил распространение в практике лечения низкой активности мужских половых желез препарат метилтестостерон. Тестостеронпропионат, эфир тестостерона, обладает более длительным биологическим эффектом, чем нативный гормон, так как медленнее рассасывается в тканях. Печень является основным органом катаболизма тестостерона. Период полураспада его составляет около 20 минут. Продукты распада конъюгируют и выделяются через почки в виде сульфатов и глюкуронидов.
Женские половые гормоны
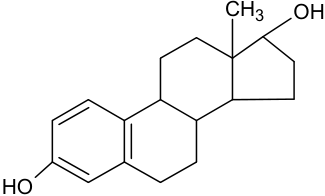
Женские половые гормоны – эстрогены и прогестерон, синтезируются в яичниках, плаценте, надпочечниках в возрастающих количествах во второй стадии беременности и носят циклический характер. Наиболее активные эстрогены (от греч . oistros – страстное влечение) – эстрадиол и эстрон, синтезируются в яичниках, тогда как плацента синтезирует как эти стероиды, так и эстриол. Основная функция гормонов яичников – подготовка женской половой системы к размножению: созревание примордиальных зародышевых клеток, подготовка тканей для имплантации бластоцисты, контроль времени овуляции, обеспечение регуляции родов и лактации. Тканями-мишенями для эстрогенов являются матка, влагалище, молочная железа. Образование эстрогенов находится под контролем гипоталамуса, ФСГ и ЛГ передней доли гипофиза. Эстрогены оказывают эффекты на основные обмены веществ самки, включая усиление липогенеза в жировой ткани, синтез ряда белков в печени, включая трансферрин, церулоплазмин. Подобно
андрогенам, эстрогены оказывают влияние на формирование костной ткани, на сердечно-сосудистую систему, процесс свертывания крови.
CH3 OH
HO
Эстрадиол
Яичниковый стероидогенез проходит в клетках эпителия, выстилающих полость фолликула, в клетках внутренней теки и значительно меньше в строме. Биологически наиболее активен эстрадиол, бóльшая часть которого образуется в фолликуле, в меньшей степени гормон синтезируется желтым телом. Уровень этого гормона в крови является показателем созревания фолликула. В наших исследованиях концентрации эстрадиола у коров, приходящих в охоту, составляли 2346,8±31,2 пмоль/л, тогда как содержание гормона в лютеальную фазу оказалось на уровне 346,4±12,4 пмоль/л. Эстрон образуется путем периферической ароматизации эстрадиола. Основным источником эстриола является гидроксилирование эстрадиола и эстрона в печени. Секретируемые в кровь эстрогены конъюгируются секс-стероидсвязывающим глобулином и в меньшей степени альбуминами крови.
Прогестерон секретируется желтым телом, а также корой надпочечников, плацентой, где используется как предшественник для биосинтеза стероидных гормонов. Продукция прогестерона находится под контролем только ЛГ. Прогестерон необходим для фиксации оплодотворенного яйца к слизистой матки и для развития эмбриона в первой половине беременности. Стимулирует развитие ткани молочной железы.
Во время беременности у коров проявляется гестагенный профиль крови за счет активного функционирования желтого тела. Прогестерон является одним из ключевых гормонов, поддерживающих беременность. Корова считается беременной, если концентрация прогестерона составляет 1–2 нг/мл крови (С. Ю. Зайцев, Ю. В. Конопатов, 2005). Плацента также становится эндокринной железой и секретирует ряд гормонов, в том числе и гонадотропные (главным образом, лютеинизирующий гормон), а также эстрогены. Мы провели
исследование содержания прогестерона и эстрадиола в сыворотке крови коров на различных сроках стельности (табл. 11).
Таблица 11
Динамика концентрации прогестерона и эстрадиола у коров в связи со сроком стельности (n = 12), M ± m
| Месяцы стельности | Концентрация эстрадиола, пмоль/л | Концентрация прогестерона, нмоль/л |
|---|---|---|
| 1 | 714,6±19,1 | 16,73±0,7 |
| 2 | 519,12±13,2 | 17,71±0,38 |
| 3 | 798,4±24,6 | 16,07±0,24 |
| 4 | 999,21±36,3 | 30,66±0,57 |
| 5 | 1063,7±48,6 | 22,85±0,66 |
| 6 | 1288,4±41,9 | 24,89±0,79 |
| 7 | 699,18±32,3 | 28,71±0,42 |
| 8 | 1320,1±45,6 | 29,15±0,39 |
| 9 | 739,88±23,6 | 27,93±0,48 |
| 10 дней до отела | 990,6±8,25 | 8,91±0,22 |
Как показывают результаты, приведенные в таблице, в течение всего срока стельности наблюдается довольно высокое содержание прогестерона, причем с 4 по 9 месяцы стельности его уровень довольно стабилен. И лишь перед отелом прослеживается тенденция к регрессу желтого тела, о чем свидетельствует выраженное снижение концентрации гормона в крови. Также заметно и увеличение выработки эстрадиола с 4 месяца стельности. По-видимому, в этот период активизируется плацентарный гормонопоэз. В отличие от прогестерона, уровень которого на протяжении беременности колеблется незначительно, эстрадиол подвержен пульсирующему выделению (флуктуации), на что указывал достаточно большой разброс показателей в процессе исследования.
Перед самым отелом уровень прогестерона падает до минимальных значений. Сразу же после родов значительно снижается и концентрация эстрадиола в крови. Результаты наших исследований содержания в сыворотке крови коров прогестерона и эстрадиола в течение 35 дней после отела приведены в таблице 12.
