
активными и способными атаковать внедрившиеся микроорганизмы. При этом расширение артериол и пор между эпителиальными клетками приводит к значительному притоку белков плазмы, таких как комплемент, белки острой фазы. Это в свою очередь приводит к повышению интерстициального осмотического давления и увеличению гидростатического давления в капиллярах под влиянием гистамина, свидетельствуя о развитии воспаления.
Макрофаги имеются повсеместно в мезенхимальных тканях, их много в лимфатических узлах, в селезенке, в легочных альвеолах, в полости брюшины. Макрофаги различной локализации связаны общностью происхождения от кроветворной стволовой клетки костного мозга. Она дает начало различным росткам кроветворной ткани, в том числе и моноцитам, которые периодически через 24–36 ч поступают из костного мозга в кровь (1–6% от общего числа клеток крови), а затем локализуются в различных тканях организма. В норме кровь и костный мозг содержат в небольшом числе моноциты, которые активно накапливаются в тканях.
Находясь в тканях, зрелые моноциты получили название тканевых макрофагов. В зависимости от места локализации они получили различные названия: купферовские клетки в печени, в соединительной ткани – гистиоциты, в легких – альвеолярные макрофаги, в селезенке – макрофаги, в серозных полостях – плевральные и перитонеальные макрофаги, в центральной нервной системе – микроглия, в костной ткани – остеокласты. Необходимы многие часы для трансформации моноцитов в зрелые макрофаги, представляющие собой клеточную линию защиты.
На поверхности макрофагов имеется два вида рецепторов. Это так называемые Fc-рецепторы, связывающие иммуноглобулины и рецепторы, а также комплемент – С3-рецепторы. В начале иммунного ответа опсонизация обеспечивает за счет С3 компонента комплемента и Fc-рецепторов иммуноглобулина на поверхности макрофага связывание молекулы антигена. Присоединение к макрофагу молекулы антигена способствует захвату фагоцитируемой клетки (частицы).
Макрофаги уничтожают большее число бактерий, чем нейтрофилы. Макрофаги в отличие от нейтрофилов способны фагоцитировать частицы большего размера, такие как эритроциты, бактерии, вирусы. При активном фагоцитозе макрофаги и нейтрофилы секретируют цитокины, которые активируют специфическую иммунную систему. Небольшой воспалительный процесс часто завершается нейтрофилами, тогда как в завершении длительно протекающего процесса доминируют макрофаги и лимфоциты. Однако возможны ситуации, когда микроорганизмы поглощаются фагоцитами, но не гибнут и не разрушаются, а иногда даже размножаются внутри фагоцитов. Примером является Listeria monocytogenes. Это случаи незавершенного иммунитета.
Для моноцитов характерен аэробный путь получения АТФ. В макрофагах активно протекает синтез белков – ферментов, фосфолипидов, холестерина.
Основная функция макрофагов – фагоцитоз, мишенью которого будут являться бактерии, вирусы, различные частицы. Макрофаги обладают способностью секретировать производные кислорода, которые, наряду с независимыми от кислорода реакциями, обеспечивают активность фагоцитоза. Макрофаги фагоцитируют самые различные чужеродные частицы – бактерии, продукты распада собственных тканей, отживших клеток, старые эритроциты и другие вещества. Фагоцитируемые субстанции распадаются внутри макрофагов лизосомальными ферментами. Эти клетки играют существенную роль в развитии воспаления – этой не только патологической, но и приспособительной защитной реакции организма. Макрофаги играют существенную роль в секреции гуморальных факторов неспецифической защиты – интерферона, лизоцима, эластазы, коллагеназы, других биологически активных веществ.
Макрофаги продуцируют цитокины, которые вовлекают другие клетки воспаления, особенно нейтрофилы. Таким образом, мононуклеарные фагоциты (моноциты и макрофаги) выполняют свои функции защиты организма еще до развития специфического иммунитета. Мононуклеарные фагоциты одновременно дополнительными и эффекторными клетками в иммунном процессе.
Спустя один час после начала воспаления большое число лейкоцитов, и, в основном, нейтрофилов, поступает в пораженную область как результат увеличения притока крови.
Гранулоциты (нейтрофилы, эозинофилы, базофилы) имеют короткую продолжительность жизни. Гранулоциты содержат множество цитоплазматических гранул, участвуют в эффекторной фазе специфического иммунного ответа. Поступая из костного мозга, они мигрируют в кровь, где циркулируют 5–10 ч. Затем они покидают кровяное русло и живут 3–4 дня в периферических тканях. Если организм подвергается инфицированию, то их продолжительность жизни становится еще короче. Эти лейкоциты относят к «воспалительным» клеткам, так как они играют важную роль в воспалении и врожденном иммунитете; их функция связана с удалением микроорганизмов и мертвых тканей.
Большинство лейкоцитов, запасаемых в костном мозге, являются нейтрофилами. Нейтрофилы (юные, палочкоядерные, сегментоядерные) – основные клетки крови, которые защищают организм животного от инфекционно-токсических воздействий. Они активно участвуют в фагоцитозе и переваривают бактериальные клетки, так как обладают множеством ферментов типа протеиназ. Нейтрофилы имеют гранулы, содержащие миелопероксидазу, лизоцим, катионные белки, лактоферрин, гидролазы, которые обеспечивают активность фагоцитоза.
Процесс фагоцитоза включает стадию миграции к объекту фагоцитоза (хемотаксис), распознавание, поглощение, дегрануляцию и внутриклеточное уничтожение чужеродного материала. В этом процессе нейтрофилы разрушаются. Нейтрофилы не синтезируют антитела, но они способны доставлять на своей поверхности иммуноглобулины в очаг воспаления. Их высокая активность в очаге воспалениям при недостатке кислорода объясняется большими запасами гликогена для ресинтеза АТФ, затраченного на фагоцитоз. Нейтрофилия – увеличение числа нейтрофилов крови – отмечается при хронических инфекциях скота (туберкулез), протозойных болезнях (бабезиоз), эндокардитах, гнойных ранах. Нейтропению, или снижение процента нейтрофилов в лейкограмме, отмечают при выздоровлении животного после инфекционных, вирусных болезней, протекающих с лимфоцитозом.
Нейтрофилы проникают сквозь стенку капилляра и захватывают бактерии путем хемотаксиса. В течение нескольких часов число нейтрофилов в пораженной области может увеличиваться в 5 раз. Увеличение числа различных цитокинов в процессе воспаления стимулирует увеличение продукции нейтрофилов и моноцитов в костном мозге. Таким образом, нейтрофилы осуществляют вторую клеточную линию защиты организма. Основным процессом получения энергии (АТФ) нейтрофилов является анаэробный гликолиз, субстратом которого является D-глюкоза.
В процессе фагоцитоза значительно повышается активность гликолиза и пентозофосфатного пути. Потребление нейтрофилами кислорода увеличивается в 2–4 раза, как и продукция Н2О2 и О−2. Вокруг поглощенной бактериальной клетки локально создается высокая концентрация супероксидных ионов и перекиси водорода, оказывающих бактерицидное действие. Одновременно лейкоциты имеют и защитную систему от супероксидного иона – ферменты СОД, каталазу, миелопероксидазу (МПО). МПО – гемсодержащий гликопротеин, который активно катализирует окисление ионов хлора в ионы гипохлорита:
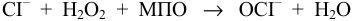
СI – + Н2О2 + МПО → ОСI – + Н2О
В результате этой реакции около 30% поглощенного лейкоцитами кислорода превращаются в производные активного хлора. В свою очередь, гипохлорит взаимодействует с перекисью водорода, образуя синглетный кислород – О−2 :
ОСI– + Н2О2 → Н2О + СI– + О2
Гипохлорит деформирует структуру мембраны клетки – патогена – и тем самым вызывает его разрушение.
Наличие указанных биохимических превращений позволяет лейкоцитам эффективно защищать клетки своего организма и нейтрали-
