
В лактационный период молочные эпителиальные клетки имеют высокую степень метаболизма, эпителиальная ткань использует более 50% кислорода артериальной крови. По поглощению кислорода на 100 г ткани молочная железа коровы лишь в 2–3 раза «уступает» мозгу, активному потребителю кислорода. Эпителиальные клетки имеют высокую плотность митохондрий, которые продуцируют АТФ на синтетические цели в клетках, на транспорт компонентов молока из внутриклеточных структур в альвеолы.
Отдельные метаболиты, используемые для синтеза жирных кислот и незаменимых аминокислот, так же синтезируются в митохондриях. Подобно другим клеткам, синтезирующим белки, молочные эпителиальные клетки имеют хорошо развитой эндоплазматический ретикулум с высокой плотностью рибосом. В эндоплазматическом ретикулуме происходит синтез фосфолипидов и триглицеридов. Как в других клетках, гликолиз и синтез жирных кислот имеет место в цитозоле.
Синтезированные белки в эндоплазматическом ретикулуме поступают в аппарат Гольджи, где они формируются в секреторные пузырьки. Активные молочные эпителиальные клетки всегда содержат множество секреторных пузырьков, которые транспортируют водорастворимые компоненты молока в цитозоле на апикальную мембрану клеток. Пузырьки опорожняются экзоцитозом, и содержимое пузырьков смешивается с молоком, уже присутствующим в альвеоле. Общая поверхность пузырьков составляет примерно 20 000 м2 для транспорта лишь одного литра молока.
Для поддержания лактогенеза молоко должно быть удалено из молочной железы коровы в процессе сосания теленка или при доении. Если не происходит удаления молока из железы дойной коровы в течение 16 ч, то синтез молока начинает снижаться. Большая порция молока дойной коровы находится в альвеолах и молочных ходах железы. Чтобы усилить процесс удаления молока из вымени в процесс вовлекается окситоцин. Синтез и реализация окситоцина из задней доли гипофиза осуществляется нейроэндокринным рефлексом при тактильной стимуляции вымени при сосании теленка или при ручной стимуляции вымени.
Биосинтез компонентов молока, как и любой другой биосинтез в организме, требует затраты энергии. Лактирующая молочная железа на каждые 100 г ткани потребляет 5,8 ккал энергии. Глюкоза является основным поставщиком энергии для молочной железы, причем на энергетические нужды идет 50% всей поступающей в железу глюкозы, а другие 50% используются для синтеза лактозы и глицерина жиров молока. Молочная железа коровы с удоем 40 кг молока продуцирует свыше 3 кг лактозы в сутки. Поэтому, по сравнению с нелактирующей железой, потребление глюкозы в лактационный период увеличивается в 10 раз.
По современным представлениям все белки молока можно разделить на две группы – белки, образующиеся в самой молочной железе, и белки, поступающие в молоко через железу из крови, где они находятся в готовом виде. К первой группе относят: альфа-казеин, альфалактоальбумин, бета-лактоглобулин; на их долю приходится свыше 90% общего количества белков молока. Синтез белков первой группы секреторными клетками железы подтвержден путем инкубации клеток лактирующих молочных желез с мечеными аминокислотами. При этом синтез белков молока сопровождается максимальными величинами РНК в клетках. Клетки молочной железы имеют все компоненты аппарата биосинтеза белка, как и в случаях синтеза простых белков в других тканях организма.
Синтез казеина происходит в несколько этапов. В начале синтезируется казеиноген, предшественник казеина, который затем переходит в казеин. Лактирующая железа, в отличие от нелактирующей, задерживает свободные аминокислоты крови, необходимые для синтеза белков молока. Для синтеза белков молока могут быть использованы и белки плазмы крови, но их роль в этом процессе незначительна; при этом белки плазмы поступают в клетки молочной железы, где и распадаются до свободных аминокислот.
Представителями белков второй группы являются: сывороточный альбумин и иммунные гамма-глобулины, содержание которых значительно повышается в начале периода лактации (в период образования молозива). Эти белки не синтезируются железой, а поступают в молоко в готовом виде из крови. Белки-ферменты молока имеют тканевое происхождение и переходят в молоко из клеток молочной железы. Однако возможен и переход ряда ферментов в молоко из крови.
Предшественниками молочного жира являются глицерин, высшие жирные кислоты, летучие жирные кислоты. Источником образования высших жирных кислот служат липиды кормов, углеводы. Глицерин и жирные кислоты частично поступают в железу с кровью, частично синтезируются и в клетках железы. У жвачных животных наиболее важными предшественниками синтеза жирных кислот являются уксусная кислота, поступающая из рубца, и бета-гидроксимасляная кислота, образующаяся в стенке рубца. На синтез жирных кислот активно используется до 50% уксусной кислоты в форме ацетил-КоА, образующейся из клетчатки кормов в процессе рубцового пищеварения.
Известно, что у животных с однокамерным желудком глюкоза в процессе гликолиза трансформируется в пируват. В реакции с щавелевоуксусной кислотой пируват переходит в цитрат в митохондриях клеток. Цитрат путем диффузии из митохондрий поступает в цитозоль, где при участии цитрат-лиазы и HS-КoA формируется ацетилКоА и щавелевоуксусная кислота. Ацетил-КоА – это активная форма уксусной кислоты, которая является основой синтеза жирных кислот.
175
Однако у жвачных животных выявлен недостаток цитрат-лиазы, а поэтому они не способны использовать глюкозу для синтеза жирных кислот. Жвачные активно для синтеза жирных кислот молока используют уксусную кислоту, образующуюся в рубце из полисахаров. На первом этапе биосинтеза жирной кислоты происходит взаимодействие ацетилКоА со специальным ацетилпереносящим белком (HS-AПБ):
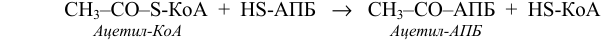
СН3–СО–S-КоА + HS-АПБ → СН3–СО–АПБ + HS-КоА
Ацетил-КоА Ацетил-АПБ
Полученная молекула ацетил-АПБ далее взаимодействует с молекулой малонил-КоА, которая образуется в результате карбоксилирования ацетил-КоА с участием АТФ и биотинсодержащего фермента – ацетил-КоА-карбоксилазы:
СН3–СО–S-КоА + АТФ + СО2 → НООС–СН2–СО–S-КоА + АДФ + Фн Малонил-КоА
Ацетил-КоА-карбоксилаза является ферментом, который лимитирует скорость синтеза жирной кислоты. Отметим, что инсулин стимулирует синтез жирной кислоты, активируя карбоксилазу, тогда как адреналин и глюкагон имеют обратный эффект. Последовательное объединение 8 молекул ацетил-КоА при участии малонил-КоА приводит к получению пальмитиновой кислоты (С 16:0). Донором атомов водорода для гидрогенизации непредельных связей получаемых кислот является кофермент НАДФН2, образующийся в реакциях пентозо-фосфатного пути. Для синтеза одной молекулы пальмитиновой кислоты необходимо затратить 7 молекул АТФ, 14 молекул НАДФН2. Следовательно, синтез жирной кислоты в клетке является энергетически дорогостоящим процессом.
Эпителиальные клетки молочной железы содержат уникальный фермент тиоэстеразу, при участии которого происходит синтез жирных кислот жиров молока, включающих 8, 10, 12 атомов углерода. Молоко жвачных содержит также до 8% низкомолекулярных кислот, таких как капроновая и масляная. Молоко жвачных включает также небольшое число разветвленных жирных кислот и кислот с нечетным числом атомов углерода, поступающих из пищеварительного тракта животного.
Около 70% глицерина жиров молока синтезируются в молочной железе из глюкозы. Активированные жирные кислоты (в форме ацилКоА) поступают на синтез триглицеридов молока. Свежее молоко содержит очень низкую концентрацию свободных жирных кислот. При повышении концентрации свободных жирных кислот молоко приобретает прогорклый запах. Жир в составе молока коровы находится в форме жировых шариков (1–3 мкм в диаметре), представляющих собой комплекс жира с белком.
