
Углеводы и белки, которые не были гидролизованы и абсорбированы в тонком кишечнике животного, становятся доступными для воздействия микроорганизмов толстого кишечника. У жвачных животных липиды кормов подвергаются действию липолитических ферментов микрофлоры рубца. В тканях жвачных животных обнаруживаются около 150 различных жирных кислот, что свидетельствует об активном их синтезе микроорганизмами рубца. Из преджелудков, как жиры кормов, так и продукты их гидролиза поступают в сычуг, затем в тонкий кишечник, где происходит их окончательный гидролиз, транспорт в эпителиоциты кишечника и всасывание.
Тонкий кишечник является основным местом абсорбции воды у жвачных; 60–70% воды органы и ткани жвачных получают из тонкого кишечника. На пике лактации корова теряет с каловыми массами 30–36 л воды в течение суток. Для переваривания жиров и всасывания продуктов их распада в тонком кишечнике необходима желчь, секрет печеночных клеток. Печень крупного рогатого скота в сутки вырабатывает 5–7 л желчи. В составе пузырной желчи 85% воды, печеночной желчи – 98% воды. Плотное вещество желчи включает общие липиды – 0,4–0,5%, холестерин – 0,1%, жирные кислоты – 0,1%, фосфолипиды – 0,2%, желчные кислоты, отдельные иммуноглобулины, гормоны. Холестерин в составе желчи представляется, вероятно, как экскреторный продукт.
Желчные кислоты продуцируются гепатоцитами из холестерола. Именно на синтез жирных кислот используется основное количество холестерола. Холестерол почти полностью нерастворим в воде, однако его комплекс с желчными кислотами приобретает гидрофобно-гидрофильные свойства, характерные для детергентов, способных растворять липиды в воде. Желчные кислоты (холевая, дезоксихолевая, литохолевая) находятся в желчи в форме парных соединений с гликоколом (NH2–CH2– COOH) или таурином (NH2–CH2–CH2–SO3H). Отдельные желчные кислоты находятся в виде натриевых солей, которые способны значительно снижать поверхностное натяжение молекул жиров, в результате чего происходит их активное эмульгирование или растворение. Окруженные желчью или эмульгированные капли жира, являются предметом воздействия на них гидролитических ферментов, таких как липаза и колипаза поджелудочной железы. Липаза не способна в отдельности атаковать эмульгированные капли жиров, так как она не может проникнуть через слой продуктов желчи, окружающий эти капли. Поэтому функция колипазы (мелкий пептид) – обеспечить доступ липазы к молекулам жира. Липаза специфична в отношении гидролиза внешних эфирных связей молекул триглицеридов. Вначале гидролиз молекулы триглицерида приводит к получению 2-моноглицерида (72%), который в результате медленной изомеризации переходит в 1-моноглицерид (6%) и только менее 22% триглицерида полностью распадаются на глицерин и свободные жирные кислоты.
Фосфолипиды (в частности, лецитин) кормов в кишечнике подвергаются эмульгированию, а затем гидролизу с участием фосфолипаз А, В, С, D. Вначале под влиянием фосфолипазы А происходит гидролиз лишь одной внутренней эфирной связи между глицеролом и высшей жирной кислоты с образованием из лецитина молекулы лизолецитина (находится в свободном состоянии в змеином яде, вызывая быстрый гемолиз эритроцитов). Под влиянием фосфолипазы В лизолецитин распадается на молекулу жирной кислоты и глицерофосфохолин. Последний под влиянием фосфолипазы С распадается до свободного глицерола и холинфосфата. В свою очередь, фосфолипаза D осуществляет гидролиз холинфосфата до свободного холина и фосфорной кислоты. Фосфорная кислота всасывается в виде калиевых или натриевых солей. Холин (спирт) всасывается в кишечнике в виде комплекса цитидиндифосфатхолина. Хорошо растворимый в воде глицерол и низкомолекулярные жирные кислоты легко всасываются в стенку кишечника.
Стериды кормов (эфиры холестерола, эфиры витамина А) также эмульгируются и под влиянием холестерол-эстераз поджелудочной железы распадаются в тонком кишечнике на свободные жирные кислоты и холестерол. Холестерол и жирорастворимые витамины всасываются из просвета кишечника лишь в комплексе с желчными кислотами. Холестерол плохо растворим в воде и в тонком кишечнике абсорбируется только на 30–40%. Высокомолекулярные жирные кислоты и моноглицериды образуют в начале комплексы с желчными кислотами (холеиновые комплексы) и в таком виде проникают в эпителиальные клетки кишечника. Затем комплексы распадаются, при этом желчные кислоты с кровью поступают в печень и в составе желчи вновь переходят в кишечник. Одна молекула желчной кислоты способна таким образом циркулировать в печеночно-кишечном цикле 5–10 раз в сутки. Потеря желчных кислот в составе каловых масс составляет лишь 5% от общего количества кислот, экскретируемых печенью. Потеря желчных кислот возмещается синтезом их в печени. Если рециркуляция желчных кислот между кишечником и печенью прекращается, то запасы желчных кислот быстро снижаются и кишечная абсорбция жиров и жирорастворимых витаминов становится дефицитной.
Синтезированные в эпителиоцитах тонкого кишечника триглицериды образуют с белком эпителия кишечника аполипопротеином и холестеролом стабильные комплексы – хиломикроны. По причине сравнительно большого размера (100–5000 нм) хиломикроны из эпителиоцитов поступают не в кровь, а в лимфатическую систему кишечника, затем в грудной лимфатический проток животного. Из лимфатической системы хиломикроны поступают в кровь, печень и жировую ткань, где и гидролизуются.
Хиломикроны распадаются под действием липопротеинлипазы на внутренней поверхности эндотелия капилляров жировой ткани,
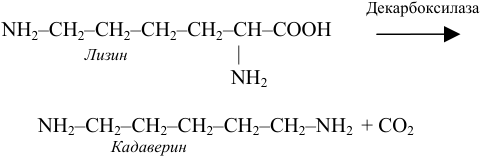
скелетных и сердечной мышц, молочной железы с освобождением триглицеридов. В этих тканях жирные кислоты триглицеридов служат энергетическим субстратом или депонируются после повторной их этерификации в триглицериды. Кишечный сок толстого кишечника содержит малоактивные пептидазы, липазу, амилазу, щелочную фосфатазу. В толстом кишечнике жвачных имеет место активная микрофлора и преобладают различные процессы брожения избытка клетчатки и других углеводов. Поступающие сюда аминокислоты при участии ферментов микроорганизмов подвергаются процессу декарбоксилирования с образованием углекислого газа и аминов. Например, аминокислота лизин в результате декарбоксилирования превращается в кадаверин – трупный яд:
Декарбоксилаза
NH2–CH2–CH2–CH2–CH2–CH–COOH
Лизин |
NH2
NH2–CH2–CH2–CH2–CH2–CH2–NH2 + СО2
Кадаверин
При гнилостном распаде циклических аминокислот образуются другие ядовитые продукты обмена. Так, триптофан трансформируется в скатол и индол, а при распаде тирозина – крезол и фенол. Все эти циклические продукты через воротную вену достигают печени, где соединяются с активной формой серной или глюкуроновой кислот, образуя нетоксические парные соединения, которые выводятся из организма через почки.
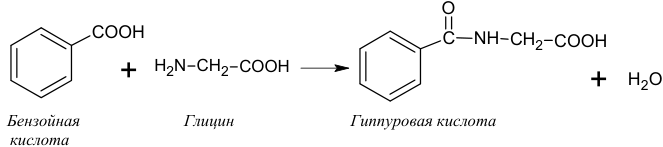
Фенилаланин в толстом кишечнике под влиянием бактериальных ферментов переходит в бензойную кислоту, которая в печени, взаимодействуя с глицином, образует гиппуровую кислоту. По уровню образования и выведения гиппуровой кислоты в моче после приема бензойной кислоты судят о функциональном состоянии печени.
O
COOH C NH CH2 COOH
+ H2N CH2 COOH
+ H2O
Бензойная Глицин Гиппуровая кислота
кислота
Рассмотренные реакции свидетельствуют о наличии в организме животного защитных механизмов нейтрализации ядовитых продуктов, образующихся в толстом кишечнике. Процессы распада аминокислот в толстом кишечнике усиливаются при кормлении животных недоброкачественными кормами, при атониях преджелудков у жвачных, при инфекционных и инвазионных болезнях.
