
мозга, циркуляция крови снижается, и энергетика тканей обеспечивается лишь за счет гликолиза до восстановления нормальной циркуляции крови. Это состояние экономит глюкозу для мозга. Сохранение глюкозы для мозга иллюстрирует один из многих механизмов, обеспечивающих выживание мозга при стрессовых ситуациях.
В других тканях гликолиз является основным механизмом получения АТФ. В частности, эритроциты имеют мало митохондрий, а значит, они не способны активно превращать пируват в СО2 и Н2О. Роговица, хрусталик глаза имеют недостаток циркуляции крови и малое число митохондрий, поэтому для них гликолиз важен как источник энергии. Мозговая доля почек, тестикулы, лейкоциты и белые мышечные волокна также имеют небольшое число митохондрий и почти полностью зависят от гликолиза, источника АТФ.
Запасов свободной глюкозы, а также гликогена в печени и мышцах коровы, как источников энергии, достаточно лишь в среднем на одни сутки. Количество гликогена, которое может быть депонировано в печени, ограничено и при нормальных условиях никогда не превышает 10% от общей массы печени. Из тонкого кишечника жвачного животного в кровь поступает лишь небольшое количество глюкозы. В этих условиях организм животного испытывает постоянный потенциальный дефицит глюкозы. Чтобы предупредить подобное состояние жвачные должны иметь развитую эффективную систему продукции и сохранения глюкозы. Такой системой и является альтернативный путь синтеза глюкозы – глюконеогенез.
Глюконеогенез – важный анаболический процесс для функционирования различных тканей организма. Даже в условиях, когда бóльшая часть энергии обеспечивается за счет жиров, в организме есть определенная потребность в глюкозе. Например, глюкоза является единственным источником энергии для функционирования мышечной ткани в анаэробных условиях. Особенно глюконеогенез является важным в период интенсивной физической работы животного. Глюконеогенез дает возможность поддерживать должный уровень глюкозы в мозге и мышечной ткани даже после полного окисления глюкозы кормов. Молочная железа требует для синтеза лактозы молока наличия глюкозы; источником молекул глюкозы в данном случае является процесс глюконеогенеза. Глюконеогенез активно протекает в клетках печени и в меньшей мере в корковом веществе почек в состоянии хронического ацидоза.
Глюконеогенез – это синтез глюкозы из различных промежуточных продуктов обмена углеводов, жиров, белков. Основными субстратами глюконеогенеза у жвачных являются пропионовая и молочная кислота, аминокислоты, глицерол. В противоположность гликолизу, который продуцирует АТФ, глюконеогенез требует АТФ, являясь, таким образом, энергозатратным процессом.
В гликолизе глюкоза конвертируется в пируват, тогда как в глюконеогенезе пируват превращается в глюкозу. Однако глюконео-
генез не является строго обратимым процессом гликолиза. Процесс глюконеогенеза требует отдельных специфических реакций. В частности, семь ферментативных реакций из десяти глюконеогенеза являются обратными реакциями гликолиза. Три реакции гликолиза являются необратимыми и не могут быть использованы в глюконеогенезе: конверсия глюкозы в глюкозо-6-фосфат гексокиназой, фосфорилирование фруктозо6-фосфата во фруктозо-1,6-дифосфат фосфофруктокиназой-1, и конверсия фосфоенолпировиноградной кислоты в пируват ферментом пируваткиназой.
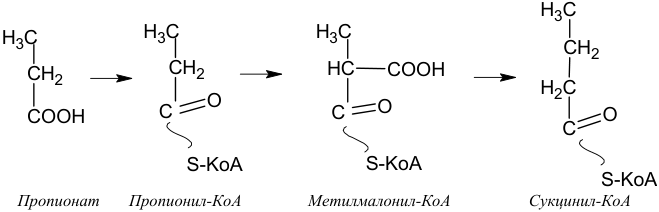
Количественно наиболее важным предшественником синтеза глюкозы у жвачных является летучая жирная кислота пропионат. В зависимости от интенсивности микробиологической ферментации, у овец до 62% глюкозы крови происходят из пропионовой кислоты. Пропионовая кислота у жвачных превращается в гликоген печени двумя метаболическими путями. Во-первых, около 20% продуцируемой пропионовой кислоты превращаются в молочную кислоту в эпителии рубца. Молочная кислота легко переходит в пировиноградную, которая в реакции карбоксилирования трансформируется в митохондриях в щавелевоуксусную. Последняя превращается в фосфоенолпировиноградную, проникающую в цитоплазму клетки, где и происходят дальнейшие реакции «обратного» гликолиза. Во-вторых, не менее важным представляется путь вхождения пропионата в реакции синтеза янтарной кислоты (сукцината) по следующей схеме:
H3C
H3C H3C H3C
CH2
CH2 CH2 HC COOH
H2C
COOH C O C O O
C
S-KoA S-KoA
S-KoA
Пропионат Пропионил-КоА Метилмалонил-КоА Сукцинил-КоА
Полученный метилмалонил-КоА под влиянием метилмалонилКоА-мутазы (витамин В12-зависимый фермент) подвергается внутримолекулярной перестройке для образования сукцинил-КоА. В свою очередь, сукцинил-КоА, как посредник реакций цикла Кребса, трансформируется в оксалоацетат, непосредственно поступающий в реакции синтеза глюкозы.
Отметим, что метилмалонил-КоА-мутаза (5-деоксиаденозилкобаламин, или коэнзим В12) в своей структуре содержит микроэлемент кобальт. Млекопитающие не могут синтезировать витамин В12; он синтезируется в пищеварительном тракте исключительно отдельными анаэробными микроорганизмами. Недостаток кобальта для построения структуры
мутаз является причиной снижения синтеза эритроцитов с развитием пернициозной анемии. При этом размеры эритроцитов превышают нормальные на 25–50%. Крупный рогатый скот, особенно телята, чувствителен к дефициту кобальта. Однако жвачные не нуждаются в получении витамина В12 с кормами, так как бактерии в рубце продуцируют значительные количества витамина при достаточном содержании кобальта в кормах.
Оксалоацетат
Фосфоенолпировиноградная
кислота
2-фосфоглицериновая
кислота
3-фосфоглицериновая
кислота
1,3-дифосфоглицериновая
кислота
3-фосфоглицериновый
альдегид
Фруктоза-1-фосфат
Фруктоза-6-фосфат
Глюкоза-1-фосфат
Глюкоза
Гликоген

25
