
Фосфолипиды (в частности, лецитин) кормов в кишечнике подвергаются эмульгированию, а затем гидролизу с участием фосфолипаз А, В, С, D. Вначале под влиянием фосфолипазы А происходит гидролиз лишь одной внутренней эфирной связи между глицеролом и высшей жирной кислоты с образованием из лецитина молекулы лизолецитина (находится в свободном состоянии в змеином яде, вызывая быстрый гемолиз эритроцитов). Под влиянием фосфолипазы В лизолецитин распадается на молекулу жирной кислоты и глицерофосфохолин. Последний под влиянием фосфолипазы С распадается до свободного глицерола и холинфосфата. В свою очередь, фосфолипаза D осуществляет гидролиз холинфосфата до свободного холина и фосфорной кислоты. Фосфорная кислота всасывается в виде калиевых или натриевых солей. Холин (спирт) всасывается в кишечнике в виде комплекса цитидиндифосфатхолина. Хорошо растворимый в воде глицерол и низкомолекулярные жирные кислоты легко всасываются в стенку кишечника.
Стериды кормов (эфиры холестерола, эфиры витамина А) также эмульгируются и под влиянием холестерол-эстераз поджелудочной железы распадаются в тонком кишечнике на свободные жирные кислоты и холестерол. Холестерол и жирорастворимые витамины всасываются из просвета кишечника лишь в комплексе с желчными кислотами. Холестерол плохо растворим в воде и в тонком кишечнике абсорбируется только на 30–40%. Высокомолекулярные жирные кислоты и моноглицериды образуют в начале комплексы с желчными кислотами (холеиновые комплексы) и в таком виде проникают в эпителиальные клетки кишечника. Затем комплексы распадаются, при этом желчные кислоты с кровью поступают в печень и в составе желчи вновь переходят в кишечник. Одна молекула желчной кислоты способна таким образом циркулировать в печеночно-кишечном цикле 5–10 раз в сутки. Потеря желчных кислот в составе каловых масс составляет лишь 5% от общего количества кислот, экскретируемых печенью. Потеря желчных кислот возмещается синтезом их в печени. Если рециркуляция желчных кислот между кишечником и печенью прекращается, то запасы желчных кислот быстро снижаются и кишечная абсорбция жиров и жирорастворимых витаминов становится дефицитной.
Синтезированные в эпителиоцитах тонкого кишечника триглицериды образуют с белком эпителия кишечника аполипопротеином и холестеролом стабильные комплексы – хиломикроны. По причине сравнительно большого размера (100–5000 нм) хиломикроны из эпителиоцитов поступают не в кровь, а в лимфатическую систему кишечника, затем в грудной лимфатический проток животного. Из лимфатической системы хиломикроны поступают в кровь, печень и жировую ткань, где и гидролизуются.
Хиломикроны распадаются под действием липопротеинлипазы на внутренней поверхности эндотелия капилляров жировой ткани,
скелетных и сердечной мышц, молочной железы с освобождением триглицеридов. В этих тканях жирные кислоты триглицеридов служат энергетическим субстратом или депонируются после повторной их этерификации в триглицериды. Кишечный сок толстого кишечника содержит малоактивные пептидазы, липазу, амилазу, щелочную фосфатазу. В толстом кишечнике жвачных имеет место активная микрофлора и преобладают различные процессы брожения избытка клетчатки и других углеводов. Поступающие сюда аминокислоты при участии ферментов микроорганизмов подвергаются процессу декарбоксилирования с образованием углекислого газа и аминов. Например, аминокислота лизин в результате декарбоксилирования превращается в кадаверин – трупный яд:
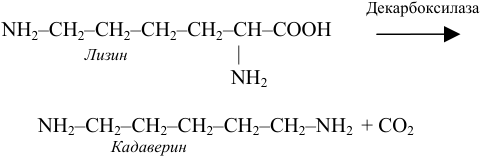
Декарбоксилаза
NH2–CH2–CH2–CH2–CH2–CH–COOH
Лизин |
NH2
NH2–CH2–CH2–CH2–CH2–CH2–NH2 + СО2
Кадаверин
При гнилостном распаде циклических аминокислот образуются другие ядовитые продукты обмена. Так, триптофан трансформируется в скатол и индол, а при распаде тирозина – крезол и фенол. Все эти циклические продукты через воротную вену достигают печени, где соединяются с активной формой серной или глюкуроновой кислот, образуя нетоксические парные соединения, которые выводятся из организма через почки.
Фенилаланин в толстом кишечнике под влиянием бактериальных ферментов переходит в бензойную кислоту, которая в печени, взаимодействуя с глицином, образует гиппуровую кислоту. По уровню образования и выведения гиппуровой кислоты в моче после приема бензойной кислоты судят о функциональном состоянии печени.
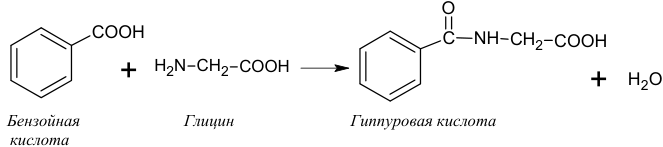
O
COOH C NH CH2 COOH
+ H2N CH2 COOH
+ H2O
Бензойная Глицин Гиппуровая кислота
кислота
Рассмотренные реакции свидетельствуют о наличии в организме животного защитных механизмов нейтрализации ядовитых продуктов, образующихся в толстом кишечнике. Процессы распада аминокислот в толстом кишечнике усиливаются при кормлении животных недоброкачественными кормами, при атониях преджелудков у жвачных, при инфекционных и инвазионных болезнях.
МЕТАБОЛИЗМ УГЛЕВОДОВ
Энергетически важными источниками глюкозы для жвачных животных являются клетчатка, крахмал, гликоген. Клетчатка и крахмал являются запасными формами глюкозы в растениях, а гликоген – запасная форма глюкозы в животных тканях. Экзогенными источниками глюкозы для животного являются корма, тогда как эндогенным источником глюкозы является гликоген, который запасается или синтезируется в тканях животного. Клетчатка и крахмал гидролизуются в пищеварительном тракте животного до свободной глюкозы, а запасы гликогена в тканях конвертируются в глюкозу или глюкозо-6-фосфат. Основное количество глюкозы кормов из пищеварительного тракта поступает в циркуляцию крови для последующего использования в различных тканях.
Когда содержание глюкозы в крови очень высоко, печень удаляет этот сахар из крови за счет глюкозо-потребляющих процессов – гликогенеза и гликолиза. Очень низкий уровень глюкозы в крови восполняется за счет глюкозо-производящих процессов – гликогенолиза и глюконеогенеза в печени. Печень является также первым органом, поставляющим в кровь из поджелудочной железы гормоны глюкагон и инсулин. Эти гормоны являются важными регуляторами уровня глюкозы в крови и их регуляторные эффекты зависят от ферментативных реакциях в печени. Важнейшей функцией печени в углеводном обмене является поддержание должной концентрации глюкозы в кровяном русле животного.
Метаболизм углеводов начинается и заканчивается глюкозой. Глюкоза – основная форма углеводов, поступающая из пищеварительного тракта в различные ткани и органы животного. Глюкоза является в обычных условиях единственным источником энергии для отдельных специализированных тканей, в частности, для мозга. Поэтому функции отдельных тканей направлены на обеспечение специализированных тканей и мозга этим энергетическим субстратом.
Гликолиз – путь, в котором все клетки организма могут частично экстрагировать химическую энергию молекулы глюкозы. Этот путь также конвертирует глюкозу до стадии пирувата, обеспечивая таким образом последующее полное окисление молекулы глюкозы до СО2 и Н2О. Поэтому анаэробный гликолиз является подготовительным путем для полного аэробного окисления глюкозы.
Гликолиз – древний процесс, характерный для всех клеток организма, когда глюкоза в анаэробных условиях распадается до молочной кислоты. Анаэробный гликолиз представляет запасной путь, способный дать две молекулы АТФ, основного соединения макроэргического метаболизма тканей, из молекулы глюкозы при отсутствии молекулярного кислорода. Это значит, что при дефиците кислорода в тканях уровень АТФ еще может поддерживаться, по крайней мере, на короткое время, за счет гликолиза. Так, при рождении животного во всех органах, за исключением
