
генез не является строго обратимым процессом гликолиза. Процесс глюконеогенеза требует отдельных специфических реакций. В частности, семь ферментативных реакций из десяти глюконеогенеза являются обратными реакциями гликолиза. Три реакции гликолиза являются необратимыми и не могут быть использованы в глюконеогенезе: конверсия глюкозы в глюкозо-6-фосфат гексокиназой, фосфорилирование фруктозо6-фосфата во фруктозо-1,6-дифосфат фосфофруктокиназой-1, и конверсия фосфоенолпировиноградной кислоты в пируват ферментом пируваткиназой.
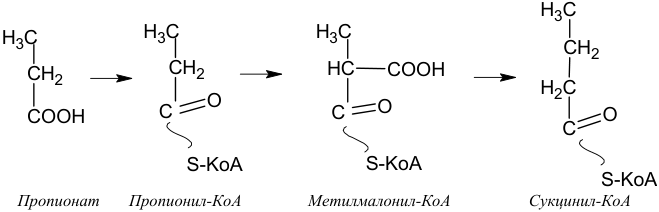
Количественно наиболее важным предшественником синтеза глюкозы у жвачных является летучая жирная кислота пропионат. В зависимости от интенсивности микробиологической ферментации, у овец до 62% глюкозы крови происходят из пропионовой кислоты. Пропионовая кислота у жвачных превращается в гликоген печени двумя метаболическими путями. Во-первых, около 20% продуцируемой пропионовой кислоты превращаются в молочную кислоту в эпителии рубца. Молочная кислота легко переходит в пировиноградную, которая в реакции карбоксилирования трансформируется в митохондриях в щавелевоуксусную. Последняя превращается в фосфоенолпировиноградную, проникающую в цитоплазму клетки, где и происходят дальнейшие реакции «обратного» гликолиза. Во-вторых, не менее важным представляется путь вхождения пропионата в реакции синтеза янтарной кислоты (сукцината) по следующей схеме:
H3C
H3C H3C H3C
CH2
CH2 CH2 HC COOH
H2C
COOH C O C O O
C
S-KoA S-KoA
S-KoA
Пропионат Пропионил-КоА Метилмалонил-КоА Сукцинил-КоА
Полученный метилмалонил-КоА под влиянием метилмалонилКоА-мутазы (витамин В12-зависимый фермент) подвергается внутримолекулярной перестройке для образования сукцинил-КоА. В свою очередь, сукцинил-КоА, как посредник реакций цикла Кребса, трансформируется в оксалоацетат, непосредственно поступающий в реакции синтеза глюкозы.
Отметим, что метилмалонил-КоА-мутаза (5-деоксиаденозилкобаламин, или коэнзим В12) в своей структуре содержит микроэлемент кобальт. Млекопитающие не могут синтезировать витамин В12; он синтезируется в пищеварительном тракте исключительно отдельными анаэробными микроорганизмами. Недостаток кобальта для построения структуры
мутаз является причиной снижения синтеза эритроцитов с развитием пернициозной анемии. При этом размеры эритроцитов превышают нормальные на 25–50%. Крупный рогатый скот, особенно телята, чувствителен к дефициту кобальта. Однако жвачные не нуждаются в получении витамина В12 с кормами, так как бактерии в рубце продуцируют значительные количества витамина при достаточном содержании кобальта в кормах.
Оксалоацетат
Фосфоенолпировиноградная
кислота
2-фосфоглицериновая
кислота
3-фосфоглицериновая
кислота
1,3-дифосфоглицериновая
кислота
3-фосфоглицериновый
альдегид
Фруктоза-1-фосфат
Фруктоза-6-фосфат
Глюкоза-1-фосфат
Глюкоза
Гликоген

25
Витамин В12 абсорбируется из последней части тонкого кишечника в комплексе с внутренним фактором, гликопротеином, продуцируемым в желудке. В общем кровотоке витамин В12 транспортируется белком транскобаламином и депонируется в печени. При отсутствии этого гликопротеина витамин В12 не абсорбируется. Недостаток кобальта в кормах скота получил название акобальтоза («сухотка») с симптомами выраженного исхудания животного.
Принимая во внимание тот факт, что ацетил-КоА не может быть превращен в тканях животного в пируват, а затем в оксалоацетат, такие важные источники энергии, как ацетат и бутират у жвачных не приводят к синтезу свободной глюкозы. Отметим, что ацетат активно участвует в синтезе жирных кислот в жировой ткани жвачных, являющихся важнейшим источником энергии.
Почти все количество пропионовой кислоты, абсорбирующейся из рубца, поступает в печень, где используется в глюконеогенезе. Установлено, что пропионат, лактат и глицерол в целом обеспечивают потребности жвачных в глюкозе на 50–75%. При наличии в кормах большого количества глюкозы активность глюконеогенеза снижается, не нарушая использование пропионовой кислоты.
При голодании животного запасы гликогена в мышцах уменьшаются, и происходит образование свободных аминокислот за счет распада белков тканей, и эти кислоты становятся важными предшественниками синтеза глюкозы. Значительная часть тканевых белков может быть мобилизована для продукции глюкозы. Таким образом, аминокислоты являются субстратом для глюконеогенеза. Экспериментально доказано, что 20–30% атомов углерода глюкозы происходят от аминокислот плазмы крови у овец. Эта величина достигает 50% у дойных коров, потребности которых в углеводах более высокие.
Все аминокислоты, исключая лейцин и лизин, могут использоваться для синтеза глюкозы посредством глюконеогенеза. Если катаболизм какой-либо аминокислоты приводит к образованию пировиноградной или щавелевоуксусной кислоты, то в этом случае эта аминокислота может вступить в процесс глюконеогенеза. Такие аминокислоты получили название глюкогенных. Структуры шести аминокислот (аланин, глицин, триптофан, серин, цистеин, треонин) способны частично или полностью трансформироваться в пируват. Пируват затем может быть конвертирован в ацетил-КоА или в щавелевоуксусную кислоту, предшественник для глюконеогенеза. Аланин переходит в пируват за счет прямой реакции трансаминирования с альфа-кетоглутаровой кислотой. Серин трансформируется в пируват в реакции с участием серин дегидратазы. Глицин вначале претерпевает окислительный распад с выходом СО2 и NH3 c участием тетрагидрофолата с получением серина, переходящего в пируват. Переход треонина в пируват происходит через глицин с участием треонин дегидрогеназы. Цистеин переходит в пируват за счет двух реакций
