
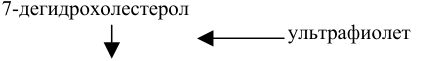
с витамин D-связывающим глобулином крови поступает в печень, где гидроксилируется. Гидроксилирование в печени витамина D приводит к образованию 25-(ОН)-витамина D3. Эта форма витамина рассматривается как запасная форма витамина D в организме и обычно используется при недостатке солнечных лучей. Наиболее активная форма витамина D (1,25-(ОН)2-D3), кальцитриол, формируется в почках путем гидроксилирования 25 (ОН)-D3.
7-дегидрохолестерол
ультрафиолет
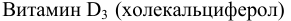
Витамин D3 (холекальциферол)
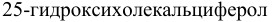
25-гидроксихолекальциферол
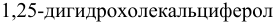
1,25-дигидрохолекальциферол
Эргокальциферол (витамин D2), синтезируемый растениями, является основным источником витамина D у животных с густой шерстью. Обычно в сене, под открытом солнцем, стеролы растительных клеток формируют витамин D2. Обе формы витамина D гидроксилируются и могут запасаться в печени.
Кальцитриол по механизму действия рассматривается как гормон. Его концентрация в плазме крови составляет 100 пмоль/л. Кальцитриол проявляет свой эффект связываясь с внутриклеточными рецепторами в клетках, которые транспортируют кальций в различных органах и тканях. Гормон-рецепторный комплекс изменяет клеточную продукцию специфических молекул mРНК. Таким образом, кальцитриол индуцирует образование Са-связывающих белков в различных клетках, включая эпителиальные клетки тонкого кишечника, нервных клеток, клеток почечных канальцев, костных клеток. Кальцитриол необходим для нормального функционирования остеобластов и остеокластов. Кальцитриол имеет выраженный стимулирующий эффект на транспорт ионов кальция и фосфора из кишечника в кровь. При избытке кальцитриола он может вызывать гиперкальцемию и вторичное отложение фосфата кальция в мягких тканях.
Следовательно, две основных функции витамина D заключаются в повышении абсорбции кальция из кишечника в кровь и снижении потерь кальция с мочой. Общий эффект витамина D – сохранение кальция в организме животного. Низкий уровень кальция в крови индуцирует образование кальцитриола в почках. В случае недостатка кальция в кормах паратгормон стимулирует костную резорбцию кальция
для повышения его уровня в крови. Напротив, гиперкальциемия является сигналом для секреции кальцитонина, который подавляет выход кальция из костной ткани, нормализуя таким образом его уровень в крови и способствуя отложению фосфора в костной ткани.
Истинную потребность жвачного животного в кальции трудно установить, так как существует множество факторов, влияющих на его статус. В частности, избыток белка в рационе, высокая молочная продуктивность могут привести к более быстрой экскреции кальция из организма. Важным представляется и соотношение кальция и фосфора в кормах.
Соотношение кальция к фосфору в плазме крови крупного рогатого скота составляет в норме 2:1. В регуляции уровня фосфора в крови участвуют: витамин D, гормоны – кальцитонин, паратгормон, эстрогены. Гипофосфатемия является симптомом дефицита в организме в первую очередь, витамина D. Метаболический ацидоз может привести к значительным потерям фосфора с мочой. Абсорбция фосфатов из кишечника увеличивается при их низкой концентрации в крови и стимулируется кальцитриолом. Низкий уровень неорганического фосфора в крови отражает его недостаток в кормах, свидетельствует также о низкой абсорбции фосфора в кишечнике и о дефиците витамина D.
Высокий уровень Са и Р в сыворотке крови увеличивает минерализацию костной ткани животного. Кость служит резервуаром кальция и фосфора для поддержания гомеостаза сыворотки крови. Если в кормах витамин D и кальций находятся в адекватных количествах, то потери кальция в костной ткани не наблюдается. Однако в случае небольшого содержания кальция в кормах витамин D и паратгормон вызывают деминерализацию кости, чтобы поддержать должный уровень кальция в сыворотке крови. Дефицит витамина D также вызывает деминерализацию костной ткани под влиянием паратгормона. Длительный избыток кальция в сыворотке крови может быть причиной гиперкальциурии, которая предрасполагает к образованию почечных камней.
Большинство случаев дефицита витамина D в организме скота является результатом недостаточной абсорбции жира в кишечнике или патологии печени и почек. Всасывание кальция в кишечнике зависит от трех основных факторов: рН кишечника, соотношения Са и Р и количества витамина D. Кислая среда повышает абсорбцию Са за счет ионизации, тогда как щелочная среда способствует преципитации. Выяснение потребности организма жвачных в витамине D представляет значительные сложности, поскольку не существует объективной методики, позволяющей оценить состояние насыщенности организма витамином. Косвенно дефицит витамина D оценивают по концентрации кальция и фосфора, по повышению концентрации пировиноградной
кислоты и снижению уровня лимонной кислоты в сыворотке крови животного.
Хронический недостаток в организме животного витамина D и нарушение фосфорно-кальциевого обмена приводит к остеодистрофии (рахит у телят, остеомаляция у взрослых животных), хронически протекающей болезни, характеризующейся деформацией костной ткани. По клиническому проявлению нарушений фосфорно-кальциевого обмена различают три основные стадии болезни: первая стадия – субклиническая, когда отсутствуют симптомы поражения костной ткани; вторая стадия – появление хромоты, болезненность при ходьбе, искривления позвоночника, ярко выражена лизуха; третья стадия – выраженные изменения костяка (Г. Г. Щербаков, А. В. Коробов, 2003). У молодых высокоудойных коров возникают опухания крупных суставов конечностей, болезненность при пальпации суставов и ребер.
Предрасполагающими факторами возникновения остеодистрофии у жвачных животных являются: дефицит белка, каротина, кальция и фосфора в кормах, ультрафиолетовая недостаточность, что затрудняет превращение 7-дегидрохолестерина в активную форму витамина D3 в почках. При этом у стельной коровы нарушается развитие плода, у которого обмен веществ протекает более интенсивно, чем у матери. Поэтому признаки рахита появляются уже у телят 1–2-недельного возраста. Нарушения роста и развития костной ткани у телят обычно сопровождаются выраженным повышением активности фермента щелочной фосфатазы. Часто концентратный тип кормления приводит к недостатку кальция и избытку фосфора в сыворотке крови животного.
Гипогликемия при остеодистрофиях является следствием нарушения фосфорного обмена в тканях, приводящего к угнетению образования многочисленных фосфорных эфиров в реакциях глюконеогенеза и гликогенеза в печени.
У молочных коров в первые дни после отела имеет место гипокальцемия или родильный парез. Почему это происходит? Корова имеет большой запас кальция в скелете (6 кг), поступление его с кормами в кишечник составляет около 100 г. В крови животного циркулируют лишь 10 г кальция. Для поддержания кальция на этом уровне из кишечника коровы должны поступать в кровь 25 г кальция в сутки. Хотя этого количества доступного кальция достаточно для потребностей плода – теленка в конце беременности (8 г/сутки), его недостаточно для повышенных потребностей на продукцию молока в ранний период лактации (45 г/сутки). Имеются так же и «обязательные» потери кальция с мочой и каловыми массами (12 г/сутки), а также появляются затраты кальция на синтез молозива (2 г/л против 1,3 г/л молока). Следует учитывать и огромные потери кальция в составе плодных жидкостей при рождении теленка.
