
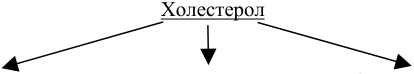
Холестерол
Желчные Витамин D Стероидные кислоты гормоны
Различают экзогенный холестерол, поступающий в организм животного с кормами, и эндогенный холестерол, активный синтез которого имеет место в печени, стенке тонкого кишечника. Если в кормах холестерол присутствует в малых количествах, то в этом случае организм усиливает его синтез, чтобы удовлетворить в нем свои потребности. Таким образом, активность синтеза холестерола в организме животного зависит от его наличия в кормах.
В организме животного синтез холестерола происходит в цитоплазме всех клетках, которые не утратили ядро. У жвачных около 90% холестерола синтезируется в клетках печени. Установлено, что все атомы углерода молекулы холестерола происходят из активной формы уксусной кислоты (ацетил-КоА).
Холестерол, находящийся в печени, представлен:
-
холестеролом, абсорбированным из кишечника;
-
холестеролом, доставленным в печень из периферических тканей в составе липопротеинов высокой плотности;
-
холестеролом печени, в которой этот спирт претерпел этерификацию.
При небольшом поступлении экзогенного холестерола в печени взрослого крупного рогатого скота синтез этого спирта будет превышать 1,0 г в сутки, возмещая желчные кислоты и потерю в энтеропеченочном цикле. Холестерол является соединением с очень низкой степенью растворимости в воде. Однако хорошая растворимость холестерола в крови животного объясняется присутствием липопротеинов плазмы, которые обладают способностью связывать и таким образом растворять большие количества этого стерина. Около 70% холестерола в плазме крови находятся в форме его эфиров. Как холестерол, так и эфиры холестерола транспортируются в крови в форме липопротеиновых комплексов.
В специализированных тканях, таких как надпочечники и яичники, холестерол в составе липопротеинов низкой плотности служит предшествеником стероидных гормонов в этих органах, соответственно, таких как кортизол и эстрадиол. В печени холестерол в составе липопротеинов низкой плотности и липопротеинов высокой плотности трансформируется в соли желчных кислот, необходимых для переваривания жиров в тонком кишечнике.
Принято классифицировать липопротеины согласно их плотности. Плотность липопротеина зависит от отношения количества липида
и белка в комплексе. Различают липопротеины высокой плотности (ЛПВП, плотность 1,063–1,210 г/мл), липопротеины низкой плотности (ЛПНП, плотность 1,019–1,063 г/мл), липопротеины очень низкой плотности (ЛПОНП, плотность 0,95–1,006 г/мл), хиломикроны (плотность менее 0,95 г/мл). ЛПВП имеют наибольшее содержание белка в своем составе и поэтому их размеры наименьшие. Хиломикроны в своем составе имеют наименьшее содержание белка, это самые крупные комплексы.
Основные количества ЛПВП и ЛПОНП находят в печени, а хиломикроны формируются в стенке кишечника, задача которых – транспорт триглицеридов. Хиломикроны переносят триглицериды и эфиры холестерола из кишечника в различные ткани, а ЛПОНП транспортируют липиды из печени. В различных тканях-мишенях, в частности, в капиллярах и жировых клетках, эти комплексы распадаются при участии липопротеин-липазы. Действие этой липазы приводит к превращению частиц ЛПОНП в ЛПНП, которые или возвращаются в печень, или переходят в надпочечники. Каждые 24 ч половина ЛПНП выходит из этой циркуляции; ЛПВП сохраняются в организме более длительный период (5–6 суток). Функция ЛПВП состоит в возвращении холестерола и его эфиров в печень, единственный орган, способный метаболизировать и эстерифицировать холестерол. ЛПВП, имея самый малый размер среди других липопротеинов, легко распадаются и удаляются из стенок кровеносных сосудов, тем самым, предупреждая развитие атеросклеротических явлений. Этот процесс, очевидно, объясняет корреляцию между высоким уровнем ЛПВП и снижением риска сердечно-сосудистой болезнью. С другой стороны, повышение концентрации общего холестерина плазмы крови и высокий уровень ЛПНП имеет зависимость с увеличением риска этой патологии. Отметим, что атеросклероз – сложный, хронический процесс, включающий аккумуляцию липидов, коллагена, протеогликанов в стенках артериол.
В транспорте и удалении холестерола из организма важнейшую роль играют ЛПВП и фермент лецитин-холестерол ацилтрансфераза (ЛХАТ). Данный фермент плазмы продуцируется в основном в печени и катализирует обратимую реакцию с участием свободного холестерола и лецитина. Субстратом для ЛХАТ является холестерол, содержащийся в составе ЛПВП:
Свободный
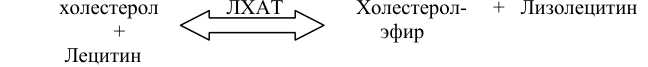
холестерол ЛХАТ Холестерол- + Лизолецитин<br> + эфир<br> Лецитин<br><!-- End of picture text -->
Система ЛПВП–ЛХАТ выполняет функцию защиты клеток и особенно их плазматических мембран от негативного влияния избыточных количеств холестерола. Получаемый в данной реакции
этерифицированный холестерол проникает внутрь частицы ЛПВП, и в таком виде транспортируется из тканей и плазмы в печень. Печень является единственным органом, который метаболизирует и экскретирует холестерол. Таким образом, ЛХАТ, действуя на ЛПВП, обеспечивает транспорт холестерола из периферических тканей в печень.
В печени конечными продуктами метаболизма холестерола являются желчные кислоты. Концентрация холестерола в желче составляет 390 мг% (T. M. Devlin, 1986). Избыток холестерола выводится из организма в составе желчи и каловых масс. В результате длительных научных поисков препаратов, снижающих уровень холестерола в организме, был изолирован из штама Aspergillus terreus ловастатин (мевинолин). Ловастатин оказался ингибитором фермента редуктазы, восстанавливающего 3-гидрокси-3метилглутарил-S-КоА в мевалонат в синтезе холестерола. Его оральное введение в дозе 20–80 мг в день оказывало выраженное снижение уровня холестерола в сыворотке крови человека (R. H. Garrett et al., 2005).
Важное диагностическое значение имеет определение в плазме крови концентрации кетоновых (ацетоновых) тел. В норме их уровень в крови не превышает 5 мг%, тогда как в мышечной ткани они составляют 25–30 мг%. В венозной крови их концентрация ниже, чем в артериальной, что свидетельствует об их использовании в энергетике мышечной ткани.
В клетках печени жирные кислоты лишь в ограниченных количествах окисляются до СО2 и Н2О. Поступление в митохондрии гепатоцитов жирных кислот в большом количестве приводит к образованию больших количеств молекул ацетил-КоА, которые в определенной мере минуют цикл трикарбоновых кислот и идут на синтез кетоновых тел: ацетоуксусной, бета-гидроксимасляной кислоты и ацетона. Все кетоновые тела являются производными ацетоуксусной кислоты.
Кетоновые тела, как водорастворимые вещества, покидают печень и служат альтернативным источником энергии для клеток тканей, которые способны превращать их в молекулы ацетил-КоА для дальнейшего окисления в цикле трикарбоновых кислот. При избытке кетоновых тел в крови они появляются в моче, молоке, в выдыхаемом воздухе.
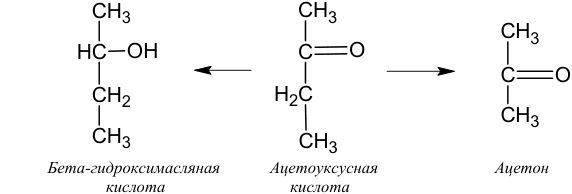
CH3 CH3
CH3
HC OH C O
C O
CH2 H2C
CH3
CH3 CH3
Бета-гидроксимасляная Ацетоуксусная Ацетон
кислота кислота
