
и белка в комплексе. Различают липопротеины высокой плотности (ЛПВП, плотность 1,063–1,210 г/мл), липопротеины низкой плотности (ЛПНП, плотность 1,019–1,063 г/мл), липопротеины очень низкой плотности (ЛПОНП, плотность 0,95–1,006 г/мл), хиломикроны (плотность менее 0,95 г/мл). ЛПВП имеют наибольшее содержание белка в своем составе и поэтому их размеры наименьшие. Хиломикроны в своем составе имеют наименьшее содержание белка, это самые крупные комплексы.
Основные количества ЛПВП и ЛПОНП находят в печени, а хиломикроны формируются в стенке кишечника, задача которых – транспорт триглицеридов. Хиломикроны переносят триглицериды и эфиры холестерола из кишечника в различные ткани, а ЛПОНП транспортируют липиды из печени. В различных тканях-мишенях, в частности, в капиллярах и жировых клетках, эти комплексы распадаются при участии липопротеин-липазы. Действие этой липазы приводит к превращению частиц ЛПОНП в ЛПНП, которые или возвращаются в печень, или переходят в надпочечники. Каждые 24 ч половина ЛПНП выходит из этой циркуляции; ЛПВП сохраняются в организме более длительный период (5–6 суток). Функция ЛПВП состоит в возвращении холестерола и его эфиров в печень, единственный орган, способный метаболизировать и эстерифицировать холестерол. ЛПВП, имея самый малый размер среди других липопротеинов, легко распадаются и удаляются из стенок кровеносных сосудов, тем самым, предупреждая развитие атеросклеротических явлений. Этот процесс, очевидно, объясняет корреляцию между высоким уровнем ЛПВП и снижением риска сердечно-сосудистой болезнью. С другой стороны, повышение концентрации общего холестерина плазмы крови и высокий уровень ЛПНП имеет зависимость с увеличением риска этой патологии. Отметим, что атеросклероз – сложный, хронический процесс, включающий аккумуляцию липидов, коллагена, протеогликанов в стенках артериол.
В транспорте и удалении холестерола из организма важнейшую роль играют ЛПВП и фермент лецитин-холестерол ацилтрансфераза (ЛХАТ). Данный фермент плазмы продуцируется в основном в печени и катализирует обратимую реакцию с участием свободного холестерола и лецитина. Субстратом для ЛХАТ является холестерол, содержащийся в составе ЛПВП:
Свободный
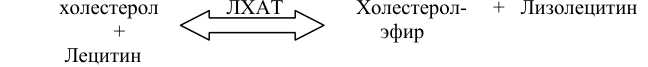
холестерол ЛХАТ Холестерол- + Лизолецитин<br> + эфир<br> Лецитин<br><!-- End of picture text -->
Система ЛПВП–ЛХАТ выполняет функцию защиты клеток и особенно их плазматических мембран от негативного влияния избыточных количеств холестерола. Получаемый в данной реакции
этерифицированный холестерол проникает внутрь частицы ЛПВП, и в таком виде транспортируется из тканей и плазмы в печень. Печень является единственным органом, который метаболизирует и экскретирует холестерол. Таким образом, ЛХАТ, действуя на ЛПВП, обеспечивает транспорт холестерола из периферических тканей в печень.
В печени конечными продуктами метаболизма холестерола являются желчные кислоты. Концентрация холестерола в желче составляет 390 мг% (T. M. Devlin, 1986). Избыток холестерола выводится из организма в составе желчи и каловых масс. В результате длительных научных поисков препаратов, снижающих уровень холестерола в организме, был изолирован из штама Aspergillus terreus ловастатин (мевинолин). Ловастатин оказался ингибитором фермента редуктазы, восстанавливающего 3-гидрокси-3метилглутарил-S-КоА в мевалонат в синтезе холестерола. Его оральное введение в дозе 20–80 мг в день оказывало выраженное снижение уровня холестерола в сыворотке крови человека (R. H. Garrett et al., 2005).
Важное диагностическое значение имеет определение в плазме крови концентрации кетоновых (ацетоновых) тел. В норме их уровень в крови не превышает 5 мг%, тогда как в мышечной ткани они составляют 25–30 мг%. В венозной крови их концентрация ниже, чем в артериальной, что свидетельствует об их использовании в энергетике мышечной ткани.
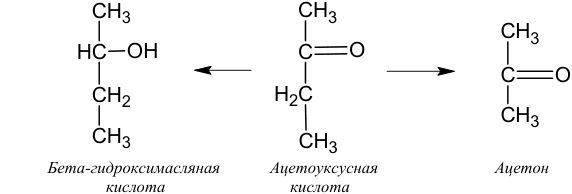
В клетках печени жирные кислоты лишь в ограниченных количествах окисляются до СО2 и Н2О. Поступление в митохондрии гепатоцитов жирных кислот в большом количестве приводит к образованию больших количеств молекул ацетил-КоА, которые в определенной мере минуют цикл трикарбоновых кислот и идут на синтез кетоновых тел: ацетоуксусной, бета-гидроксимасляной кислоты и ацетона. Все кетоновые тела являются производными ацетоуксусной кислоты.
Кетоновые тела, как водорастворимые вещества, покидают печень и служат альтернативным источником энергии для клеток тканей, которые способны превращать их в молекулы ацетил-КоА для дальнейшего окисления в цикле трикарбоновых кислот. При избытке кетоновых тел в крови они появляются в моче, молоке, в выдыхаемом воздухе.
CH3 CH3
CH3
HC OH C O
C O
CH2 H2C
CH3
CH3 CH3
Бета-гидроксимасляная Ацетоуксусная Ацетон
кислота кислота
Избыточная продукция ацетоуксусной и бета-гидроксимасляной кислот приводит к состоянию метаболического ацидоза (кетоацидоза). У жвачных животных концентрация бета-гидроксимасляной кислоты в 10 раз выше, чем концентрация ацетоуксусной кислоты.
У жвачных животных синтез кетоновых тел имеет место в слизистой оболочке преджелудков из масляной и уксусной кислот, откуда они поступают в различные органы и ткани, в частности, в сердечную и скелетные мышцы, где используются в качестве источника энергии, особенно при дефиците глюкозы.
Мозг жвачных содержит все необходимые ферменты, которые позволяют нервной ткани использовать кетоновые тела как источник энергии при снижении уровня глюкозы в крови. Мозг использует как глюкозу, так и кетоновые тела, для продукции АТФ. Это очень важно при голодании животного, так как использование белков в этих целях требует большего времени. У жвачных мозг неспособен ограничивать использование глюкозы, даже при длительном голодании и кетоновые тела таким образом не являются альтернативным источником энергии для мозга.
На ранних стадиях голодания использование кетоновых тел сердечной и скелетными мышцами сохраняет глюкозу для поддержания функций нервной системы. При более длительном голодании повышение в крови уровня ацетоуксусной и бета-гидроксимасляной кислоты обеспечивает их эффективное использование мозгом для получения энергии, который имеет низкую способность окисления высокомолекулярных жирных кислот. Высокий уровень бета-гидроксимасляной кислоты в крови указывает на дефицит энергии кормов рациона.
Состояние избыточной концентрации кетоновых тел в крови животного носит название кетонемии (ацетонемии). При этом концентрация кетоновых тел может достигать 100 мг%. В таком случае кетоновые тела обнаруживаются в моче (кетонурия, ацетонурия), в выдыхаемом воздухе коров. Все это свидетельствует о развитии кетоза (повышенного образования кетоновых тел). При кетозе параллельно с повышением концентрации кетоновых тел в крови происходит и повышение их содержания в молоке (кетолактия). Если в норме это содержание не превышает 5 мг%, то в случае кетоза их концентрация увеличивается в 3– 5 раз, что позволяет использовать реактив Лестраде, порог чувствительности которого составляет 10 мг% кетоновых тел, в диагностических целях.
Однако при хронических кетозах уровень кетоновых тел в крови, молоке и моче может лишь незначительно превышать норму. Концентрация кетоновых тел в крови наивысшая в случаях необходимости больших затрат энергии, например, у высокоудойных коров, но в то же время при недостаточности энергии кормов рациона. При таких обстоятельствах секреция инсулина снижается и липолитические гормоны – адреналин, гормон роста – могут оказывать свой липолити-
