
При поступлении оксигемоглобина в ткани, СО2 переходит из тканей внутрь эритроцитов. Мембрана эритроцита, как и другие биологические мембраны, легко пропускает сквозь себя СО2. Внутри эритроцита большая часть СО2 при участии активной Zn-зависимой карбоангидразы трансформируется в угольную кислоту. Около 85% образующейся угольной кислоты претерпевает быструю спонтанную ионизацию с образованием протона Н+ и бикарбонатного иона HCO3− :
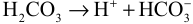
H2CO3 → H+ + HCO3−
В результате концентрация бикарбонатных ионов в эритроците становится выше, чем в плазме, и часть их сквозь мембрану эритроцита переходит в плазму. Между концентрацией бикарбонатных ионов в плазме и эритроцитом наступает равновесие.
Водородный ион угольной кислоты взаимодействует с основной формой оксигемоглобина HвO− 2 с образованием ННвО2, который диссоциирует на ННв и свободный кислород:
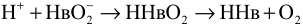
H+ + HвO2− → HHвО2 → ННв + О2
При этом кислород из эритроцита диффундирует в ткани организма. Образующаяся в тканях угольная кислота поступает в плазму крови и в ней растворяется для переноса в легкие. Транспорт угольной кислоты из тканей в легкие происходит несколькими путями. На долю растворимой формы угольной кислоты в общем транспорте приходится около 10%. Так как количество поступающей из тканей в кровь Н2СО3 значительно превышает возможности физического растворения, то ее избыток из венозной крови поступает внутрь эритроцита, где и соединяется с гемоглобином карбамидными связями по месту свободных аминогрупп глобина, образуя очень нестойкое соединение – карбгемоглобин. На долю карбгемоглобина приходится около 5% общего количества транспортируемой углекислоты.
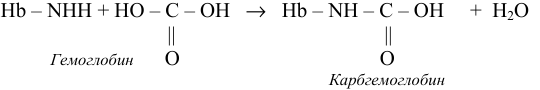
Hb – NHH + HO – C – OH → Hb – NH – C – OH + H2O
|| ||
Гемоглобин O O
Карбгемоглобин
Однако основное количество углекислоты транспортируется в легкие в форме гидрокарбонатов калия и натрия.
В капиллярах легких венозная кровь испытывает меньшее парциальное давление углекислоты, поэтому в силу разности давлений в венозной крови и воздухе происходит удаление из крови физически растворенной углекислоты и углекислоты в составе карбгемоглобина. В эритроцитах легочных капилляров (толщина альвеолярной стенки
составляет 0,004 мм) кислород взаимодействует с ННв, образуя оксигемоглобин – ННвО2:
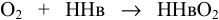
О2 + ННв → ННвО2
Оксигемоглобин по своим кислотным свойствам является более сильной кислотой, чем угольная кислота, а поэтому взаимодействует с бикарбонатным ионом, образуя слабую угольную кислоту:
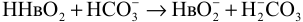
ННвО2 + НСО3− → НвО2− + Н2−СО3
Под действием карбоангидразы угольная кислота распадается на воду и СО2, поступающий из эритроцитов в плазму крови. Низкое парциальное давление в просвете альвеол способствует диффузии СО2 из плазмы в легкие.
Таким образом, гемоглобин обеспечивает не только транспорт кислорода, но и защиту тканей от постоянного поступления Н+ за счет ионизации угольной кислоты.
Следует также указать и на участие эритроцитов в иммунном процессе. Эритроциты несут на своей поверхности такие структуры, как рецепторы для отдельных компонентов комплемента и Fc-фрагмента IgG, пассивно адсорбируют большое количество странствующих антигенов, таких как бактериальные полисахариды, пенициллин. Это в известной мере предупреждает массивное поступление антигенов в органы иммуногенеза. Поэтому эритроциты выполняют роль своеобразной буферной системы, ответственной за интенсивность иммунного ответа (В. Н. Шабалин и др., 1988 г.).
Степень продукции эритроцитов контролируется гормоном эритропоэтином, образующимся в почках. Продукция этого гормона регулируется по типу обратной связи: обычно концентрация эритропоэтина низкая, но является достаточной для поддержания продукции эритроцитов в норме. При снижении транспорта кислорода в почки продукция эритропоэтина возрастает, и он транспортируется в костный мозг, где усиливает деление клеток, созревание предшественников эритроцитов. В результате нормализуется транспорт кислорода в почки.
В молекуле гемоглобина связывание кислорода не вызывает изменение валентности железа. Присоединение молекулы кислорода – это процесс оксигенации, а не окисление. Истинное окисление кислорода, когда железо гемоглобина переходит из двухвалентного состояния (Fe2+ ) в трехвалентное (Fe3+ ), что приводит к образованию метгемоглобина и потере способности гемоглобина присоединять кислород. Небольшое количество метгемоглобина (1–2%) постоянно образуется в эритроцитах. Поскольку эритроциты содержат фермент
гемоглобин-редуктазу, который восстанавливает железо в двухвалентное состояние, то аккумуляции метгемоглобина в крови не происходит.
Многие вещества могут быть причиной отравления животных метгемоглобином. У крупного рогатого скота наиболее опасными являются нитриты и хлораты, которые выступают как ингибиторы метгемоглобин-редуктазы. Например, при пастьбе скота на пастбищах, удобренных аммиачно-селитровыми удобрениями, спустя 1–5 ч после попадания яда в пищеварительный тракт, нитраты кормов в большом количестве могут переходить в рубце в нитриты, которые и вызывают образование больших количеств метгемоглобина в крови. У крупного рогатого скота признаки отравления наблюдаются в случае, если на долю метгемоглобина приходится 50–60% от общей концентрации гемоглобина крови. Уже при содержании метгемоглобина около 30% по отношению к гемоглобину кровь будет иметь слабый кофейный оттенок.
Яды – метгемоглобинобразователи (нитроглицерин, новокаин, сульфаниламиды, барбитураты, аспирин) блокируют кислородную функцию гемоглобина, тем самым вызывают гипоксию. В данном случае свойствами антидотов обладает глюкоза (сильный восстановитель в организме) и ее метаболит – глюкуроновая кислота.
Недостаточное снабжение тканей кислородом может наблюдаться так же и в присутствии окиси углерода (СО). Сродство гемоглобина к окиси углерода и прочность связи между ними примерно в 300 раз выше, чем у гемоглобина к кислороду. В этом случае кислород вытесняется из связи с гемоглобином, а вместо оксигемоглобина образуется карбоксигемоглобин (Hb – CO).
Если одна линия клеток из стволовых клеток костного мозга приводит через многие клеточные деления к образованию зрелых эритроцитов, то другая линия клеток через ряд клеточных делений приводит к формированию лейкоцитов. Одна линия лейкоцитов приводит к получению полиморфоядерных гранулоцитов (базофилы, нейтрофилы, эозинофилы) и моноцитов. Другая линия клеток стволовой клетки дает рождение лимфоцитам. Цитокины, продуцируемые лейкоцитами или другими клетками в инфицированных тканях, участвуют в регуляции продукции незрелых лейкоцитов из стволовых клеток.
Гранулоциты и моноциты формируются только в костном мозге. Большинство незрелых лимфоцитов покидает костный мозг в конечной стадии развития плода и мигрирует в лимфоидную ткань лимфатических узлов, селезенки, тимуса, кишечника и других органов, где происходит их созревание через стадии митоза.
Лейкоциты крупного рогатого скота в норме составляют 4,5– 12,0 тыс./мкл крови. Время созревания лейкоцитов 8–10 суток. Количество лейкоцитов в крови животного составляет лишь 1/500–1/1000
