
составляет 0,004 мм) кислород взаимодействует с ННв, образуя оксигемоглобин – ННвО2:
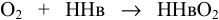
О2 + ННв → ННвО2
Оксигемоглобин по своим кислотным свойствам является более сильной кислотой, чем угольная кислота, а поэтому взаимодействует с бикарбонатным ионом, образуя слабую угольную кислоту:
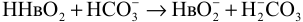
ННвО2 + НСО3− → НвО2− + Н2−СО3
Под действием карбоангидразы угольная кислота распадается на воду и СО2, поступающий из эритроцитов в плазму крови. Низкое парциальное давление в просвете альвеол способствует диффузии СО2 из плазмы в легкие.
Таким образом, гемоглобин обеспечивает не только транспорт кислорода, но и защиту тканей от постоянного поступления Н+ за счет ионизации угольной кислоты.
Следует также указать и на участие эритроцитов в иммунном процессе. Эритроциты несут на своей поверхности такие структуры, как рецепторы для отдельных компонентов комплемента и Fc-фрагмента IgG, пассивно адсорбируют большое количество странствующих антигенов, таких как бактериальные полисахариды, пенициллин. Это в известной мере предупреждает массивное поступление антигенов в органы иммуногенеза. Поэтому эритроциты выполняют роль своеобразной буферной системы, ответственной за интенсивность иммунного ответа (В. Н. Шабалин и др., 1988 г.).
Степень продукции эритроцитов контролируется гормоном эритропоэтином, образующимся в почках. Продукция этого гормона регулируется по типу обратной связи: обычно концентрация эритропоэтина низкая, но является достаточной для поддержания продукции эритроцитов в норме. При снижении транспорта кислорода в почки продукция эритропоэтина возрастает, и он транспортируется в костный мозг, где усиливает деление клеток, созревание предшественников эритроцитов. В результате нормализуется транспорт кислорода в почки.
В молекуле гемоглобина связывание кислорода не вызывает изменение валентности железа. Присоединение молекулы кислорода – это процесс оксигенации, а не окисление. Истинное окисление кислорода, когда железо гемоглобина переходит из двухвалентного состояния (Fe2+ ) в трехвалентное (Fe3+ ), что приводит к образованию метгемоглобина и потере способности гемоглобина присоединять кислород. Небольшое количество метгемоглобина (1–2%) постоянно образуется в эритроцитах. Поскольку эритроциты содержат фермент
гемоглобин-редуктазу, который восстанавливает железо в двухвалентное состояние, то аккумуляции метгемоглобина в крови не происходит.
Многие вещества могут быть причиной отравления животных метгемоглобином. У крупного рогатого скота наиболее опасными являются нитриты и хлораты, которые выступают как ингибиторы метгемоглобин-редуктазы. Например, при пастьбе скота на пастбищах, удобренных аммиачно-селитровыми удобрениями, спустя 1–5 ч после попадания яда в пищеварительный тракт, нитраты кормов в большом количестве могут переходить в рубце в нитриты, которые и вызывают образование больших количеств метгемоглобина в крови. У крупного рогатого скота признаки отравления наблюдаются в случае, если на долю метгемоглобина приходится 50–60% от общей концентрации гемоглобина крови. Уже при содержании метгемоглобина около 30% по отношению к гемоглобину кровь будет иметь слабый кофейный оттенок.
Яды – метгемоглобинобразователи (нитроглицерин, новокаин, сульфаниламиды, барбитураты, аспирин) блокируют кислородную функцию гемоглобина, тем самым вызывают гипоксию. В данном случае свойствами антидотов обладает глюкоза (сильный восстановитель в организме) и ее метаболит – глюкуроновая кислота.
Недостаточное снабжение тканей кислородом может наблюдаться так же и в присутствии окиси углерода (СО). Сродство гемоглобина к окиси углерода и прочность связи между ними примерно в 300 раз выше, чем у гемоглобина к кислороду. В этом случае кислород вытесняется из связи с гемоглобином, а вместо оксигемоглобина образуется карбоксигемоглобин (Hb – CO).
Если одна линия клеток из стволовых клеток костного мозга приводит через многие клеточные деления к образованию зрелых эритроцитов, то другая линия клеток через ряд клеточных делений приводит к формированию лейкоцитов. Одна линия лейкоцитов приводит к получению полиморфоядерных гранулоцитов (базофилы, нейтрофилы, эозинофилы) и моноцитов. Другая линия клеток стволовой клетки дает рождение лимфоцитам. Цитокины, продуцируемые лейкоцитами или другими клетками в инфицированных тканях, участвуют в регуляции продукции незрелых лейкоцитов из стволовых клеток.
Гранулоциты и моноциты формируются только в костном мозге. Большинство незрелых лимфоцитов покидает костный мозг в конечной стадии развития плода и мигрирует в лимфоидную ткань лимфатических узлов, селезенки, тимуса, кишечника и других органов, где происходит их созревание через стадии митоза.
Лейкоциты крупного рогатого скота в норме составляют 4,5– 12,0 тыс./мкл крови. Время созревания лейкоцитов 8–10 суток. Количество лейкоцитов в крови животного составляет лишь 1/500–1/1000
от количества эритроцитов. Преобладание лейкоцитов в костном мозге объясняется следующими факторами:
-
костный мозг в норме запасает в 10 раз больше лейкоцитов, чем их количество в крови. Зрелые эритроциты обычно сразу же переходят из мозга в кровь;
-
продолжительность жизни лейкоцита много короче, чем эритроцита;
-
зрелые эритроциты присутствуют только в крови, тогда как зрелые лейкоциты покидают кровь и находятся в тканях разные периоды времени.
Когда животное подвергается атаке патогенов, количество лейкоцитов быстро возрастает в крови.
Лейкоциты крови различают по наличию или отсутствию зернистости в цитоплазме (гранулоциты и агранулоциты), по отношению к кислым или основным красителям (базофилы, эозинофилы, нейтрофилы), по форме ядра (сегментированные или палочковидные), по размерам (малые, средние, большие). Различные виды лейкоцитов имеют свои особенности обмена веществ. В частности, если активно фагоцитирующие клетки (нейтрофилы) имеют выраженные окислительные и гидролитические процессы, то для лимфоцитов характерен активный синтез белка, что свидетельствует о связи их с синтезом иммуноглобулинов (В-лимфоциты). У крупного рогатого скота лимфоцитарный тип лейкограммы.
Таблица 3
Лейкограмма крови крупного рогатого скота, % (С. П. Ковалев, 2004)
| Б | Э | Нейтрофилы | Л | Мон | |||
|---|---|---|---|---|---|---|---|
| М | Ю | П | С | ||||
| 0–2 | 3–8 | 0 | 0–1 | 2–5 | 20–35 | 40–65 | 2–7 |
Все типы лейкоцитов имеют ядра, обычные клеточные органеллы и цитоплазматические мембранные пузырьки. Эти пузырьки являются лизосомами, которые реализуют их содержимое путем экзоцитоза. Лейкоциты получили название белых кровяных клеток, так как они не имеют пигментированных молекул, чтобы различить различные типы лейкоцитов под микроскопом. Размеры лейкоцитов значительно превосходят размеры эритроцитов.
Лейкоциты обладают всеми ферментами гликолиза, цикла Кребса, цепи реакций окислительного фосфорилирования, пентозофосфатного пути. В лейкоцитах сравнительно большая концентрация гликогена, который является источником энергии для фагоцитоза. Характерной особенностью морфологии лейкоцитов является также их насыщенность гидролитическими ферментами, сосредоточенными в субклеточных структурах – лизосомах. В лейкоцитах уровень цинка в 25 раз превышает таковой в эритроцитах.
