
капилляры селезенки. «Старые» эритроциты фагоцитируются лейкоцитами и макрофагами селезенки.
Зрелые эритроциты скота не имеют митохондрий, что исключает функционирование реакций цикла Кребса, но в них активно протекают реакции пентозофосфатного пути, анаэробного гликолиза и поэтому мало содержат СО2. Образующийся при анаэробном гликолизе АТФ необходим как субстрат Na+ -K+ -АТФ-азы, поддерживающей мембранный потенциал эритроцитов.
Одна из важнейших функций пентозофосфатного пути внутри эритроцитов – генерация за счет окисления молекул глюкозы НАДФН (Н+ ), который превращает окисленный глутатион (GSSG) в восстановленный (GSH), с участием глутатионредуктазы. Глутатион – трипептид, включающий глутаминовую кислоту, цистеин, глицин. Он находится во всех клетках в сравнительно высокой концентрации. Восстановленный глутатион является важнейшим антиоксидантом внутри эритроцитов.
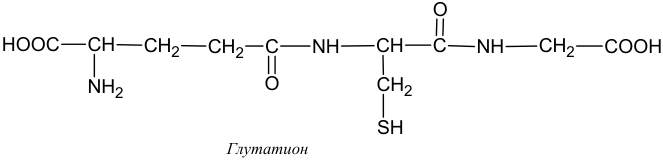
O
HOOC CH CH2 CH2 C NH CH C NH CH2 COOH
NH2 O CH2
SH
Глутатион
Глутатион с участием Se-содержащего фермента глутатионпероксидазы (ГП), подобно ферменту каталазе, способен разрушать перекись водорода – токсичную реактивную субстанцию, образующуюся во всех клетках:
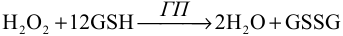
ГП
H2O2 +12GSH ⎯⎯⎯→ 2H2O + GSSG
Глутатион также нейтрализует гидроперекиси, образующиеся в реакциях свободных радикалов кислорода с ненасыщенными жирными кислотами мембран эритроцитов.
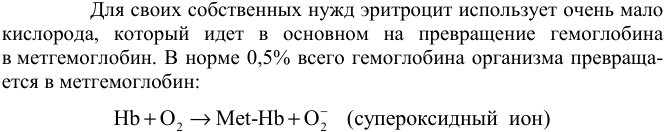
Для своих собственных нужд эритроцит использует очень мало
кислорода, который идет в основном на превращение гемоглобина
в метгемоглобин. В норме 0,5% всего гемоглобина организма превраща-
ется в метгемоглобин:
Hb + O2 → Met-Hb + O−2 (супероксидный ион)
Супероксидный ион, или свободный радикал кислорода с неспаренным (одиночным) электроном на внешней электронной оболочке, находится в возбужденном состоянии и является очень токсичным для клетки. В реакции его нейтрализации используется СОД:
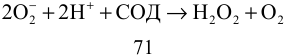
2O−2 + 2H+ + СОД → H2O2 + O2
71
В случае избытка в эритроците перекиси водорода она нейтрализуется ферментом каталазой:
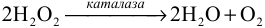
каталаза
2H2O2 ⎯⎯⎯⎯→ 2H2O + O2
Карбоангидраза осуществляет синтез угольной кислоты в капиллярах тканей, а в альвеолах легких обеспечивает распад этой кислоты на двуокись углерода и воду. Ацетилхолинэстераза участвует в регуляции проницаемости эритроцитов; выявлена зависимость между скоростью гемолиза эритроцитов и активностью в них этого фермента.
Мембраны эритроцитов проницаемы для воды, мочевины, CI– , OH– , H+ . Содержание фосфора в эритроцитах в 50–100 раз выше, чем в плазме, и часто он представлен в форме органических соединений (гексозо-фосфат, АТФ и др.). Концентрация калия в эритроцитах в 20 раз выше его концентрации в плазме (400 и 20 мг%, соответственно). Концентрация магния в эритроците в 2 раза выше, чем в плазме. Цинк эритроцита находится в составе карбоангидразы, которая отсутствует в плазме.
При уменьшении концентрации гемоглобина в единице объема крови или наличии различных патологических процессов, или болезней измененных форм эритроцитов, и при уменьшении числа циркулирующих эритроцитов, наступает состояние анемии. Анемия является симптомом определенного патологического процесса или болезни. Анемия часто сопровождается эритропенией – снижением числа эритроцитов в единице объема крови. Состояние анемии может наблюдаться при гиповитаминозе В6, Вс, В12, С у разных видов млекопитающих, но не у крупного рогатого скота. В практике скотоводства эти гиповитаминозы не регистрируются. Анемии скота могут иметь место при гипомикроэлементозах (Fe, Cu, Co). Следует отметить, что все заболевания животных, сопровождающиеся укорочением срока жизни эритроцитов, принято называть гемолитическими анемиями.
В легких при парциальном давлении кислорода около 100 мм рт. ст. гемоглобин, соединяясь с кислородом, переходит в оксигемоглобин, который легко распадается при снижении парциального давления кислорода в среде до 40–55 мм рт. ст. Именно такое давление имеет место в тканях. На прочность связи между гемоглобином и кислородом в оксигемоглобине влияют температура и концентрация ионов водорода в среде. Повышение температуры и концентрации водородных ионов ослабляет связь, и кислород начинает освобождаться при более высоком парциальном давлении. Такие условия создаются в интенсивно работающем органе, где лактат, СО2 и другие кислые конечные продукты метаболизма понижают рН крови, что позволяет ему получать большее количество кислорода. Снижение рН может снизить и максимальную способность гемоглобина связывать кислород за счет понижения сродства гемоглобина к кислороду.
При поступлении оксигемоглобина в ткани, СО2 переходит из тканей внутрь эритроцитов. Мембрана эритроцита, как и другие биологические мембраны, легко пропускает сквозь себя СО2. Внутри эритроцита большая часть СО2 при участии активной Zn-зависимой карбоангидразы трансформируется в угольную кислоту. Около 85% образующейся угольной кислоты претерпевает быструю спонтанную ионизацию с образованием протона Н+ и бикарбонатного иона HCO3− :
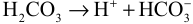
H2CO3 → H+ + HCO3−
В результате концентрация бикарбонатных ионов в эритроците становится выше, чем в плазме, и часть их сквозь мембрану эритроцита переходит в плазму. Между концентрацией бикарбонатных ионов в плазме и эритроцитом наступает равновесие.
Водородный ион угольной кислоты взаимодействует с основной формой оксигемоглобина HвO− 2 с образованием ННвО2, который диссоциирует на ННв и свободный кислород:
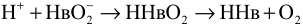
H+ + HвO2− → HHвО2 → ННв + О2
При этом кислород из эритроцита диффундирует в ткани организма. Образующаяся в тканях угольная кислота поступает в плазму крови и в ней растворяется для переноса в легкие. Транспорт угольной кислоты из тканей в легкие происходит несколькими путями. На долю растворимой формы угольной кислоты в общем транспорте приходится около 10%. Так как количество поступающей из тканей в кровь Н2СО3 значительно превышает возможности физического растворения, то ее избыток из венозной крови поступает внутрь эритроцита, где и соединяется с гемоглобином карбамидными связями по месту свободных аминогрупп глобина, образуя очень нестойкое соединение – карбгемоглобин. На долю карбгемоглобина приходится около 5% общего количества транспортируемой углекислоты.
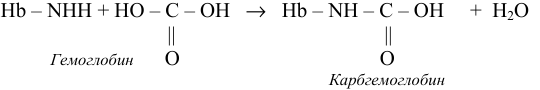
Hb – NHH + HO – C – OH → Hb – NH – C – OH + H2O
|| ||
Гемоглобин O O
Карбгемоглобин
Однако основное количество углекислоты транспортируется в легкие в форме гидрокарбонатов калия и натрия.
В капиллярах легких венозная кровь испытывает меньшее парциальное давление углекислоты, поэтому в силу разности давлений в венозной крови и воздухе происходит удаление из крови физически растворенной углекислоты и углекислоты в составе карбгемоглобина. В эритроцитах легочных капилляров (толщина альвеолярной стенки
