
ющие гомозиготным рецессивным генотипом, не могут выделять аммиак. Между пятым и седьмым днями заболевание быстро прогрессирует. При этом у телят с таким дефектом метаболизма наблюдаются клинические признаки интоксикации организма, а также постепенное ухудшение неврологических симптомов. Гибель животных без соответствующего лечения наступает в возрасте от 1 до 2 недель после рождения.
Впервые мутация была выявлена в популяции голштинского скота Австралии. Ее источником был признан один из голштинских быковпроизводителей – Linmack Kriss King.
Праймеры для амплификации фрагмента гена ASS:
CIT1-F: 5´-ggC CAg ggA CCg TgT TCA TTg Agg ACA TC - 3´ CIT2-R: 5´- TTC CTg ggA CCC CgT gAg ACA CAT ACT Тg - 3´
ПЦР-программа: 94 °С – 5 мин; 35 циклов: 94 °С – 30 сек, 57 °С – 30 сек, 72 °С – 1 мин; 72 °С – 10 мин.
Длина амплифицированного фрагмента – 185 п.о.
При расщеплении продуктов амплификации рестриктазой AvaII при 37 °С идентифицируются следующие генотипы:
генотип BCN/N – 103 и 82 п.о. (животные, свободные от мутации) генотип BCN/B – 185, 103 и 82 п.о. (животные-носители мутации) генотип BCB/B – 185 п.о. (животные с рецессивным генотипом)
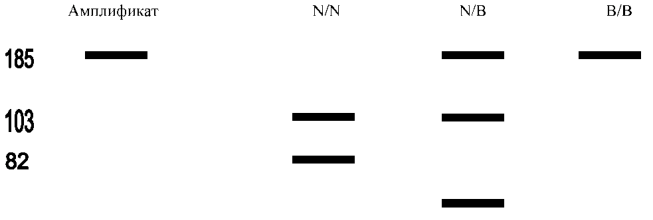
ДИАГНОСТИКА МУТАЦИИ BY (СИНДРОМ КОРОТКОЙ СПИНЫ) ГЕНА FANCI
Мутация брахиспина (синдром короткой спины) – впервые выявлена в 2007 году специалистами Голландии, Дании и Бельгии после регистрации рождения мертвых телят с укороченным позвоночником и, соответственно, спинным мозгом.
Сопровождается дополнительными клиническими признаками: снижение веса теленка при рождении до 10 кг, длинные конечности, пороки развития внутренних органов (сердца, почек и половых желез). У маточного поголовья снижается оплодотворяющая способность и повышается частота абортов.
Генеалогический анализ позволил установить, что носителем и распространителем мутации является бык С. Х. Традишн 1682485 линии Вис Айдиал 933122 и его сыновья – Клейтус 1879085 и Ледман 1983348.
В настоящее время около 5 % канадской, 6-8 % американской и голландской голштинской популяции крупного рогатого скота могут иметь в своем генотипе мутацию BY.
Альтернативные праймеры для определения мутации BY:
F1: 5´-gCT CAA gTA gTT AgT TgC TCC ACT g - 3´ R1: 5´- ATA AAT AAA TAA AgC Agg ATg CTg AAA - 3´
F2: 5´-TCA CAA AAg ggT Agg AgA CTA CCA Tg - 3´ R2: 5´- gCT TAT TgT TTA CCC TTg ACA gTg g - 3´
ПЦР-программа: 95 °С – 5 мин; 30 циклов: 94 °С – 1 мин, 60 °С – 1 мин, 73 °С – 1 мин; 73 °С – 5 мин.
Длина амплифицированных фрагментов:
-
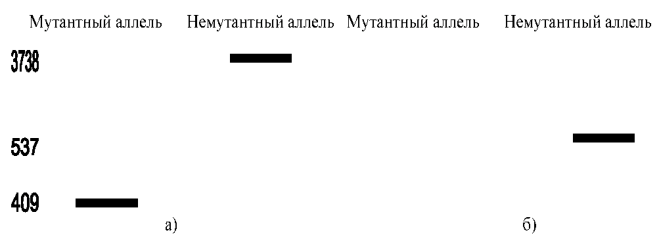
а) при использовании пары праймеров F1 и R1: генотип BYF – 3738 п.о. (животные, свободные от мутации) генотип BYC – 409 п.о. (животные-носители мутации)
-
б) при использовании пары праймеров F1 и R1 генотип BYF – 537 п.о. (животные, свободные от мутации) генотип BYC – фрагменты не наблюдаются (животные-носители
-
мутации)
ЧАСТОТЫ ВСТРЕЧАЕМОСТИ МУТАЦИЙ BLAD, DUMPS, СVM, BC И ВY В ОТЕЧЕСТВЕННОЙ ПОПУЛЯЦИИ КРУПНОГО РОГАТОГО СКОТА ГОЛШТИНСКОЙ СЕЛЕКЦИИ
Наличие синдрома врожденного иммунодефицита крупного рогатого скота, обусловленного точковой мутацией в кодирующей части аутосомного гена CD18, было выявлено у 3,7 % быковпроизводителей, 2,2 % высокопродуктивных коров и 3,4 % протестированных ремонтных бычков (таблица 1).
Таблица 1 – Частота встречаемости мутации BLAD в голштинской популяции КРС отечественной селекции
| Половозрастная группа | Кол-во животных | Частота встречаемости мутации BLAD, % |
|---|---|---|
| Быки-производители | 856 | 3,7 |
| Ремонтные бычки | 509 | 3,4 |
| Племенные коровы | 1184 | 2,2 |
| В среднем | 2549 | 3,0 |
Установлены пути передачи мутации племенному молодняку не только через отцов, но и через матерей, имеющих мутантный аллель в своем генотипе. В ряде случаев было установлено, что передача мутантного гена ремонтному бычку осуществлялась через мать – быкопроизводящую корову, являющуюся носителем мутации в гетерозиготной форме. Генотип отца таких бычков был свободен от мутации.
В отдельных случаях пути передачи мутантного гена выявлены не были, в связи с отсутствием результатов ДНК-тестирования отцов и матерей бычков. В одном случае при подтвержденном отцовстве запись о матери не подтвердилась.
Для оценки динамики распространения мутации BLAD среди крупного рогатого скота голштинской популяции в разрезе лет были использованы данные предыдущих исследований (таблица 2).
