
В это время была сделана попытка, соединить самку и самца, но неудачно. Самка тут же бросилась на него и ударила головой, самец моментально выскочил из бассейна и убежал в дальний угол. Пришлось их опять разделить, после чего самец трое суток не мог зайти в бассейн. Только его голова появлялась на лестнице, самка разворачивалась, рычала и поднимала задними лапами фонтан брызг. При этом она могла бросить кормить, разбудить детеныша и сама перестать есть. Только на третьи сутки самец спустился в бассейн, но предпочитал ложиться подальше, прекратил попытки сломать перегородку.
После неудачи с соединением бегемотов, их поменяли местами, и самка с детенышем стали выходить наверх и в уличный вольер. Здесь опять проявилась её крайняя осторожность, она постоянно загоняла детеныша назад в помещение, и пришлось установить на улице кормушку, чтобы бегемоты чаще гуляли.
Интересно наблюдение первого выхода детеныша из бассейна. Мать несколько раз выходит и заходит обратно по трапу, внизу подталкивает детеныша мордой. Выходит он следом за ней, но обратно спустился только к концу дня. При этом постоянно подходил к лестнице и хрюкал – звал мать. Передняя лапа соскользнула, и детеныш вернулся наверх. Опять началось хождение самки вверх и вниз. Лишь через 12 часов детеныш решился спуститься в бассейн.
Звуковая сигнализация развита между самкой и детенышем достаточно хорошо. Впервые детеныш заревел, когда мать отсадили для мытья бассейна, а он еще плохо ходил (3 суток). При попытке взять на руки – громко заревел. Когда мать начала выходить из бассейна к кормушке, а детеныш еще не мог подняться, он постоянно двигался и издавал хрюкающие звуки, которые периодически становились громче. В этом случае мать поворачивалась и смотрела на него, или спускалась обратно в бассейн, подходила к детенышу, трогала его губами, или лизала (рис. 3). Иногда при этом детеныш немного сосал и успокаи-
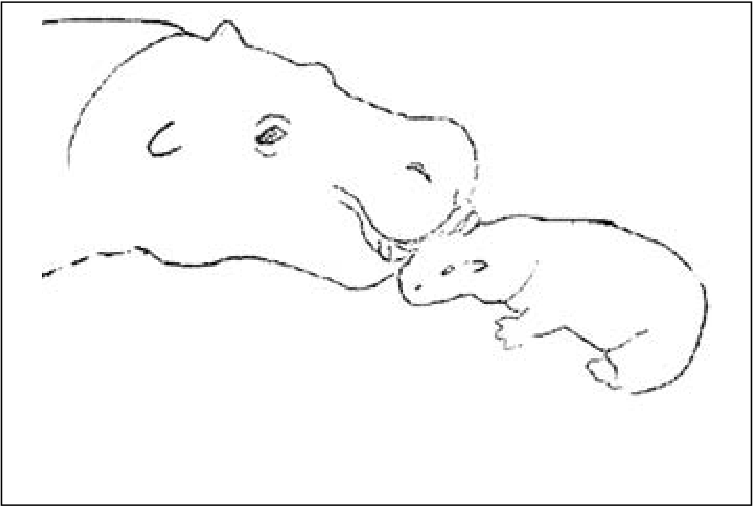
вался. По мере привыкания к отсутствию матери он стал хрюкать тише и реже.
Рис. 3 Уход за детенышем.
С трехмесячного возраста детеныш пытается хватать ртом кашу и сено. В пять месяцев начал есть кашу, траву и капусту.
Впервые удалось обмерить детеныша в возрасте 5,5 мес. Получены следующие данные: длина тела – 105 см, длина головы – 32 см, высота в холке – 63 см. По сравнению с данными Рижского зоосада для детеныша-самца (Шауер, 1986 г.): 111 см – длина тела, 41 см – длина головы, наш детеныш несколько меньше.
Некоторые выводы:
-
Бегемоты не являются сложным объектом для содержания и кормления и при наличии подходящих условий, хорошо размножаются в неволе.
-
В условиях Сибирского региона вполне реально получить и вырастить потомство от этих животных.
Литература
-
Банников А.Г., Флинт В.Е. 1989. Семейство бегемотовые (Hippopotamidae). Подотряд нежвачные (Nonruminantia). Отряд парнокопытные (Artiodactyla). // Жизнь животных, т. 7. – М.: Просвещение, с. 434-436.
-
Шауер Г.К. 1986. Содержание и размножение обыкновенных бегемотов в Рижском зоосаде. Редкие и исчезающие виды в зоопарках СССР. - Рига, с. 34-38.
Гржимек Б. 1979. Мы жили среди бауле. – М.: Мысль.
Английская аннотация статьи из оригинала
Summary
T.M. Pochekueva, T.V. Guseletova. The First Successful Experience of Husbandry and Breeding of African Hippopotamus (Hippopotamus amphibius) in the Zoo of Siberia.
Some aspects of keeping of hippopotamus at Bolsherechye Zoo are discussed and the experience of the first successful breeding of this species in the Siberian region is presented.
ОСОБЕННОСТИ КОРМЛЕНИЯ ЖВАЧНЫХ ПАРНОКОПЫТНЫХ ( Artiodactyla, Ruminantia ) РАЗЛИЧНЫХ ЭКОЛОГИЧЕСКИХ ТИПОВ
М.В. Холодова
Институт проблем экологии и эволюции им. А.Н. Северцова РАН, г. Москва
mvkholod@mail.ru
Жвачные парнокопытные, насчитывающие около 200 видов, – наиболее процветающая и разнообразная группа современных крупных млекопитающих. Чрезвычайно изменчиво питание этих растительноядных животных. В данном обзоре рассматриваются основные характеристики растительных кормов и особенности пищевых адаптаций разных групп диких жвачных, имеющие большое значение для успешного содержания и разведения этих животных в неволе.
Качество кормов
Спектр кормов, поедаемых жвачными копытными, очень широк. Он включает различные части огромного числа видов сосудистых растений – от коры и веток до плодов и цветов, а также грибы, лишайники, водоросли (Гептнер и др., 1961; Данилкин, 1999, 2005; Owen-Smith, 1982; и др.). Некоторые виды копытных, например, северные олени, тропические дукеры, испытывающие недостаток протеина в корме, иногда поедают доступные животные корма – яйца птиц, птенцов и др.
Питательная ценность и химический состав различных типов растительных кормов значительно варьируют (Томмэ и др., 1964). Степень усвояемости корма, определяющая его питательную ценность, обычно оценивается по коэффициенту переваримости – процентному отношению усвоенной части (разница между сухим весом съеденного корма и выделенных экскрементов) к весу съеденного корма (Томмэ и др., 1970; Owen-Smith, 1982). Этот показатель может варьировать в несколько раз в зависимости от типа корма. Так, для молодой зелени, концентрированных зерновых кормов он может превышать 80%, для естественных зимних кормов копытных высоких и средних широт коэффициент переваримости составляет не более 40-50%, а в ряде случаев, например, для толстых побегов березы, поедаемых лосем в бескормицу зимой, падает ниже 10% (Кузнецов, 1976; Hjeljord et al., 1982). Переваримость кормов в основном зависит от их биохимического состава. Высокое содержание протеина и безазотистых экстрактивных веществ (БЭВ), в основном включающих легкопереваримые углеводы, увеличивают усвояемость кормов.
Для жвачных копытных, включая северного, благородного, белохвостого и чернохвостого оленей, европейской косули, лося, нубийского козла, различных видов африканских антилоп, сайгака, зубра, кабарги, показано, что увеличение в корме клетчатки – сложного вещества, составляющего основу клеточных стенок растений, включающего в свой состав целлюлозу, гемицеллюлозу, лигнин и другие компоненты, приводит к снижению его переваримости
