
закупорке пищевода газ накапливается в рубце, приводя к тимпании. Острая тимпания приводит к расширению объема рубца и сетки, что оказывает давление на грудную клетку и нарушает функции легких и сердца. Острая тимпания – это результат более активной продукции газов в преджелудках, по сравнению с количеством газов, удаляемых из организма за счет отрыжки. Отметим, что рубец и сетка взрослого скота испытывают сложные постоянные сокращения, повторяющиеся несколько раз в минуту.
Уксусная кислота преобладает в рубце в большей мере при расщеплении клетчатки, пропионовая кислота – при распаде крахмала, дисахаридов, а масляная кислота – при распаде белков корма.
Метаболически важными для организма жвачных являются и так называемые минорные летучие жирные кислоты – валерьяновая, изовалерьяновая, изомасляная. Эти кислоты образуются в следующих реакциях:
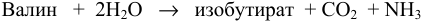
Валин + 2Н2О → изобутират + СО2 + NH3
Лейцин + 2Н2О → изовалерат + СО2 + NH3
Минорные летучие жирные кислоты необходимы для синтеза разветвленных аминокислот отдельными видами бактерий рубца. В крови жвачных животных уксусная кислота в активной форме (ацетилкоэнзим А) составляет 90% от общего количества ЛЖК.
До 90% летучих жирных кислот абсорбируется из рубца, поэтому лишь небольшое их количество достигает сычуга. Молекулярный механизм абсорбции из рубца ЛЖК не совсем выяснен; при этом важным представляется уровень рН и СО2 на поверхности абсорбции. Ацетат проходит без изменений через стенку рубца. Большинство пропионата абсорбируется, но небольшая его часть конвертируется в лактат эпителиальными клетками. Бутират активно превращается перед абсорбцией в бета-гидроксибутират. Последний – активный метаболит, известный как кетоновое тело.
Наличие складок, сосочков увеличивает эпителиальную поверхность слизистой рубца и степень абсорбции. Ионы, как и ЛЖК, транспортируются из рубца в кровь. Моносахара и аминокислоты не абсорбируются из рубца. Небольшое количество газов, образующихся в результате ферментации в рубце, абсорбируется сквозь стенку рубца.
У коров при каждом сокращении рубца около 100 мл мелкодисперсного содержимого сетки транспортируется в книжку. В книжке происходит дальнейшая ферментация. Сокращения книжки более слабые и продолжительные, чем сокращения рубца и сетки. Как и в рубце, ЛЖК, вода, электролиты в значительных количествах абсорбируются сквозь эпителий книжки. Абсорбция воды и ионов увеличивает плотность содержимого книжки по сравнению с содержимым рубца. Течение воды сквозь эпителий рубца обеспечивается разницей осмолярности между
рубцовой и межклеточной жидкостью. После приема корма осмолярность в рубце повышается, и поток воды приходит из межклеточной жидкости в рубец. При слабой ферментации поток воды направляется из рубца в межклеточную жидкость. Содержимое рубца имеет отрицательный потенциал по отношению к крови. Это различие потенциала снижает степень абсорбции положительных ионов, таких как K+ и Mg2+ . Установлен также значительный транспорт ионов Na+ , потому что слюна дополняет большое количество натрия в содержимое рубца. Хлориды абсорбируются диффузией частично в обмен на ионы HCO3− , которые переходят из межклеточной жидкости в содержимое рубца. Из рубца активно абсорбируется магний. Высокие концентрации калия и ионов аммония в жидкости рубца приводят к снижению абсорбции Mg2+ . Кальций и фосфор абсорбируются в очень небольшой степени из рубца в нормальных условиях; эти ионы в основном абсорбируются в тонком кишечнике. Аммиак легко проходит сквозь эпителий рубца и в крови он представлен как ион аммония – NH+ 4 в очень низкой концентрации, который в печень поступает на синтез мочевины.
Превращение основной массы клетчатки в преджелудках у жвачных животных в ЛЖК объясняет факт более низкой концентрации глюкозы в крови этого вида животных (50 мг%, 2,55–3,88 ммоль/л) по сравнению с другими видами животных (лошадь – 90 мг%, 4,20– 5,55 ммоль/л). Бóльшая часть ЛЖК поступает из полости многокамерного желудка в кровь, тогда как из кишечника в течение суток у коровы в кровяное русло абсорбируется не более нескольких граммов глюкозы.
В то же время глюкоза нужна животному как клеточное топливо для мозга, других органов и тканей, как предшественник синтеза лактозы в период лактации. Откуда же берется глюкоза у жвачного животного, если полисахариды почти полностью метаболизируют до ЛЖК? Эта потребность покрывается за счет активного участия ЛЖК в процессе глюконеогенеза в печени по схеме:
Пропионат → Сукцинат → Малат → Глюкоза
Таким образом, у жвачных животных ЛЖК являются поставщиками до 70% всей необходимой организму энергии. Концентрация ЛЖК в плазме крови крупного рогатого скота составляет 1,5–3,0 мг%.
Следует отметить, что в составе клетчатки кормов содержится негидролизуемое вещество – лигнин, который затрудняет распад полисахарида до отдельных молекул глюкозы. С возрастом растений содержание в них лигнина повышается.
Объем сычуга у коровы составляет 10–15 л, в котором в течение суток выделяется 50–60 л сычужного сока. Слизистая сычуга имеет однослойный цилиндрический эпителий, формирующий железы, которые продуцируют пепсиноген и соляную кислоту. При нормальной секреции желез слизистой сычуга рН желудочного сока составляет 1,5–2,0. Ионы 13
водорода и хлориды, участвующие в синтезе НСI, секретируются париетальными клетками стенки сычуга. При этом ионы водорода для секреции НСI поступают в результате диссоциации Н2СО3. Угольная кислота является результатом взаимодействия Н2О и СО2 под влиянием фермента угольной ангидразы, активность которой высокая в слизистой сычуга. Совместное действие гастрина, гистамина и ацетилхолина на париетальные клетки приводит к повышению синтеза НСI, нормальная концентрация которой в сычуге крупного рогатого скота составляет 0,1– 0,25%. Гистамин играет вспомогательную роль в секреции желудка. Париетальные клетки имеют поверхностные рецепторы для гастрина, ацетилхолина и гистамина. Гистамин секретируется тучными клетками. Гистамин-секретирующие клетки стимулируются гастрином и ацетилхолином. Таким образом, эффект гастрина и ацетилхолина на секрецию желудочного сока объясняется через их стимуляцию гистаминной секреции.
У жвачных животных бóльшая часть белков кормов претерпевает превращения еще в преджелудках при участии бактерий и инфузорий. Ферменты микрофлоры рубца способны расщеплять белки кормов с освобождением свободных аминокислот. Эти аминокислоты могут быть частично использованы для синтеза белков микроорганизмов или подвергаться распаду с освобождением аммиака. Аммиак используется для синтеза новых аминокислот, включая незаменимые, или поступает в печень для синтеза мочевины.
Мочевина может использоваться микрофлорой рубца для синтеза собственных белков, заменяя, таким образом, часть кормового белка. В то же время белки микрофлоры являются источником незаменимых аминокислот для организма животного.
Сычужный сок содержит протеолитические ферменты – пепсин и химозин (у молодых телят) и незначительное количество липазы. Пепсин обычно рассматривается как единый компонент, но в действительности представляет собой целое семейство белков-ферментов, секретируемых главными клетками стенки желудка в виде неактивных проэнзимов – пепсиногенов. Пепсиноген в кислой среде переходит в активный пепсин. Молекулы пепсина затем активируют новые молекулы пепсиногена. Такой механизм, в котором молекулы активного фермента активируют новые молекулы этого фермента, получил название аутокатализа. Пепсин гидролизует белки за счет разрыва пептидных связей, образованных ароматическими аминокислотами. Получаемые при этом пептиды являются потенциальными стимуляторами секреции HCI. Химозин (реннин) в кислой среде вызывает преципитацию и коагуляцию основного белка молока – казеина. Коагуляция увеличивает время пребывания белков молока в сычуге и позволяет более полно воздействовать на них пепсином. Пепсин также коагулирует белки молока, но его действие значительно слабее.
