
этерифицированный холестерол проникает внутрь частицы ЛПВП, и в таком виде транспортируется из тканей и плазмы в печень. Печень является единственным органом, который метаболизирует и экскретирует холестерол. Таким образом, ЛХАТ, действуя на ЛПВП, обеспечивает транспорт холестерола из периферических тканей в печень.
В печени конечными продуктами метаболизма холестерола являются желчные кислоты. Концентрация холестерола в желче составляет 390 мг% (T. M. Devlin, 1986). Избыток холестерола выводится из организма в составе желчи и каловых масс. В результате длительных научных поисков препаратов, снижающих уровень холестерола в организме, был изолирован из штама Aspergillus terreus ловастатин (мевинолин). Ловастатин оказался ингибитором фермента редуктазы, восстанавливающего 3-гидрокси-3метилглутарил-S-КоА в мевалонат в синтезе холестерола. Его оральное введение в дозе 20–80 мг в день оказывало выраженное снижение уровня холестерола в сыворотке крови человека (R. H. Garrett et al., 2005).
Важное диагностическое значение имеет определение в плазме крови концентрации кетоновых (ацетоновых) тел. В норме их уровень в крови не превышает 5 мг%, тогда как в мышечной ткани они составляют 25–30 мг%. В венозной крови их концентрация ниже, чем в артериальной, что свидетельствует об их использовании в энергетике мышечной ткани.
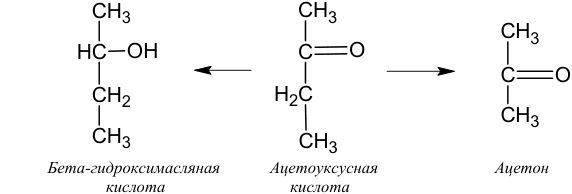
В клетках печени жирные кислоты лишь в ограниченных количествах окисляются до СО2 и Н2О. Поступление в митохондрии гепатоцитов жирных кислот в большом количестве приводит к образованию больших количеств молекул ацетил-КоА, которые в определенной мере минуют цикл трикарбоновых кислот и идут на синтез кетоновых тел: ацетоуксусной, бета-гидроксимасляной кислоты и ацетона. Все кетоновые тела являются производными ацетоуксусной кислоты.
Кетоновые тела, как водорастворимые вещества, покидают печень и служат альтернативным источником энергии для клеток тканей, которые способны превращать их в молекулы ацетил-КоА для дальнейшего окисления в цикле трикарбоновых кислот. При избытке кетоновых тел в крови они появляются в моче, молоке, в выдыхаемом воздухе.
CH3 CH3
CH3
HC OH C O
C O
CH2 H2C
CH3
CH3 CH3
Бета-гидроксимасляная Ацетоуксусная Ацетон
кислота кислота
Избыточная продукция ацетоуксусной и бета-гидроксимасляной кислот приводит к состоянию метаболического ацидоза (кетоацидоза). У жвачных животных концентрация бета-гидроксимасляной кислоты в 10 раз выше, чем концентрация ацетоуксусной кислоты.
У жвачных животных синтез кетоновых тел имеет место в слизистой оболочке преджелудков из масляной и уксусной кислот, откуда они поступают в различные органы и ткани, в частности, в сердечную и скелетные мышцы, где используются в качестве источника энергии, особенно при дефиците глюкозы.
Мозг жвачных содержит все необходимые ферменты, которые позволяют нервной ткани использовать кетоновые тела как источник энергии при снижении уровня глюкозы в крови. Мозг использует как глюкозу, так и кетоновые тела, для продукции АТФ. Это очень важно при голодании животного, так как использование белков в этих целях требует большего времени. У жвачных мозг неспособен ограничивать использование глюкозы, даже при длительном голодании и кетоновые тела таким образом не являются альтернативным источником энергии для мозга.
На ранних стадиях голодания использование кетоновых тел сердечной и скелетными мышцами сохраняет глюкозу для поддержания функций нервной системы. При более длительном голодании повышение в крови уровня ацетоуксусной и бета-гидроксимасляной кислоты обеспечивает их эффективное использование мозгом для получения энергии, который имеет низкую способность окисления высокомолекулярных жирных кислот. Высокий уровень бета-гидроксимасляной кислоты в крови указывает на дефицит энергии кормов рациона.
Состояние избыточной концентрации кетоновых тел в крови животного носит название кетонемии (ацетонемии). При этом концентрация кетоновых тел может достигать 100 мг%. В таком случае кетоновые тела обнаруживаются в моче (кетонурия, ацетонурия), в выдыхаемом воздухе коров. Все это свидетельствует о развитии кетоза (повышенного образования кетоновых тел). При кетозе параллельно с повышением концентрации кетоновых тел в крови происходит и повышение их содержания в молоке (кетолактия). Если в норме это содержание не превышает 5 мг%, то в случае кетоза их концентрация увеличивается в 3– 5 раз, что позволяет использовать реактив Лестраде, порог чувствительности которого составляет 10 мг% кетоновых тел, в диагностических целях.
Однако при хронических кетозах уровень кетоновых тел в крови, молоке и моче может лишь незначительно превышать норму. Концентрация кетоновых тел в крови наивысшая в случаях необходимости больших затрат энергии, например, у высокоудойных коров, но в то же время при недостаточности энергии кормов рациона. При таких обстоятельствах секреция инсулина снижается и липолитические гормоны – адреналин, гормон роста – могут оказывать свой липолити-
ческий эффект, вызывая образование больших количеств свободных жирных кислот, превышающих потребность цикла трикарбоновых кислот.
Таким образом, непосредственной причиной кетоза у жвачных животных являются нарушения баланса и функций гипофизонадпочечниковой системы, что приводит к блокированию использования углеводов организма при переходе от грубых кормов к концентратам, при отелах, после отела, при лактации. В этих случаях снижается активность цикла трикарбоновых кислот в тканях и молекулы ацетилКоА, не успевая «сгорать» в цикле реакций, идут на избыточное образование кетоновых тел.
Чтобы вызвать кетоз у молочных коров, необходимо иметь одновременно фактор мобилизации липидов и дефицит глюкозы и глюкозообразователей (пропионовая кислота, глицерин, аланин и др.). Такая ситуация часто наблюдается при использовании рационов с низким содержанием углеводов. Кетоз не развивается у коровы до тех пор, пока не происходит увеличение свободных жирных кислот в крови в результате липолиза триглицеридов в жировой ткани. В этом случае образуется значительное количество молекул ацетил-КоА, тогда как концентрация щавелевоуксусной кислоты понижается при дефиците углеводов. Щавелевоуксусная кислота синтезируется из пировиноградной кислоты, продукта гликолиза. При длительном голодании щавелевоуксусная кислота расходуется на образование глюкозы путем глюконеогенеза, а следовательно, она недоступна для реакции с ацетилКоА. Таким образом, без должного уровня щавелевоуксусной кислоты цикл трикарбоновых кислот не способен полностью окислять повышенное количество молекул ацетил-КоА, а поэтому они используются на синтез кетоновых тел.
Кетозы имеют место у высокоудойных коров, и первым клиническим признаком является частичный или полный отказ поедания концентратов, хотя животные продолжают поедать сено, силос. Затем коровы становятся вялыми, апатичными, руминация прекращается и резко снижается удой молока. В выдыхаемом воздухе наличие запаха ацетона.
Кетозы могут наблюдаться у молочных коров как высокой, так и низкой упитанности. Клинические кетозы характеризуются гипогликемией, повышением уровня кетоновых тел, свободных жирных кислот и бета-гидроксибутирата в крови. Гликемия может достигать 30 мг% (1,65 ммоль/л), поэтому при кетозах рекомендуются внутривенные введения растворов глюкозы (100–200 г в виде 10–20% раствора 1–2 раза в сутки), а также оральное введение животному пропионовой кислоты совместно с пропиленгликолем в течение 2–5 дней. В этом случае пропионовая кислота более быстро нормализует уровень сахара в крови, тогда как пропиленгликоль оказывает пролонгированное действие.
