
группа (гем) и аллостерическая регуляция. Гем является простетической группой гемоглобина, миоглобина, цитохромов, каталазы, пероксидаз, монооксид – азот синтетазы. Синтез гема происходит во всех клетках организма, за исключением эритроцитов. Этот синтез очень активен в костном мозге (85% всего количества гема в организме) и печени. Синтез гема распределен между митохондриями и цитоплазмой. Его предшественниками являются глицин и сукцинил-КоА.
Важнейшая функция гемоглобина эритроцитов состоит в транспорте кислорода от легких в ткани и конечных продуктов клеточного дыхания Н+ и СО2 из тканей в легкие и почки. СО2 образуется в реакциях биологического окисления в митохондриях клеток. Гемоглобин транспортирует около 40% всего Н+ и 15–20% СО2 тканей в легкие и почки. Оставшиеся ионы Н+ абсорбируются бикарбонатами плазмы крови.
Гемоглобин способен связывать в 87 раз больше кислорода, чем плазма крови. Молекулярная масса гемоглобина равна 68 тыс. Молекула гемоглобина является тетрамером, включающим 2 альфа- и 2 бетасубъединицы с молекулярными массами около 16 тыс. Каждая субъединица имеет структуру гема с ионом двухвалентного железа (Fe+2 ) в центре. Поэтому одна молекула гемоглобина, имея в своей структуре четыре гема, одновременно присоединяет 4 молекулы кислорода. Атомы азота гема, имеющие электрон-дающие свойства, помогают предупреждать конверсию железа гема в состояние Fe+3 . Связывание молекулы кислорода с атомом железа не изменяет степень окисления атома железа, которая остается Fe+2 . Связывание Н+ осуществляется определенными остатками аминокислот глобина молекулы гемоглобина.
Гемоглобин составляет 95% всех белков эритроцита и 35% его массы. Гемоглобин придает крови красный цвет. Цвет крови зависит от числа молекул кислорода, связанных с каждой молекулой гемоглобина. Цвет крови розовый при полном насыщении молекул гемоглобина кислородом, что имеет место в случае артериальной крови. Венозная кровь имеет всегда меньше связанного кислорода, она темного цвета.
Активный синтез гема осуществляется в красном костном мозге (85%) и в печени (синтез гема цитохромов). Жвачные животные имеют три типа гемоглобина: эмбриональный, плодный и взрослый. Эмбриональный и плодный гемоглобины связывают кислород лучше, чем гемоглобин взрослый, так как они должны осуществлять перенос кислорода из системы кровообращения матери. Это важно, так как давление кислорода в плаценте, в органе дыхания плода, низкое. Связь гемоглобина с кислородом контролируется 2,3-дифосфоглицератом, присутствующим в сравнительно высокой концентрации в эритроцитах. При повышении концентрации 2,3-дифосфоглицерата сродство гемоглобина к кислороду понижается. После рождения теленка плодный гемоглобин замещается взрослым гемоглобином. Концентрация гемоглобина у жвачных животных в норме составляет 90–130 г/л. Концентрация гемоглобина в крови очень
зависит от возраста животного. Нормальный синтез гемоглобина невозможен без должного уровня в рационе белков, железа, меди, витаминов – В2, В6, В12, Вс. При дефиците одного из этих факторов в рационе содержание гемоглобина в крови животного будет снижено.
Около 70% всего железа организма животного связано с гемоглобином. Оставшиеся 30% железа запасаются в виде комплекса с белком (ферритин) в макрофагах, печени, селезенке, в костном мозге. Все клетки организма также содержат небольшие количества железа в составе сложных ферментов. В крови железо транспортируется в виде белкового комплекса – трансферрина. При распаде старых эритроцитов железо переходит в структуру трансферрина и с кровью поступает в печень для депонирования или в костный мозг, где вновь используется для синтеза гемоглобина. Небольшие количества железа теряются с мочой.
Зрелые эритроциты жвачных не имеют ядер и неспособны к клеточному синтезу, а поэтому новые эритроциты могут появляться только делением стволовых клеток. На стадии плода эритроциты продуцируются в печени и селезенке, а в конце этой стадии формирование клеток крови осуществляется в красном костном мозге. Стволовые клетки продуцируют как эритроциты, так и лейкоциты. Стволовые клетки не содержат гемоглобин. После нескольких делений этих клеток часть их (проэритро-бласты) трансформируются в эритроциты, которые наполняются гемоглобином, теряют ядра. Безъядерные, еще незрелые эритроциты содержат рибосомы и другие органелы. Эти клетки получили название ретикулоцитов.
Ретикулоциты еще имеют несколько РНК и продолжают синтез гемоглобина. Спустя 2–3 дня ретикулоциты становятся зрелыми эритроцитами. Как ретикулоциты, так и зрелые эритроциты покидают костный мозг и сквозь эпителиальные клетки капилляров поступают в кровь. Ретикулоциты имеют все ферменты гликолиза, цикла Кребса, пентозофосфатного пути, окислительного фосфорилирования, синтеза гемоглобина, холестерола, фосфолипидов, пуриновых нуклеотидов. Ретикулоциты имеют большую степень поглощения глюкозы, чем зрелые эритроциты. Ретикулоциты имеют также фермент глицеролкиназу и могут активно использовать глицерин для получения энергии.
Во время созревания эритроциты млекопитающих теряют внутриклеточные органоиды и ядро, а также утрачивают способность к делению. Эритроциты имеют эластичную мембрану, поэтому они легко проходят через капилляры. Объем и специфическая форма эритроцитов сохраняются за счет постоянного расхода энергии АТФ. АТФ обеспечивает транспорт из эритроцитов ионов натрия и сохранение уровня калия (K+ -Na+ -насос). При старении эритроцитов они теряют эластичность своих клеточных мембран, которые становятся хрупкими, и подвергаются распаду – гемолизу при прохождении сквозь узкие
капилляры селезенки. «Старые» эритроциты фагоцитируются лейкоцитами и макрофагами селезенки.
Зрелые эритроциты скота не имеют митохондрий, что исключает функционирование реакций цикла Кребса, но в них активно протекают реакции пентозофосфатного пути, анаэробного гликолиза и поэтому мало содержат СО2. Образующийся при анаэробном гликолизе АТФ необходим как субстрат Na+ -K+ -АТФ-азы, поддерживающей мембранный потенциал эритроцитов.
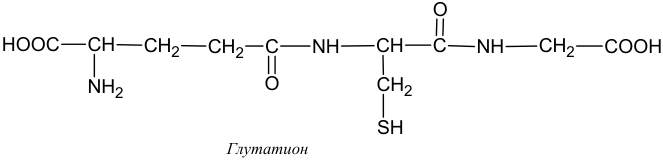
Одна из важнейших функций пентозофосфатного пути внутри эритроцитов – генерация за счет окисления молекул глюкозы НАДФН (Н+ ), который превращает окисленный глутатион (GSSG) в восстановленный (GSH), с участием глутатионредуктазы. Глутатион – трипептид, включающий глутаминовую кислоту, цистеин, глицин. Он находится во всех клетках в сравнительно высокой концентрации. Восстановленный глутатион является важнейшим антиоксидантом внутри эритроцитов.
O
HOOC CH CH2 CH2 C NH CH C NH CH2 COOH
NH2 O CH2
SH
Глутатион
Глутатион с участием Se-содержащего фермента глутатионпероксидазы (ГП), подобно ферменту каталазе, способен разрушать перекись водорода – токсичную реактивную субстанцию, образующуюся во всех клетках:
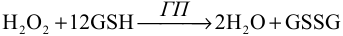
ГП
H2O2 +12GSH ⎯⎯⎯→ 2H2O + GSSG
Глутатион также нейтрализует гидроперекиси, образующиеся в реакциях свободных радикалов кислорода с ненасыщенными жирными кислотами мембран эритроцитов.
Для своих собственных нужд эритроцит использует очень мало
кислорода, который идет в основном на превращение гемоглобина
в метгемоглобин. В норме 0,5% всего гемоглобина организма превраща-
ется в метгемоглобин:
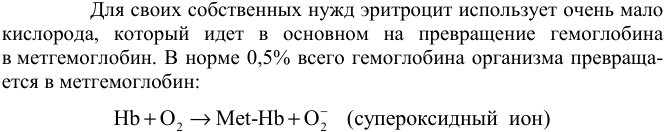
Hb + O2 → Met-Hb + O−2 (супероксидный ион)
Супероксидный ион, или свободный радикал кислорода с неспаренным (одиночным) электроном на внешней электронной оболочке, находится в возбужденном состоянии и является очень токсичным для клетки. В реакции его нейтрализации используется СОД:
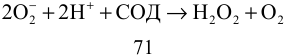
2O−2 + 2H+ + СОД → H2O2 + O2
71
