
(Ogiwara et al., 2005).
Участие в процессе разрыва фолликулярной стенки принимают и тканевые ингибиторы металлопротеиназ (TIMPs). Снижение их уровня и повышение активности металлопротеиназ (MMPs) и активаторов плазминогена (PAs) облегчает процесс разрыва стенки (Li et al., 2006).
В осуществлении процесса разрыва верхушечной поверхности фолликула и овуляции доказано участие ангиотензина (AngII). После выброса ЛГ концентрация этого пептида в фолликулярной жидкости возрастает. В фолликулах крупного рогатого скота выявлено два подтипа рецепторов к ангиотензину – AGTR-1 и AGTR-2. Рецепторы типа AGTR-1 оказывают воздействие на сокращение гладких мышц и регулируют давление крови, а рецепторы AGTR-2 выполняют роль медиаторов репродуктивной функции (Yoshimura et al., 1996).
Было выяснено также, что в каскаде событий в предовуляционном процессе принимают участие и простагландины, главным образом ПГF2α. Доказано, что он расширяет кровеносные сосуды в изменённых тканях апикального участка стенки фолликула. Введение внутривенно индометацина – антагониста ПГF2α – снижало концентрацию простагландина и блокировало овуляцию (Espey et al., 1986).
2.3. Факторы, определяющие полноценность фолликулогенеза и результативность осеменения. Отрицательный энергетический баланс.
В современном молочном скотоводстве селекция более двух десятилетий проводится в направлении повышения продуктивности. Это значительно влияет на физиологический статус молочных коров, особенно в послеотельный период, когда резко возрастающий синтез молока не обеспечивается энергией поедаемого корма. В результате этого в организме возникает состояние так называемого отрицательного энергетического баланса. Недостаток энергии в ранний послеотёльный период вызывает характерные метаболические и гормональные изменения, которые угнетают рост фолликулов и приводят к задержке овуляции. (Butler W.R., 2005).
Степень негативного влияния отрицательного энергетического баланса связана со степенью потери упитанности и массы тела коровами в первые 30 дней лактации. В исследованиях Batler’а показано, что чем сильнее был выражен отрицательный энергетический баланс в начале лактации, тем больше коровы теряли упитанность и тем больше у них был интервал от отёла до первой овуляции. При этом у коров, которые за первый месяц лактации снижали упитанность менее чем на 0,5 балла, первая овуляция проходила до 28 дней после отёла. У коров, терявших от 0,5 до 1 балла упитанности, первая овуляция проходила лишь к 40-му дню, а у терявших более 1 балла упитанности – лишь к 45-му дню (Butler W.R., 2003) (таблица 2).
Влияние уровня потери упитанности в новотельный период на показатели репродук-
тивной функции молочных коров
| Уровень по- | Дней от | Дней от | Дней от | % |
|---|---|---|---|---|
| тери упитанности | отела до первой | отела до первой | отела до перво- | стельных по- |
| (по 5-ти бальной | овуляции | полноценной | го осеменения | сле первого |
| системе) | охоты | осеменения | ||
| менее 0,5 | 27 | 48 | 68 | 65% |
| 0,5-1,0 | 31 | 41 | 67 | 53% |
| более1,0 | 42 | 62 | 79 | 17% |
Отрицательный энергетический баланс приводит к мобилизации жировых депо и поступлению в кровь неэстерифицированных жирных кислот. Печень не справляется с возникающей высокой нагрузкой: глюконеогенез, окисление жирных кислот, производство инсулино-подобного фактора роста (IGF-1) (Batler W.R., 2005).
Чем выше концентрация неэстерифицированных жирных кислот и альфа-гидроксибутирата в крови сухостойных коров, а также чем выше содержание в печени триглицеридов, тем вероятнее нарушения процесса роста и овуляции фолликула.
Важным фактором является качество и сбалансированность рациона (Reinhardt T.A. et al., 2011). Несбалансированное или недостаточное питание коров в сухостойный и ранний послеотельный периоды приводит к тому, что в крови снижается уровень глюкозы, инсулина и инсулиноподобного фактора роста. Кроме того снижается частота пульсов ЛГ. Одновременно увеличивается уровень β-оксибутирата, не этерифицированных жирных кислот и триглицеридов (Rukkwamsuk T. et al., 1999; Roche J.F., 2006; Silvestre F.T. et al., 2011). При этом, лимитирующим фактором является уровень потребления сухого вещества (Patton J. et al., 2007). Избыточное содержание белка в рационе животных при одновременном недостатке жира может привести к снижению результативности осеменения за счет снижения выработки простагландина F2α и снижения уровня пламенного прогестерона, что обуславливает увеличение уровня гибели эмбрионов на стадии бластоцисты (Stronge A.J.H. al., 2005). Избыточное питание молочных коров стимулирует метаболизм, что также приводит к снижению уровня стероидных гормонов, в частности эстрадиола-17β, что снижает продолжительность и степень проявления половой охоты (Roche J.F., 2006; Seifi H.A. et al., 2010).
Считается, что выраженность негативного проявления отрицательного энергетического баланса в меньшей степени связана с уровнем удоя, а в большей степени – с адекватной обеспеченностью организма энергией. Стратегия кормления молочных коров в последние месяцы лактации предполагает поддержание умеренной упитанности их в этот период (на уровне 3,5-3,75 баллов) с последующим существенным повышением энергетического уровня рациона в последние 3 недели перед отёлом. Для возобновления послеотёльной овуляции необходимо восстановление фолликулярной функции яичников, возобновление секреторной функции гипоталамуса и гипофиза и, соответственно, синтеза ФСГ и ЛГ (Doepel et al., 2002).
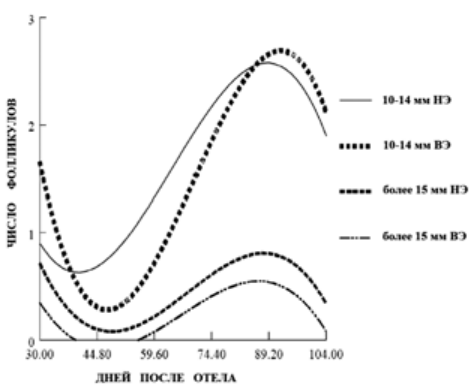
Ультразвуковое обследование яичников у коров с 30 по 104 день послеотельного периода, получавших после отела высокоэнергетический рацион и низкоэнергетичекий рацион, показало разницу в диаметре доминантного фолликула при различном уровне энергии в рационе. Как видно из данных рисунка 4, у животных с высокой обеспеченностью рациона энергией диаметр фолликулов был больше и появлялся он раньше.
Рисунок 4
Количество фолликулов диаметром 10-14 мм и более 15 мм у коров получавших высокоэнергетический (ВЭ) и низкоэнергетический (НЭ) рацион (Kendrick W., 1997)
Анализ результативности осеменений в связи с сезонами года показывает, что в летний сезон показатели воспроизведения повсеместно бывают хуже, чем в иные периоды. Исследования, проводившиеся в США (штат Джорджия - 7 стад черно-пестрой голштинской породы; штат Флорида – 5 стад той же породы), на 8124 коровах, показали, что результативность осеменения зависит не только от продуктивности животных, но и от сезона года. Отмечалось снижение показателей воспроизводства стада в летний сезон во всех группах продуктивности, что отображено на рисунке 5 (Al-Katanani Y.M., 1999).
Причиной ухудшения результативности осеменений в летнее жаркое время считают нарушения фолликулогенеза и гонадального стероидогенеза. Гипертермия нарушает механизмы созревания доминантных фолликулов и овуляции, вызывает снижение секреции прогестерона в результате нарушений функции жёлтого тела. При этом уровень оплодотворения бывает обычно высоким, но эмбриональное развитие нарушается, что приводит к ранней или поздней эмбриональной смертности (Wolfenson et al., 2000, De Rensis and Scaramuzzi, 2003).
Негативное влияние гипертермии на результаты воспроизведения тем более выражено, чем более выражен у коров уровень продуктивности. В исследованиях Аль-Катанани показано, что у коров с продуктивностью от 5 до 9 тыс. кг в летние месяцы (июнь, июль, август) процент стельности от первого осеменения составлял от 15 до 20% против 50-60% в зимнее и осеннее время. А уже у коров с продуктивностью выше 9 тыс. кг в эти летние месяцы уровень стельности опускался до 5-10% против 50-60% в осенний и зимний сезон (Al-Katanani Y.M., 1999).
Негативное влияние гипертермии на воспроизведение молочных коров проявляется и в странах умеренного климата. Доказано, что критический уровень температуры, после которого появляются признаки гипертермии, составляет всего 25-27 градусов (Hansen P.J., 1997).
В аномально жаркое лето 2010 года в Центральной полосе России, в частности в Подмосковье, показатели воспроизведения у коров были крайне низкими. При этом было
