
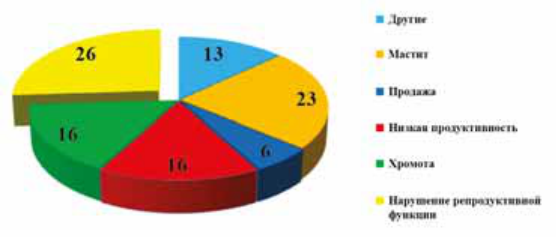
патологии составляет 25-27% и мало зависит от продуктивности стада (Суллер И.Л., Игнашкина А.А., 2006). Аналогичную информацию предоставило и министерство сельского хозяйства США (2001), после анализа причин выбытия животных из стада (см. рисунок 1):
2. ФИЗИОЛОГИЯ РЕПРОДУКТИВНОЙ ФУНКЦИИ
2.1. Динамика роста фолликулов и механизмы его регуляции
Репродуктивная функция, как самок, так и самцов млекопитающих, регулируется сложным взаимодействием нервной и эндокринной систем. При этом значительную роль играют и факторы внешней среды (освещение, температура, иерархические отношения в стаде и т.д.), действие которых на органы репродуктивной системы происходит опосредовано через нервную систему, воспринимающую внешние раздражители.
Механизм нейрогуморальной регуляции воспроизводительной функции самки очень сложен. Рассмотрим его более подробно. Систему нейрогуморальной регуляции репродуктивных процессов схематично можно представить четырьмя уровнями: ЦНС (гипоталамус), гипофиз, яичники и матка.
Главным центром регуляции полового цикла у животных является гипоталамус. Он является своеобразным «посредником» между нервной и эндокринной системами. Гипоталамус представляет собой подбугровую область промежуточного мозга, располагается под зрительными буграми и образует стенки и дно третьего мозгового желудочка. Гипоталамус связан с передней долей гипофиза (аденогипофизом) через специальную воротную систему кровеносных сосудов, а с задней долей (нейрогипофизом) - по нервным путям. В ответ на экзогенные и эндогенные импульсы, нервные клетки определенных ядер гипоталамуса вырабатывают специфические нейросекреты, которые поступают в кровяное русло и по воротной сосудистой межуточно-гипофизарной системе доставляются к клеткам аденогипофиза, стимулируя их к выработке тропных гормонов, посредством которых оказывается влияние на функцию яичников (Войткевич А.А., 1963; Киршенблат Я.Д., 1971, 1973). Одновременно гипоталамус получает сигналы внутренней среды (главным образом в виде изменений концентраций гормонов и других биологически активных веществ в крови).
Одним из наиболее известных и значимых секретов гипоталамуса является гонадотропный релизинг-гормон (Гн-РГ, люлиберин). Он представляет собой полипептид, состоящий из десяти аминокислотных остатков, что обуславливает короткую продолжительность его существования.
Введение корове Гн-РГ приводит к выделению как лютеинизирующего гормона (ЛГ), так и фолликулостимулирующего гормона (ФСГ). Пульсирующее выделение Гн-РГ про-
исходит непрерывно, в количестве достаточном для поддержания развития фолликулов и секреции ими эстрогенов. Эпизодическое выделение Гн-РГ обеспечивает циклическое выделение гонадотропинов и овуляцию. В соответствии с этим, секреция гонадотропинов также имеет, как пульсирующий характер, независимый от времени суток и физиологического состояния организма, так и циклический (появление пиков секреции ЛГ и ФСГ перед овуляцией).
Получение Гн-РГ синтетическим путем позволило ученым изучить его влияние на выделение гонадотропных гормонов у самок сельскохозяйственных животных. Исследования показали, что применение малых доз синтетического Гн-РГ вызывает быстрое увеличение содержания ЛГ в крови, с максимумом через 10 минут. Более высокие дозы дают большее по величине выделение ЛГ с более поздним наступлением максимума – через 2040 минут. Менее выраженное увеличение уровней ФСГ в крови наблюдали значительно позднее, чем уровней ЛГ, с максимумом через 40 – 60 минут (Савченко О.Н., Степанов Г. С.,1977).
В структурах ЦНС выделены соединения – опиоидные пептиды. Основным местом сосредоточения опиоидных пептидов мозга является гипоталамус. Изучена физиологическая роль нейропептидов головного мозга (мет- и лей-энкефалинов) в нейрогуморальной регуляции функции воспроизведения крупного рогатого скота. При нагрузках в гипоталамусе и гипофизе усиленно синтезируются молекулы проопиомеланокортина, из которых образуется АКТГ, β-липотропин и крупный гликопротеид. В результате расщепления β-липотропина образуются эндорфины, которые оказывают влияние на болеощущение и воспроизводительную функцию. При повышенном действии эндорфинов к концу проэструса может быть заторможено предовуляторное увеличение содержания ФСГ и ЛГ и, тем самым, созревание фолликулов.
Опиат-налтрексон стимулирует секрецию ЛГ в период поздней фолликулярной и лютеальной фазы, когда концентрация циклирующих стероидов высока. Он эпизодически вызывает повышение концентрации ЛГ.
Установлено, что эндогенные опиоидные пептиды препятствуют выделению ЛГ in vivo и гонадолиберина in vitro у ярок (Stansfi eld S.C., Knight P.G., Bryant M.J., 1987).
В нашей стране исследования с этой группой соединений стали возможны благодаря синтезу мет- и лей-энкефалинов в ВКНЦ АМН РФ профессором Титовым М.И. Им был синтезирован препарат №41 (даларгин).
Физиологическую роль эндорфинов и энкефалинов в воспроизводстве пока еще недостаточно изучили. Но предварительные исследования по изучению нейроэндокринного эффекта опиоидных пептидов в регуляции воспроизводительной функции открывают широкие возможности применения этих веществ в ветеринарной эндокринологии.
Вторым уровнем регуляции репродуктивной функции является гипофиз. Гипофиз состоит из двух основных отделов – передней доли, или аденогипофиза, и задней доли, или нейрогипофиза.
Передняя доля гипофиза секретирует гонадотропные гормоны - ЛГ и ФСГ, представляющие собой гликопротеины. Функция яичника полностью зависит от секреции гонадотропных гормонов, а его реакция на ЛГ и ФСГ зависит от наличия специфических рецепторов на поверхности различных типов его клеток.
ФСГ может рассматриваться как инициатор овариальной активности, т.к. он способствует росту и дифференцировке овариальных фолликулов до антральной стадии, а так же стимулирует митотическую пролиферацию гранулезных клеток и трансформацию окружающей стромы в слой текальных клеток яичника, секрецию фолликулярных гормонов и пролиферативные изменения в матке и влагалище. Если вводить экзогенный ФСГ коровам
в больших дозах, когда рост фолликулов уже начался, это может привести к множественному росту фолликулов и суперовуляции. Однако под влиянием одного ФСГ фолликулы не достигают стадии полного роста и секреторной активности, а только подготавливаются к последующему воздействию ЛГ.
Во время полового цикла концентрация ФСГ периодически возрастает с интервалом в 5 дней, пики приходятся на волны роста фолликулов во время лютеальной фазы цикла (Schamps D. et al., 1977).
Функция ЛГ - стимулировать развитие и овуляцию антрального фолликула, а также образование и поддержание функциональной активности желтого тела. Средние уровни концентрации ЛГ низки почти на всем протяжении эстрального цикла с резким подъемом перед эструсом, совпадающим с первым пиком ФСГ. Предовуляторное повышение концентрации ЛГ стимулирует процесс овуляции, начало лютеолизации гранулезных клеток и клеток теки фолликула. Оно продолжается примерно 7 – 8 часов и овуляция наступает примерно через 24-32 часа после его начала.
Концентрация ЛГ в сыворотке крови КРС в течение полового цикла колеблется в пределах 1,5-2,5 нг/мл. Во время половой охоты концентрация гормона повышается до 20-60 нг/мл. Начало накопления ЛГ обычно отмечается через 25 часов после первых признаков охоты, затем концентрация гормонов в крови резко увеличивается и достигает максимума в течение 4-х часов, после чего концентрация ЛГ резко падает, снижаясь до исходного уровня в течение 8 часов.
Под влиянием ЛГ внутри фолликула возрастает синтез простагландинов, что приводит к сокращению стенки фолликула и выбросу содержимого овулировавшего фолликула.
Хотя пульсы ЛГ наблюдаются редко во время лютеальной фазы, их величина и количество достаточны для поддержания функции желтого тела яичника. Поэтому ЛГ можно рассматривать главным, если не единственным, лютеотропным гормоном у нестельных коров (Hansel W. et al., 1973; Hoff man B. et al.,1974).
Во время предовуляторного пика ЛГ связывается с рецепторами клеток гранулезы и вызывает быструю их лютеинизацию, приводя к синтезу прогестерона. Соединение ЛГ с рецепторами сохраняется весь период функционирования желтого тела (Koch J. et al., 1974). Однако более поздние данные показывают, что ФСГ также важен в регуляции выделения прогестерона в лютеальную фазу полового цикла (Walters D. L. et al., 1984).
ФСГ и ЛГ в норме вырабатывается одним и тем же типом клеток гипофиза, но соотношение между ними варьируется в зависимости от физиологической ситуации. Накоплено множество фактов, доказывающих синергизм взаимодействия между ФСГ и ЛГ, который проявляется усилением действия одного гормона другим. Этот принцип широко используется для искусственной стимуляции половых желез.
ФСГ вместе с эстрадиолом стимулируют развитие ЛГ-рецепторов на гранулезных клетках созревающего фолликула. Таким образом, развитие фолликула зависит от тщательно скоординированной последовательности эндокринных стимулов, которая обеспечивает зрелость гранулезных клеток и клеток теки, а также ооцита к моменту наступления овуляции.
Выделение гонадотропных гормонов гипофизом находится в прямой зависимости от функционального состояния яичников и уровня секреции ими половых стероидов. Взаимоотношения гормонов гипофиза и яичников в регуляции полового цикла протекают по принципу “плюс-минус” взаимодействия (Завадовский М. М., 1939). Если гормон одной железы стимулирует другую, то гормон последней угнетает гормонообразование в первой. По принципу обратной связи избыток эстрогенов ингибирует, а недостаток стимулирует секрецию и выделение гонадотропинов.
