
Влияние уровня потери упитанности в новотельный период на показатели репродук-
тивной функции молочных коров
| Уровень по- | Дней от | Дней от | Дней от | % |
|---|---|---|---|---|
| тери упитанности | отела до первой | отела до первой | отела до перво- | стельных по- |
| (по 5-ти бальной | овуляции | полноценной | го осеменения | сле первого |
| системе) | охоты | осеменения | ||
| менее 0,5 | 27 | 48 | 68 | 65% |
| 0,5-1,0 | 31 | 41 | 67 | 53% |
| более1,0 | 42 | 62 | 79 | 17% |
Отрицательный энергетический баланс приводит к мобилизации жировых депо и поступлению в кровь неэстерифицированных жирных кислот. Печень не справляется с возникающей высокой нагрузкой: глюконеогенез, окисление жирных кислот, производство инсулино-подобного фактора роста (IGF-1) (Batler W.R., 2005).
Чем выше концентрация неэстерифицированных жирных кислот и альфа-гидроксибутирата в крови сухостойных коров, а также чем выше содержание в печени триглицеридов, тем вероятнее нарушения процесса роста и овуляции фолликула.
Важным фактором является качество и сбалансированность рациона (Reinhardt T.A. et al., 2011). Несбалансированное или недостаточное питание коров в сухостойный и ранний послеотельный периоды приводит к тому, что в крови снижается уровень глюкозы, инсулина и инсулиноподобного фактора роста. Кроме того снижается частота пульсов ЛГ. Одновременно увеличивается уровень β-оксибутирата, не этерифицированных жирных кислот и триглицеридов (Rukkwamsuk T. et al., 1999; Roche J.F., 2006; Silvestre F.T. et al., 2011). При этом, лимитирующим фактором является уровень потребления сухого вещества (Patton J. et al., 2007). Избыточное содержание белка в рационе животных при одновременном недостатке жира может привести к снижению результативности осеменения за счет снижения выработки простагландина F2α и снижения уровня пламенного прогестерона, что обуславливает увеличение уровня гибели эмбрионов на стадии бластоцисты (Stronge A.J.H. al., 2005). Избыточное питание молочных коров стимулирует метаболизм, что также приводит к снижению уровня стероидных гормонов, в частности эстрадиола-17β, что снижает продолжительность и степень проявления половой охоты (Roche J.F., 2006; Seifi H.A. et al., 2010).
Считается, что выраженность негативного проявления отрицательного энергетического баланса в меньшей степени связана с уровнем удоя, а в большей степени – с адекватной обеспеченностью организма энергией. Стратегия кормления молочных коров в последние месяцы лактации предполагает поддержание умеренной упитанности их в этот период (на уровне 3,5-3,75 баллов) с последующим существенным повышением энергетического уровня рациона в последние 3 недели перед отёлом. Для возобновления послеотёльной овуляции необходимо восстановление фолликулярной функции яичников, возобновление секреторной функции гипоталамуса и гипофиза и, соответственно, синтеза ФСГ и ЛГ (Doepel et al., 2002).
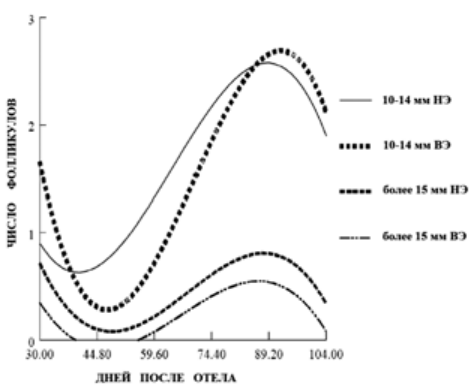
Ультразвуковое обследование яичников у коров с 30 по 104 день послеотельного периода, получавших после отела высокоэнергетический рацион и низкоэнергетичекий рацион, показало разницу в диаметре доминантного фолликула при различном уровне энергии в рационе. Как видно из данных рисунка 4, у животных с высокой обеспеченностью рациона энергией диаметр фолликулов был больше и появлялся он раньше.
Рисунок 4
Количество фолликулов диаметром 10-14 мм и более 15 мм у коров получавших высокоэнергетический (ВЭ) и низкоэнергетический (НЭ) рацион (Kendrick W., 1997)
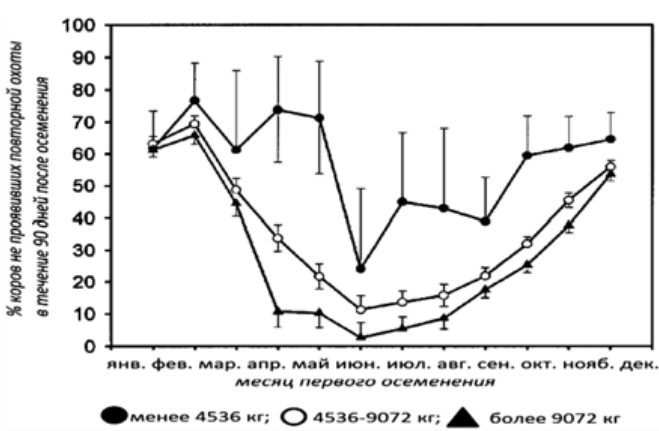
Анализ результативности осеменений в связи с сезонами года показывает, что в летний сезон показатели воспроизведения повсеместно бывают хуже, чем в иные периоды. Исследования, проводившиеся в США (штат Джорджия - 7 стад черно-пестрой голштинской породы; штат Флорида – 5 стад той же породы), на 8124 коровах, показали, что результативность осеменения зависит не только от продуктивности животных, но и от сезона года. Отмечалось снижение показателей воспроизводства стада в летний сезон во всех группах продуктивности, что отображено на рисунке 5 (Al-Katanani Y.M., 1999).
Причиной ухудшения результативности осеменений в летнее жаркое время считают нарушения фолликулогенеза и гонадального стероидогенеза. Гипертермия нарушает механизмы созревания доминантных фолликулов и овуляции, вызывает снижение секреции прогестерона в результате нарушений функции жёлтого тела. При этом уровень оплодотворения бывает обычно высоким, но эмбриональное развитие нарушается, что приводит к ранней или поздней эмбриональной смертности (Wolfenson et al., 2000, De Rensis and Scaramuzzi, 2003).
Негативное влияние гипертермии на результаты воспроизведения тем более выражено, чем более выражен у коров уровень продуктивности. В исследованиях Аль-Катанани показано, что у коров с продуктивностью от 5 до 9 тыс. кг в летние месяцы (июнь, июль, август) процент стельности от первого осеменения составлял от 15 до 20% против 50-60% в зимнее и осеннее время. А уже у коров с продуктивностью выше 9 тыс. кг в эти летние месяцы уровень стельности опускался до 5-10% против 50-60% в осенний и зимний сезон (Al-Katanani Y.M., 1999).
Негативное влияние гипертермии на воспроизведение молочных коров проявляется и в странах умеренного климата. Доказано, что критический уровень температуры, после которого появляются признаки гипертермии, составляет всего 25-27 градусов (Hansen P.J., 1997).
В аномально жаркое лето 2010 года в Центральной полосе России, в частности в Подмосковье, показатели воспроизведения у коров были крайне низкими. При этом было
выяснено, что они зависели от времени нахождения коров под воздействием жары. Хуже были результаты там, где коров круглый день (кроме доения) держали на пастбище: всего 10% стельности от первого осеменения. Там же, где днём коров держали в тени проветриваемых помещений, а пастьбу проводили в ночное время, результаты были гораздо лучше – 36-40%.
Анализ результативности осеменений в жаркое время года, проведённый в штате Техас, показал, что она зависит от времени осеменения: лучшие результаты получены, когда коров осеменяли сразу после выявления охоты. При осеменении спустя 12 часов после выявления охоты результат получили хуже (Brodway J.L. et al., 1975).
Негативное действие гипертермии может продолжаться и после окончания жаркого сезона. Поскольку процесс развития фолликулов от малых антральных до зрелых доминантных занимает значительный срок - от 40 до 50 дней (Roth Z. et al., 2001).
Влияние продуктивности на фолликулогенез и результативность осеменения широко освещено в литературе. При этом в первую очередь это отражается на продолжительности половой охоты. С ростом продуктивности она снижается, что отражено на рисунке 6.
Основной причиной выше приведенного факта является снижение качества фолликулогенеза в результате недостатка энергии в послеотельный период (Butler W.R., 2003; Yusuf M. et al., 2010), что в свою очередь приводит к снижению выработки инсулиноподобного фактора роста, регулирующего в том числе фолликулогенез (Llewellyn S. et al., 2007). Накопление неэтерифицированных жирных кислот и кетоновых тел в фолликулярной жидкости подавляет развитие клеток гранулезы фолликула и яйцеклетки, что также снижает эффективность оплодотворения (Leroy J.L. et al., 2005; Vanholder T. et al., 2005; Silvestre F.T. et al., 2011). Кроме того, снижение качества яйцеклетки может быть обусловлено ее старением при задержке овуляции, одной из причин которой является повышенный уровень прогестерона в период половой охоты, что препятствует выделению ЛГ (Bage R. et al., 2003).
