
прогестагенным действием.
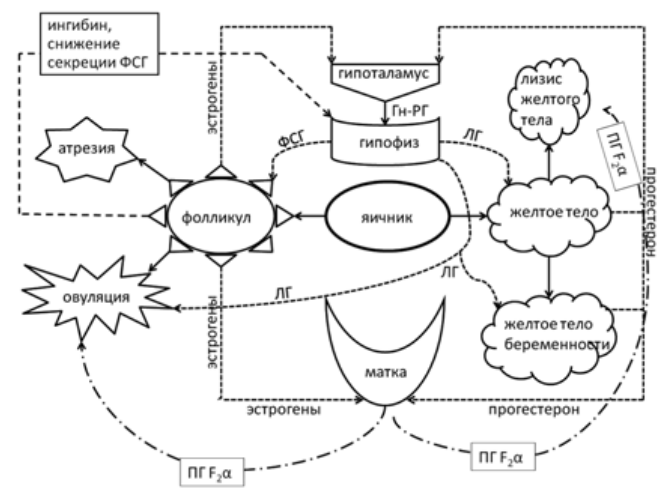
Если считать яичник центральным звеном нейроэндокринной регуляции репродуктивной функции, то весь механизм регуляции репродуктивной функции можно представить в виде следующей схемы (рисунок 2):
При морфологическом и гистологическом анализе яичников коров и тёлок, вне зависимости от их физиологического состояния, обнаруживается присутствие в них большого числа фолликулов разнообразных по размерам. Среди всего разнообразия фолликулов выделяют два пула: нерастущие и растущие. К числу нерастущих фолликулов относят примордиальные фолликулы, а среди растущих выделяют первичные, вторичные и третичные фолликулы. Запас примордиальных фолликулов в яичниках формируется в эмбриональный период. С ним самки рождаются, но рост их до определённого возраста заторможен.
Точный механизм, инициирующий рост фолликулов, до конца не изучен. Среди факторов, которые могут вызывать начало роста фолликулов, называют два фактора: лейкемия-ингибирующий фактор (LIF) и bFGF -главный фактор роста фибробластов (Nilsson E. et al., 2001, Nilsson E. et al., 2002). Влияние этих факторов определяется тем, что они способствуют изменениям степени выраженности матричной РНК (мРНК) на рецепторах клеток теки и гранулёзы к гонадотропинам (ФСГ и ЛГ), к основным стероидогенным ферментам (стероидогенный регуляторный протеин (StAR) и инсулинподобным факторам роста (IGF1 (для клеток гранулёзы) и IGF2 (для клеток теки)) (Beg M.A. et al., 2002).
При классификации фолликулов по размерам выделяют 4 класса. К первому классу относят фолликулы размером 3-5 мм в диаметре. Такие фолликулы не способны к овуляции, клетки гранулёзы в них не обладают рецепторами к лютеинизирующему гормону, но из их числа происходит отбор фолликулов, способных к последующему росту и превра-
щению в доминантные.
Ко второму классу относят фолликулы диаметром 6-9 мм. При резком угнетении функции жёлтых тел (например, при экзогенном введении препаратов простагландина F2α), фолликулы такого размера способны к овуляции, так как клетки их гранулёзы уже имеют рецепторы к ЛГ.
К третьему классу относят фолликулы диаметром 10-15 мм. Это – доминантные фолликулы, на клетках их гранулёзы достаточная плотность рецепторов к ЛГ, они обладают способностью к овуляции.
В четвертый класс выделяют фолликулы диаметром более 15 мм. Это – зрелые фолликулы, готовые к овуляции (Ireland J.J., Roche J.F., 1982, Lucy M.C. et al., 1991).
В 1960 году Radjakoski E., а затем и другие исследователи доказали, что на протяжении полового цикла в яичниках коров и тёлок происходит две (Burke C.R. et al., 2000), а чаще три волны роста фолликулов (Ahmad N. et al., 1997). А в некоторых исследованиях доказано, что в продолжение межовуляционного интервала в яичниках формируется до 4-х волн роста (Rhodes F.M. et al., 1995).
Первая волна роста фолликулов берет начало в день овуляции, вторая – на 9-й или 10-й день в двух-волновом цикле. В трех-волновом цикле вторая волна роста появляется на 8-й или 9-й день, а третья – на 16-й или 17-й день. Продолжительность двух-волнового цикла составляет 20 дней, а 3-х волнового – 23 дня. Численность животных с двумя и тремя волнами роста фолликулов примерно Рисунок 3 одинакова, результативность осемене- Примеры развития доминантных фол- ния не зависит от числа волн. У живот- ликулов на протяжении нормального полового ных при недостаточной энергетической цикла с двумя (а) и тремя (b) волнами роста обеспеченности рациона чаще встреча- фолликулов ются трёх-волновые циклы, а при достаточной обеспеченности энергией – двухволновые (Murphy M.G., et al., 1991).
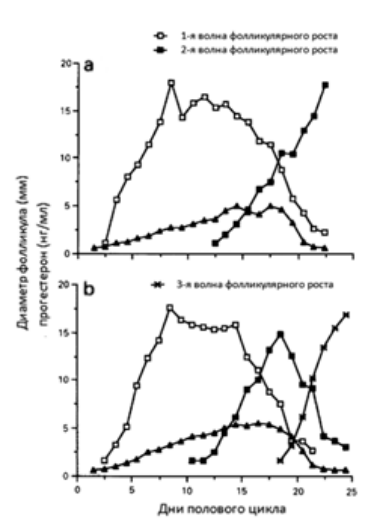
Появлению волн роста фолликулов предшествует внезапное увеличение размеров десятка мелких (3-4 мм) фолликулов, которые в течение 2-х дней растут с одинаковой скоростью, а затем скорость одного из них возрастает, он становится доминирующим, а остальные отстают в росте, подвергаясь регрессии, атрезии (Adams G.P., 1999). Доминантный, предовуляционный фолликул формируется на второй, а чаще всего на третьей волне. Это наглядно видно из схемы, представленной в статье Савио и соавторов ( Savio J.D. et al., 1990):
Каков механизм отбора одного из большого пула фолликулов, которому предназначен дальнейший рост и превращение в доминирующий, до сих пор не совсем ясно. Известно только, что этот процесс стимулирует и ускоряет фолликулостимулирующий гормон, концент-
рация которого в крови возрастает после овуляции.
Исследование динамики роста фолликулов с помощью УЗИ показало, что уже на 3-4й день цикла в яичнике выявляются фолликулы среднего размера (6-9 мм). Доминантный фолликул первой волны роста остаётся активным до средины цикла. На пике этой активности снова выделялся один из фолликулов и начинал расти, подавляя рост остальных. Полагают, что подавление роста второстепенных фолликулов происходит под действием протеинов фолликулярной жидкости. Если ослабить функцию желтого тела с 5-го по 8-й день цикла (например введением простагландина F2α), то можно добиться того, что сможет овулировать доминантный фолликул первой волны роста (Kastelic J.P. et al., 1990).
Выяснено, что рост доминантных фолликулов первой волны обусловлен возрастанием активности ароматазы и увеличением концентрации эстрадиола в фолликулярной жидкости. Это особенно выражено на 5-й день цикла. К 8-му дню ароматазная активность доминирующего фолликула первой волны остаётся ещё высокой, а концентрация эстрадиола резко снижается. К 12-му дню снижается и концентрация ароматазы. Полагают, что это происходит из-за пониженной концентрации андрогенов, как субстрата для ароматизации и для синтеза эстрогенов. Это может быть причиной начала атрезии доминантного фолликула 1-й волны. В течение всего периода роста доминантного фолликула первой волны концентрация прогестерона в фолликулярной жидкости остаётся невысокой. В этом плане второстепенные фолликулы первой волны отличаются от доминантных тем, что в них, наряду с низкой ароматазной активностью и незначительной концентрацией эстрадиола, к 8-му, а затем к 12-му дню цикла резко возрастает концентрация прогестерона. Это накопление прогестерона во второстепенных фолликулах первой волны роста служит причиной их атрезии (Badinga et al., 1991).
Однако в большинстве случаев доминантный фолликул первой волны подвергается атрезии, а зарождение новой волны роста фолликулов происходит под воздействием активности следующего доминантного фолликула (Ginther et al., 1989).
Доминантный фолликул второй волны также может овулировать, если происходит спонтанная регрессия жёлтого тела. Но если активность жёлтого тела не будет спонтанно или искусственно снижена, то и доминантный фолликул второй волны подвергнется атрезии и начнётся третья волна роста фолликулов. Поддержание роста и доминирования фолликула, а также продолжительность его существования зависят от частоты пульсации ЛГ. Если частота пульсации ЛГ невысокая, доминантный фолликул, даже в лютеальную фазу цикла, останавливается в развитии и начинается новая волна роста фолликулов (Tailor and Radjamahendran., 1991, Bergfelt et al., 1991).
Рост фолликулов контролируется комбинацией 2-х гормонов ФСГ и ЛГ и зависит от концентрации соответствующих рецепторов на структурах фолликулов. ФСГ инициирует рост фолликулов, а ЛГ – обеспечивает окончательное созревание доминантного предовуляционного фолликула. Успешность овуляции зависит как от возобновления базового уровня ЛГ, так и от возобновления пульсирующего характера его выделения (Mihm M. et al., 2002).
Возникновение волн роста фолликулов связывают с ростом или падением концентрации ФСГ в крови. Появлению волны роста предшествует рост концентрации ФСГ, а секреция растущих фолликулов, особенно доминантных, по принципу обратной связи подавляет выделение ФСГ и способствует появлению новой волны (Adams G.P., 1999).
После появления волны роста в доминантном фолликуле концентрация эстардиола возрастает в 20 раз. Введение экзогенного эстрадиола в лютеальную фазу цикла вызывает регрессию доминантного фолликула, скорее всего из-за подавления секреции ЛГ и ФСГ. Это вызывает появление новой волны роста.
