
в больших дозах, когда рост фолликулов уже начался, это может привести к множественному росту фолликулов и суперовуляции. Однако под влиянием одного ФСГ фолликулы не достигают стадии полного роста и секреторной активности, а только подготавливаются к последующему воздействию ЛГ.
Во время полового цикла концентрация ФСГ периодически возрастает с интервалом в 5 дней, пики приходятся на волны роста фолликулов во время лютеальной фазы цикла (Schamps D. et al., 1977).
Функция ЛГ - стимулировать развитие и овуляцию антрального фолликула, а также образование и поддержание функциональной активности желтого тела. Средние уровни концентрации ЛГ низки почти на всем протяжении эстрального цикла с резким подъемом перед эструсом, совпадающим с первым пиком ФСГ. Предовуляторное повышение концентрации ЛГ стимулирует процесс овуляции, начало лютеолизации гранулезных клеток и клеток теки фолликула. Оно продолжается примерно 7 – 8 часов и овуляция наступает примерно через 24-32 часа после его начала.
Концентрация ЛГ в сыворотке крови КРС в течение полового цикла колеблется в пределах 1,5-2,5 нг/мл. Во время половой охоты концентрация гормона повышается до 20-60 нг/мл. Начало накопления ЛГ обычно отмечается через 25 часов после первых признаков охоты, затем концентрация гормонов в крови резко увеличивается и достигает максимума в течение 4-х часов, после чего концентрация ЛГ резко падает, снижаясь до исходного уровня в течение 8 часов.
Под влиянием ЛГ внутри фолликула возрастает синтез простагландинов, что приводит к сокращению стенки фолликула и выбросу содержимого овулировавшего фолликула.
Хотя пульсы ЛГ наблюдаются редко во время лютеальной фазы, их величина и количество достаточны для поддержания функции желтого тела яичника. Поэтому ЛГ можно рассматривать главным, если не единственным, лютеотропным гормоном у нестельных коров (Hansel W. et al., 1973; Hoff man B. et al.,1974).
Во время предовуляторного пика ЛГ связывается с рецепторами клеток гранулезы и вызывает быструю их лютеинизацию, приводя к синтезу прогестерона. Соединение ЛГ с рецепторами сохраняется весь период функционирования желтого тела (Koch J. et al., 1974). Однако более поздние данные показывают, что ФСГ также важен в регуляции выделения прогестерона в лютеальную фазу полового цикла (Walters D. L. et al., 1984).
ФСГ и ЛГ в норме вырабатывается одним и тем же типом клеток гипофиза, но соотношение между ними варьируется в зависимости от физиологической ситуации. Накоплено множество фактов, доказывающих синергизм взаимодействия между ФСГ и ЛГ, который проявляется усилением действия одного гормона другим. Этот принцип широко используется для искусственной стимуляции половых желез.
ФСГ вместе с эстрадиолом стимулируют развитие ЛГ-рецепторов на гранулезных клетках созревающего фолликула. Таким образом, развитие фолликула зависит от тщательно скоординированной последовательности эндокринных стимулов, которая обеспечивает зрелость гранулезных клеток и клеток теки, а также ооцита к моменту наступления овуляции.
Выделение гонадотропных гормонов гипофизом находится в прямой зависимости от функционального состояния яичников и уровня секреции ими половых стероидов. Взаимоотношения гормонов гипофиза и яичников в регуляции полового цикла протекают по принципу “плюс-минус” взаимодействия (Завадовский М. М., 1939). Если гормон одной железы стимулирует другую, то гормон последней угнетает гормонообразование в первой. По принципу обратной связи избыток эстрогенов ингибирует, а недостаток стимулирует секрецию и выделение гонадотропинов.
Яичники являются третьим уровнем нейро-эндокринной регуляции репродуктивной функции. В яичниках находятся эндокринные железы: фолликулы, вырабатывающие эстрогенные гормоны (эстрадиол, эстрон, эстриол), и желтые тела, вырабатывающие прогестерон. Данные гормоны относятся к классу стероидов.
Физиологическое значение эстрогенов заключается в воздействии, главным образом, на матку и влагалище, делая их способными к половому акту и подготавливая почву для оплодотворения. Эстрогены вместе с прогестероном воздействуют на организм в двух направлениях:
- действуют на ЦНС (гипоталамус), вызывая изменения в половом поведении живот-
ных;
- действуют на периферическую нервную систему (развитие вторичных половых признаков, увеличение размера матки в период течки, разрастание маточного эпителия, усиление сокращения матки), облегчая продвижение спермиев к яйцеводу.
Как и прогестерон, эстрогены принимают участие в процессах имплантации, стимулируют рост эпителия альвеолярных ходов молочной железы. Эстрадиол стимулирует обмен веществ в клетке, увеличивая синтез РНК и изменяя свойства мембран эпителия матки.
Высокие концентрации эстрадиола в течение фолликулярной фазы полового цикла индуцируют увеличение секреции гонадотропинов через положительную обратную связь. Этот механизм влияет на увеличение частоты пульсов секреции Гн-РГ и на повышение чувствительности передней доли гипофиза к воздействию Гн-РГ, что приводит к выделению ЛГ и ФСГ (Kesner J.S. et al, 1981). С другой стороны, низкие концентрации эстрадиола - 17 β, секретируемого развивающимися фолликулами во время лютеальной фазы, действуют вместе с прогестероном для создания отрицательной обратной связи на секрецию ЛГ.
Большая часть прогестерона (80%) секретируется в крупных клетках желтого тела, которые занимают приблизительно 40% его объема. Помимо желтого тела, прогестерон синтезируется в плаценте и коре надпочечников. Его концентрация начинает увеличиваться с 4-го дня полового цикла, достигая своего пика на 8-12 день, сохраняясь на этом уровне до 17-го дня и резко снижаясь до базального уровня перед следующим эструсом и овуляцией в случае отсутствия беременности.
Концентрация прогестерона в плазме крови прямо связана с активностью желтого тела, она является точным показателем состояния овариальной функции и используется для диагностики стельности, эстральных циклов и послеотельной овариальной активности.
Прогестерон создает условия для имплантации бластоцисты и дальнейшего развития зародыша. Воздействуя на гипоталамус, он оказывает ингибирующее влияние на выделение ЛГ из гипофиза, не влияя на секрецию ФСГ. Сенсибилизируя половые центры нервной системы, прогестерон увеличивает их чувствительность к эстрогенам. Кроме того, он оказывает общее действие на организм, влияя на белковый, минеральный и водный обмены.
Благодаря обратному тормозящему действию гормона желтого тела (прогестерона) становится возможным регулирование циклической секреции гонадотропинов. Введение прогестерона в организм или секреция его желтым телом подавляет циклическую секрецию гипофизарных гонадотропинов, необходимых для овуляции. Однако овулирующие количества гонадотропинов выделяются немедленно, как только прекращается поступление прогестерона в организм, что приводит к предовуляторному росту фолликулов и овуляции. Основываясь на этом, были подготовлены теоретические предпосылки для разработки гормональных методов регуляции половой функции путем изменения продолжительности лютеальной стадии полового цикла с помощью применения стероидов с
прогестагенным действием.
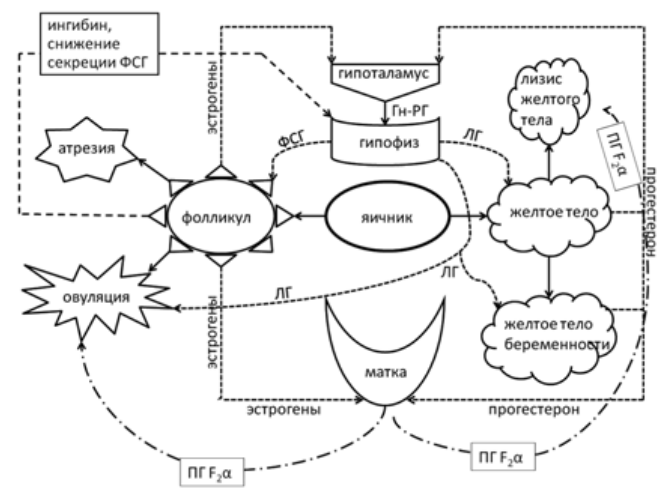
Если считать яичник центральным звеном нейроэндокринной регуляции репродуктивной функции, то весь механизм регуляции репродуктивной функции можно представить в виде следующей схемы (рисунок 2):
При морфологическом и гистологическом анализе яичников коров и тёлок, вне зависимости от их физиологического состояния, обнаруживается присутствие в них большого числа фолликулов разнообразных по размерам. Среди всего разнообразия фолликулов выделяют два пула: нерастущие и растущие. К числу нерастущих фолликулов относят примордиальные фолликулы, а среди растущих выделяют первичные, вторичные и третичные фолликулы. Запас примордиальных фолликулов в яичниках формируется в эмбриональный период. С ним самки рождаются, но рост их до определённого возраста заторможен.
Точный механизм, инициирующий рост фолликулов, до конца не изучен. Среди факторов, которые могут вызывать начало роста фолликулов, называют два фактора: лейкемия-ингибирующий фактор (LIF) и bFGF -главный фактор роста фибробластов (Nilsson E. et al., 2001, Nilsson E. et al., 2002). Влияние этих факторов определяется тем, что они способствуют изменениям степени выраженности матричной РНК (мРНК) на рецепторах клеток теки и гранулёзы к гонадотропинам (ФСГ и ЛГ), к основным стероидогенным ферментам (стероидогенный регуляторный протеин (StAR) и инсулинподобным факторам роста (IGF1 (для клеток гранулёзы) и IGF2 (для клеток теки)) (Beg M.A. et al., 2002).
При классификации фолликулов по размерам выделяют 4 класса. К первому классу относят фолликулы размером 3-5 мм в диаметре. Такие фолликулы не способны к овуляции, клетки гранулёзы в них не обладают рецепторами к лютеинизирующему гормону, но из их числа происходит отбор фолликулов, способных к последующему росту и превра-
