
третьей группой разница меньше. По доле сохранности молочной продуктивности матерей различия между всеми тремя группами высоко достоверны (Р≥0,999).
Таблица 6.1.4
Распределение первотелок австрийской селекции по сохранности продуктивности матерей
| Сохранность молочной продуктивности, кг | |||
|---|---|---|---|
| Показатели | 1 группа (>70%) | 2 группа (51-60%) | 3 группа (< 50%) |
| n | 5 | 13 | 9 |
| М ± m, кг | 4966,0±219,9 | 3848,6±193,5 | 3500,8±196,6 |
| σ, кг | 491,7 | 697,7 | 589,7 |
| Сv, % | 9,9 | 18,1 | 16,8 |
| Р 1 - 2 | ≥0,99 | ||
| Р 2 - 3 | <0,95 | ||
| Сохранность молочной продуктивности, доли | |||
| М ± m | 0,824±0,052 | 0,556±0,008 | 0,456±0,013 |
| σ | 0,12 | 0,03 | 0,04 |
| Сv, % | 14,6 | 5,4 | 8,8 |
| Р 1 - 2 | ≥0,999 | ||
| Р 2 - 3 | ≥0,999 | ||
В результате дисперсионного анализа установлено: факториальная дисперсия СХ = 0,443; случайная дисперсия Сz = 0,077; общая дисперсия Сy = 0,520; факториальная варианса x 2 = 0,222 и случайная варианса z 2 = 0,003.
На основании полученных данных установлена сила влияния адаптивных систем организма на сохранность молочной продуктивности в новых экологических условиях, равная 0,852 ± 0,012. Высокая достоверность показателя Р≥0,999 позволяет считать, что установленное влияние свойственно и другим аналогичным выборкам генеральной совокупности.
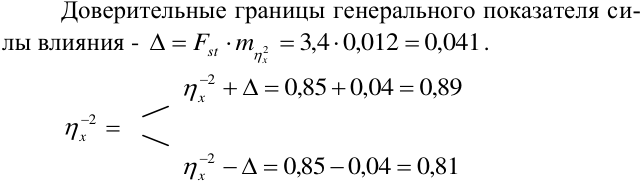
Доверительные границы генерального показателя си-
лы влияния - Fst m 2 4,3 ,0012 ,0041 .
x
2
x ,085 ,004 ,089
2
x
x 2 ,085 ,004 ,081
Таким образом, в условиях изученной экологической ситуации влияние адаптивных систем (резистентности) организма на величину молочной продуктивности составляет не менее 81 % и не более 89 %. Указанные параметры могут быть использованы для прогноза результатов использования импортного скота.
6.2. Адаптация и мясная продуктивность крупного рогатого скота
В опытах по выращиванию чистопородного бестужевского и помесного молодняка, полученного в результате промышленного скрещивания с абердин-ангусской и кианской породами, было установлено, что комолые абердин-бестужевские помеси, уступая чистопородным сверстникам по высотным промерам, имели более продолжительный период приема корма, они редко меняли место кормления у кормушек, больше лежали как в стойле, так и на выгульной площадке, редко вступали в конфликт с партнерами по стаду, отличались спокойным даже безразличным поведением внутри группы. Все это приводило к сокращению непродуктивного расхода энергии на поведенческую деятельность, что позволило им иметь преимущества в интенсивности роста, среднесуточный прирост у помеси был на 12% выше по сравнению с чистопородными.
Киано-бестужевские помеси, превосходя чистопородных сверстников по высоте в холке на 6 см и по обхвату груди на 12 см наоборот занимали лидирующее положение в стаде они были в два раза агрессивнее бестужевских больше одержали побед и имели меньше поражений
В возрасте 15 мес. продолжительность пищевых реакций у них составили 607 мин за сутки, у чистопородных сверстников 450 мин. Различие в основном обусловлено более продолжительным жвачным периодам у помесного молодняка в среднем на 101 мин, таблица 6.2.1.
Индекс доминирования помесных животных составил 0,27, что более чем в два раза выше, чем у бестужевских сверстников.
Таблица. 6.2.1
Поведение и адаптация помесного и чистопородного
молодняка
| Показатели | Ед. изм. | Порода отца | |||||
|---|---|---|---|---|---|---|---|
| кианская | абердин- ангусская | ||||||
| помеси | ч/п | ± | помеси | ч/п | ± | ||
| Продолжительность пищевых реакций за сутки | мин | 607 | 450 | +157 | - | - | - |
| Индекс доминиро- вания | - | 0,27 | 0,11 | +0,16 | - | - | - |
| Индекс подчинен- ности | - | 0,36 | 0,38 | -0,02 | - | - | - |
| Убойная масса | кг | 267 | 231 | +36 | 223 | 182 | +41 |
| Масса мышц | кг | 183 | 144 | +39 | 130 | 114 | +16 |
| Масса жира | кг | 63 | 48 | +15 | 59 | 31 | +28 |
| Затраты корма, всего | корм. ед. | 3199 | 3174 | +25 | 2361 | 2372 | - |
| На 1 кг, мясо+жир | корм. ед. | 11,6 | 14,7 | -3,1 | 9,6 | 15,5 | -5,9 |
| В т.ч. на мясо | % | 34 | 35 | -1 | 30 | 70 | -40 |
| В т.ч. на жир | % | 66 | 65 | +1 | 39 | 61 | -22 |
| Коэффициент адап- | - | 4,1 | 3,0 | +1,1 | 1,8 | 1,0 | +0,8 |
