
BREAST
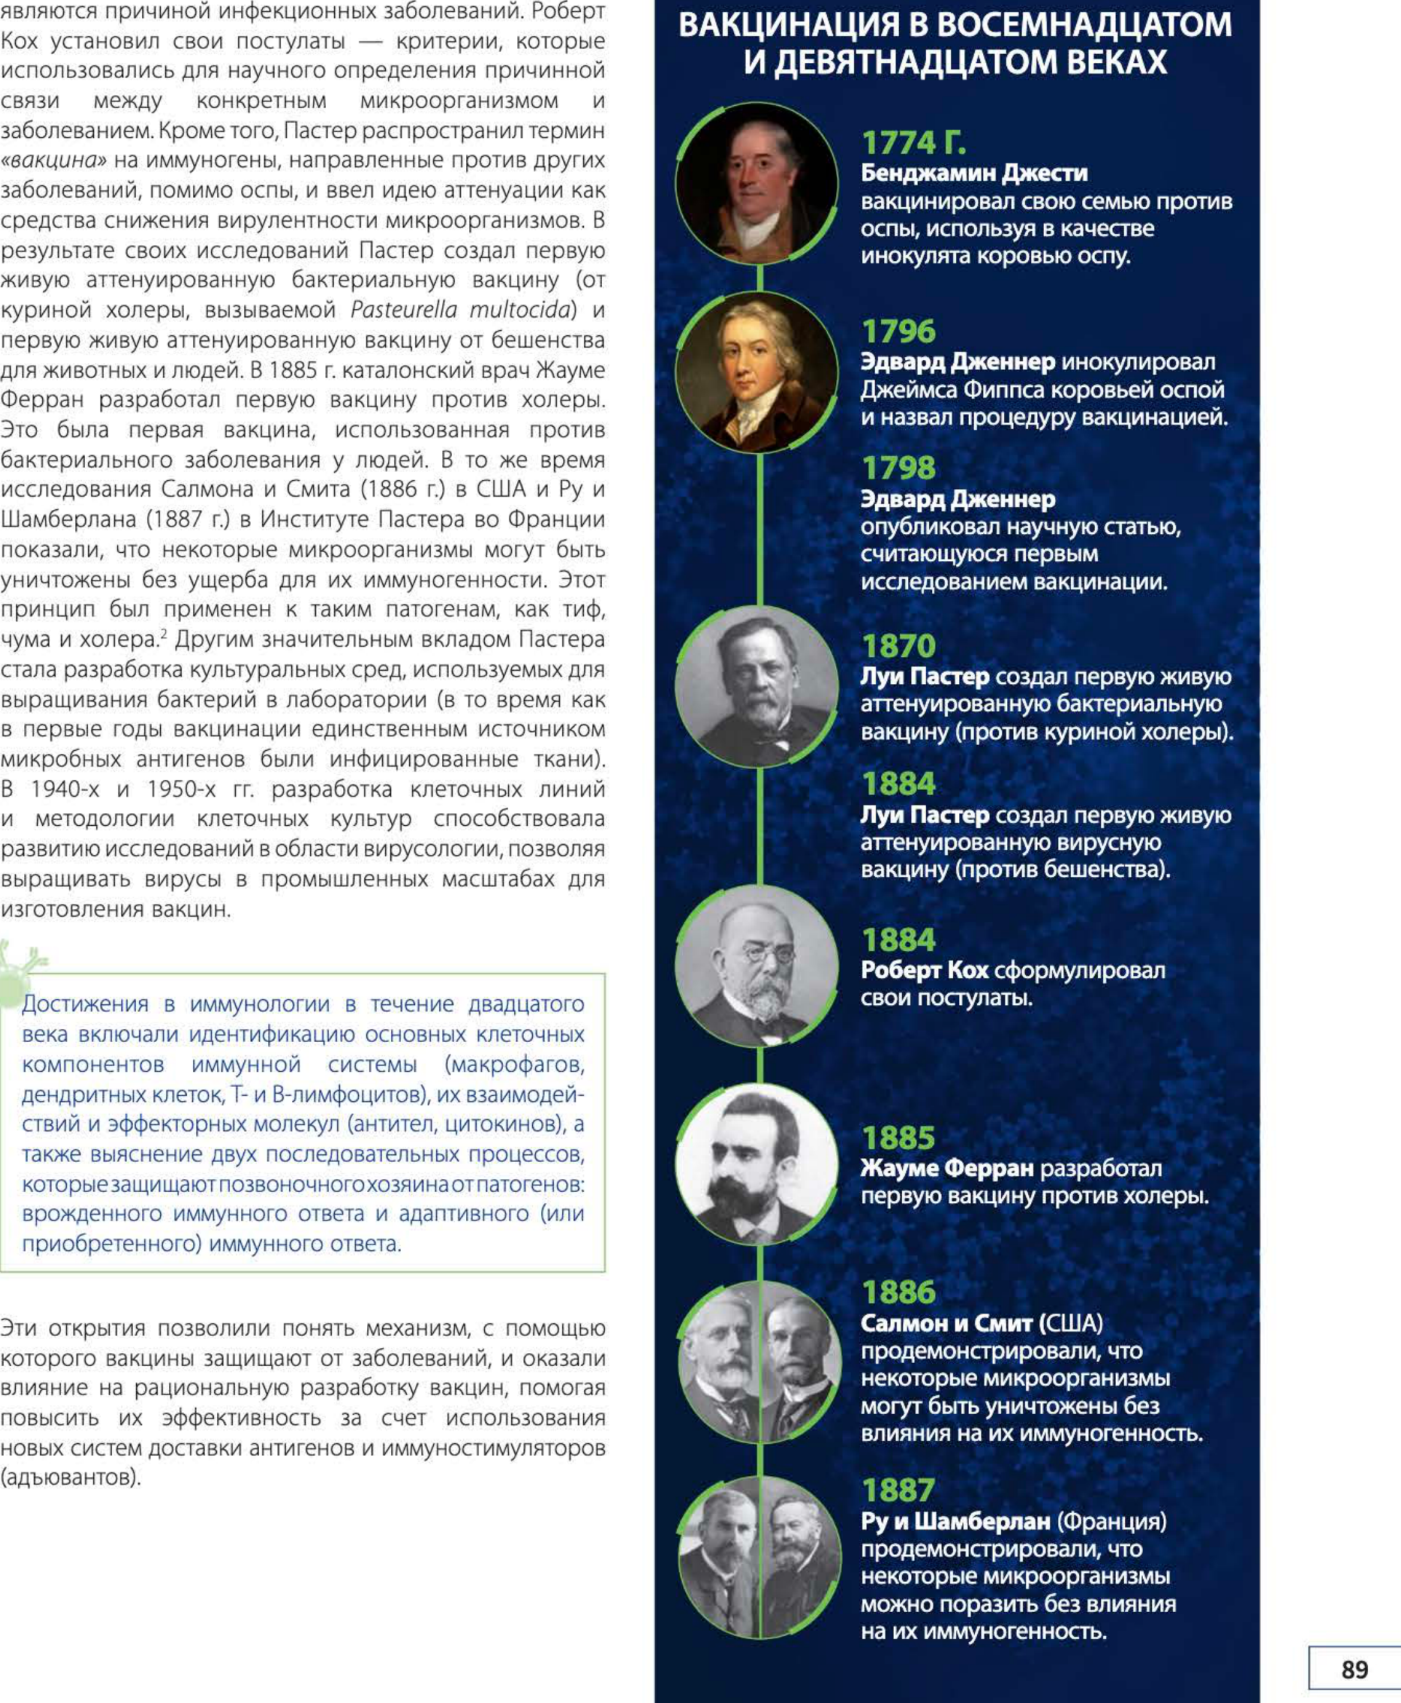
являютсяКох НИпричинойсвоиинфекционныхnei — заболеваний.критерии, ВЫРоберт ВАКЦИНАЦИЯ В ВОСЕМНАДЦАТОМ
использовались для научного определения причинной И ДЕВЯТНАДЦАТОМ ВЕКАХ
связи между конкретным микроорганизмом и >
заболеванием. Кроме того, Пастер распространил термин / 177 г
М ИИ / * aeaon pen
заболеваний, помимо оспы, и ввел идею аттенуации как
| вакцинировал свою семью против
средстварезультатеснижениясвоих исследованийвирулентностиПастермикроорганизмов.создал первуюВ of`_ „// оспы, инокулята используякоровьюв качествеocny.
живую аттенуированную бактериальную вакцину (от |
куриной холеры, вызываемой Pasteurella multocida) и и < РН
дляпервую животных живуюи аттенуированную людей. В 1885 г. каталонскийвакцину от бешенстваврач Жауме / рmy ° | Эдвард1/36 Дженнер инокулировал.
Ферран разработал первую вакцину против холеры. я / Джеймса Фиппса коровьей оспой
Это была первая вакцина, использованная против < и ицевопронедурявакцинациеи,
бактериального заболевания у людей. В то же время | 1798
исследования Салмона и Смита (1886 г.) в США и Руи | Эдвард Дженнер
Шамберлана (1887 г.) в Институте Пастера во Франции опубликовал научную статью,
показали, что некоторые микроорганизмы могут быть | считающуюся первым
уничтожены без ущерба для их иммуногенности. Этот исследованием вакцинации.
принцип был применен к таким патогенам, как тиф, ре =
чума и холера-? Другим значительным вкладом Пастера y ™ 1370
стала разработка культуральных сред, используемых для j к Луи Пастер создал первую живую
выращивания бактерий в лаборатории (в то время как | ee аттенуированную бактериальную
в первые годы вакцинации единственным источником \ И вакцину (против куриной холеры).
микробных антигенов были инфицированные ткани). 9. Рф.
В 1940-х и 1950-х гг. разработка клеточных линий | 1884
и методологии клеточных культур способствовала Луи Пастер создал первую живую
развитию исследованийв области вирусологии, позволяя | аттенуированную вирусную
выращивать вирусы в промышленных масштабах для вакцину (против бешенства).
изготовления вакцин. yo г .,
у > 1884
q 7 Роберт Кох сформулировал
Достижения в иммунологии в течение двадцатого С свои постулаты.
века включали идентификацию основных клеточных =”
компонентов иммунной системы (макрофагов, |
дендритныхствий и эффекторных клеток, T- молекул и В-лимфоцитов),(антител, ихциток вза и нов),модей-а A da 1885
также выяснение двух последовательных процессов, ж. © 6
которыезащищаютпозвоночногохозяинаотпатогенов: 4 ми и oe
врожденного иммунного ответа и адаптивного (или od У
приобретенного) иммунного ответа. Е”
| 2%
Эти открытия позволили понять механизм, с помощью 4a S |№. Салмон1886 и Смит (США)
которого вакцины защищают от заболеваний, и оказали < продемонстрировали, что
влияние на рациональную разработку вакцин, помогая в №: 7 и ee ee
повысить их эффективность за счет использования SA iA SF aN, Ceuta co
новых систем доставки антигенов и иммуностимуляторов в У :
(адъювантов). ре 1827
y |= 2 Shea ape
fa З а panne ie ae ab
г. / некоторые микроорганизмы
} (| (У можно поразить без влияния
A Ha их иммуногенность. [8|
ИНСТРУМЕНТА. ВАКЦИНЫ © ИСПОЛЬЗОВАНИЕ ОСНОВНОГОИММУНОЛОГИЧЕСКОГО
Возникшая во второй половине двадцатого века новая наука — генная инженерия — также внесла важный вклад в развитие вакцинологии, в том числе:
-
в в продукцию рекомбинантных белков gna использования в качестве вакцинных антигенов с использованием таких субстратов, как бактерии, дрожжи и животные клетки, в виде мономерных растворимых белков или собранных ввирусоподобные частицы (ВПЧ).
-
ш в аттенуацию вирулентности вирусов или бактерий путем делеции генов, кодирующих факторы вирулентности.
-
и в создание маркерных вакцин, позволяющих отличать вакцинированных животных от инфицированных, путем делециии генов, кодирующих иммуногенные белки (также известных как ОМА-вакцины: дифференциация инфицированныхфицир и вакцинированныхцинир животных).)
-
ш ДНК-вакцины содержат нереплицирующуюся молекулу
-
ДНК, кодирующую антигенный белок. Это уменьшает побочные эффекты от факторов вирулентности, связанных с цельным организмом (пораженным или модифицированным живым).
-
и развитие обратной вакцинологии как способ выявления потенциальных иммуногенных белков для вакцины путем биоинформатического анализа всего генома патогена.
В последнее время использование протеомных и транскриптомных методов помогает выявить гены патогена, активируемые т vivo, что позволяет кодировать хорошие антигены для использования в вакцине.
МЕХАНИЗМ - ДЕИСТВИЯ ВАКЦИН Вакцинация использует оба звена иммунной системы для ChOPMMPOBaHMA
иммунной памяти о патогене
Цель вакцинации — имитировать способность естественной инфекции индуцировать иммунологическую память OT последующихв организме контактовхозяина, стем которая же микроорганизмом. обеспечивает защиту Для достижения этой цели интактного хозяина инокулируют либо непатогенным штаммом микроорганизма (живым аттенуированным или пораженным), либо фракциями патогена, которые сохраняют его исходные иммуногенные свойства, но позволяют избежать неблагоприятного воздействия инфекции. Иммуногенный компонент вакцины известен как антиген (генератор антител) — термин, введенный Паулем Эрлихом в начале двадцатого века для обозначения активных веществ, взаимодействующих со специфическими рецепторами в крови (антителами). Подобно иммунному ответу на естественную инфекцию (см. главу 1), вакцины должны активировать два компонента иммунной системы — врожденный и адаптивный иммунный ответ, которые pane рацииae по с пл е цифичдоват е льноскойдлЯ идентификациииммунологической патогеняпамяти.
:
у :
@ рем =
= 9
ты :.
Е :
.
» xs
7g
: +
№ о
РА
th
'
в.
a Пауль Эрлих ввел термин «антиген».
МЕХАНИЗМ ДЕИСТВИЯ ВАКЦИН .
ВРОЖДЕННЫЙ ИММУННЫИ ОТВЕТ НА ВАКЦИНАЦИЮ
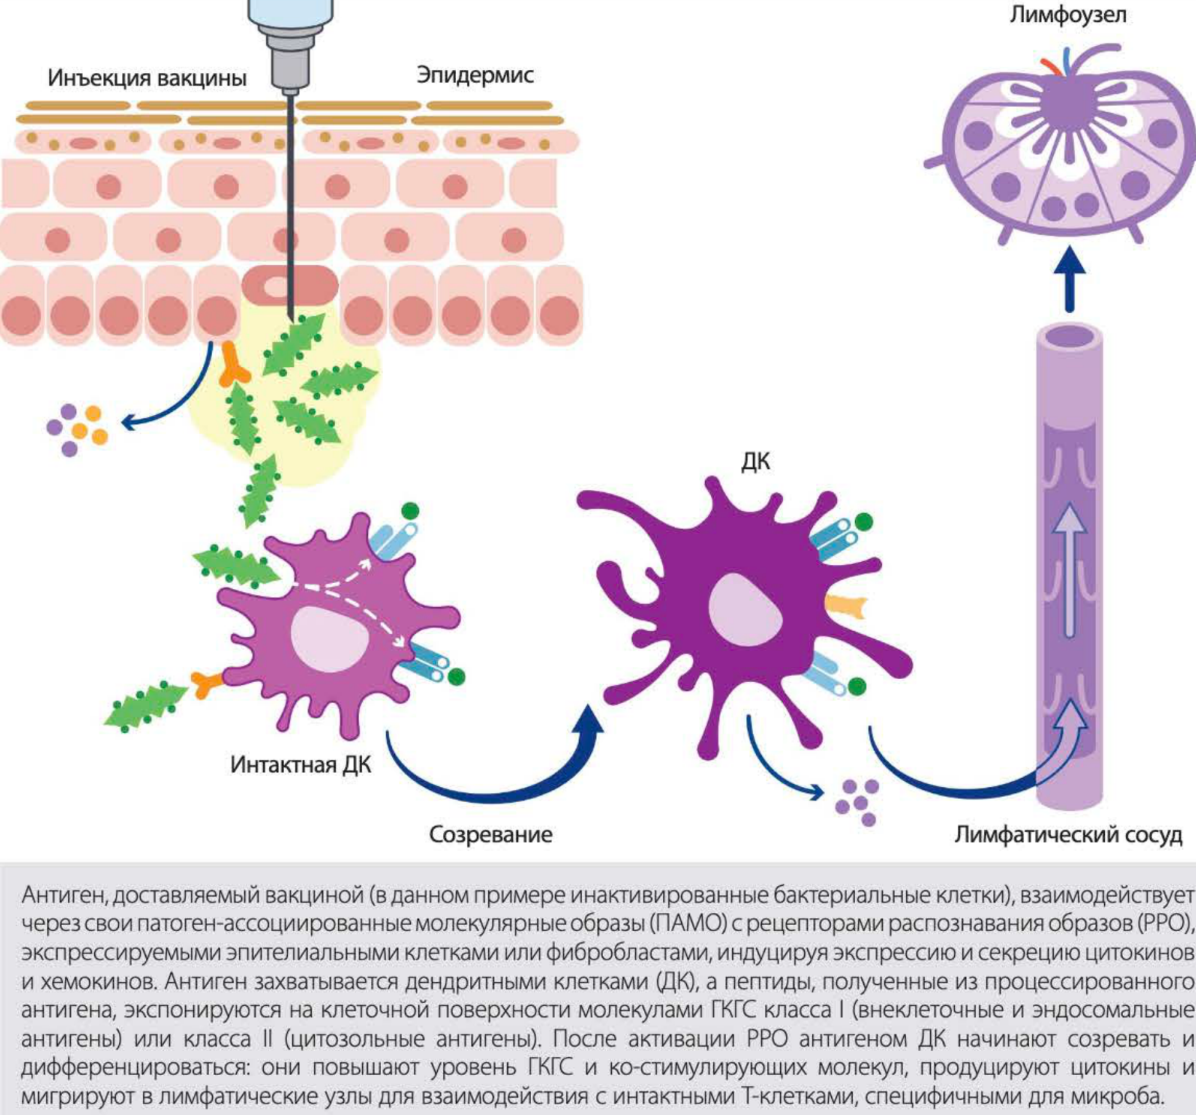
Врожденный иммунный ответ быстро инициируется в месте введения вакцины (внутримышечно, подкожно, внутрикожно), развиваясь в течение нескольких часов (рисунок 1). Активация врожденной иммунной системы вакциной необходима для последующего развития адаптивного иммунного ответа. Инокулированный антиген распознается локальными тканевыми клетками (эпителиальными клетками или фибробластами) и резидентными иммунными клетками тканей (такими как макрофаги и незрелые дендритные клетки)
путем взаимодействия — патоген-ассоциированных молекулярных образов (ПАМО), характерных для антигена, со специфическими рецепторами распознавания образов (РРО), такими как толл-подобные рецепторы (ТПР), которые являются компонентами этих клеток (рисунок 1). Это взаимодействие приводит к клеточной активации с секрецией растворимых сигналов, таких как хемокины, которые действуют как хемоаттрактанты для рекрутмента клеток врожденного иммунитета (моноцитов, нейтрофилов), и цитокины (такие как фактор некроза опухоли и интерфероны), которые
Лимфоузел
Инъекцияция вакцинывакц Эпидермисы —_— <>
TE: —= Щи
Seo@me® ot a@ sl “o@e © * So [®›7 SO
a @ ry @
ТТХ. ТТТ. t
Ss a Se
oe + AK |
® e
© he
ae
|
Интактная ДК A
а 2!
e -
sacle ittila
Антиген, доставляемый вакциной (в данном примере инактивированные бактериальные клетки), взаимодействует
через свои патоген-ассоциированные молекулярные образы (ПАМО) срецепторами распознавания образов (PPO),
экспрессируемыми эпителиальными клетками или фибробластами, индуцируя экспрессию
и секрецию цитокинов
и хемокинов. Антиген захватывается дендритными клетками (ДК), а пептиды, полученные из процессированного
антигена, экспонируются на клеточной поверхности молекулами ГКГС класса | (внеклеточные и эндосомальные
антигены) или класса |! (цитозольные антигены). После активации PPO антигеном ДК начинают созревать и
дифференцироваться: они повышают уровень ГКГС и ко-стимулирующих молекул, продуцируют цитокины и
мигрируют в лимфатические узлы для взаимодействияс интактными Т-клетками, специфичными для микроба.
a РИСУНОК 1. Обзор врожденного иммунного ответа после вакцинации.
