
КРОВООБРАЩЕНИЕ МАТЕРИ
f Е
: у
«
»
ПЛАЦЕНТА Простагландин E2 N;
прогестерон "
Ека, ИЛ-4, ИО. |
SA VQ | \
#7 > = ce Vas)
$7 a \©
| } /2 WN we ‘ : КОЛОСТРУМ
© А —» DN Serporen | ил, ИЛ-6
4 9 VAGU laze) solace |] ФНО-а, ИФН-у
oO= >} 1 ТФР-В, ИЛ-4, ‘
MEF | KR > < ) Y иИЛ-10
2—5,7 AE оо 22 TENEHOK >
ь @ aN ee y S i
OM @ \ @/ © {7} = “my
ne о J ®
OS } Кортизол 1
Простагландин E2, | д AX плода 7]
прогестерон, ь XS. ‘
ИТТ `--7
|
—
к \
cy
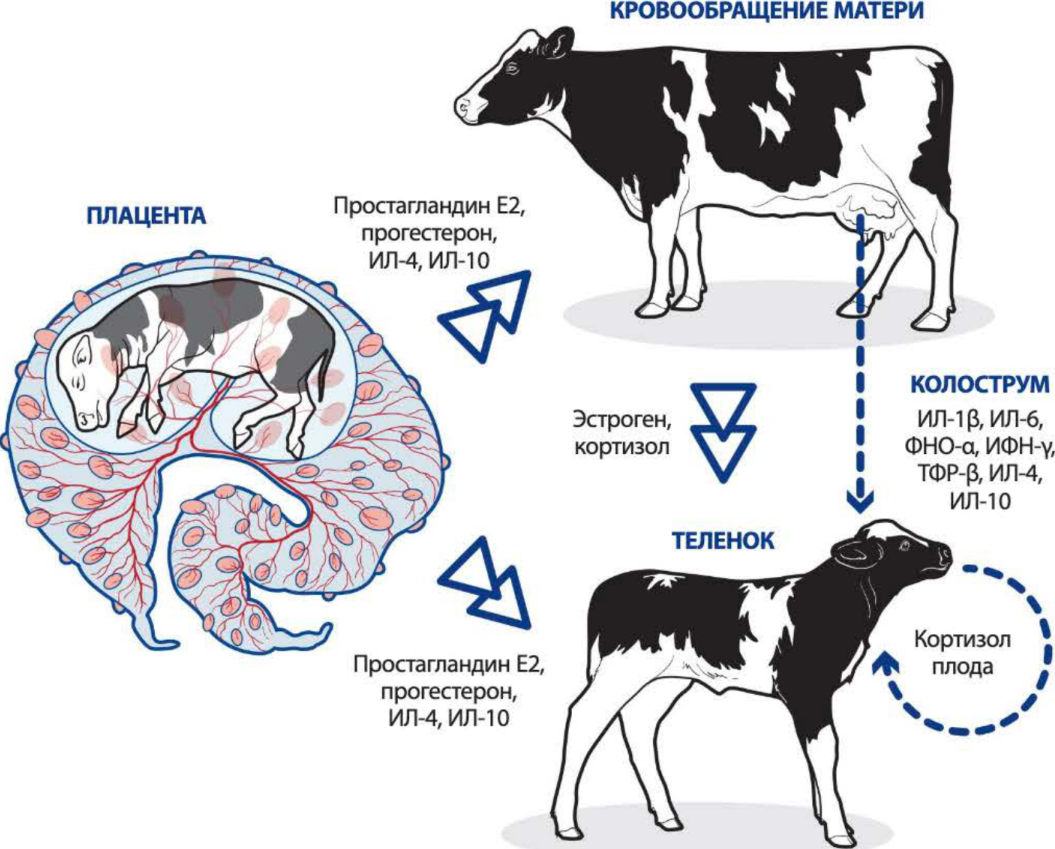
Плацентапродуцируетпрогестерон, простагландинЕ? ицитокинылакиекакинтерлейкин-4 (ИЛ-4)иинтерлейкин-10 (ИЛ-10), которые влияют как на плод, находящийся на поздних сроках развития, так и на корову, и супрессируют провоспалительные иммунные ответы и иммунное распознавание (не позволяя организму матери распознать плод как чужеродный в целях сохранения стельности). Кроме Toro, перед родами корова продуцирует эстроген и кортизол, которые также оказывают иммуносупрессивное действие. Наконец, у теленка в процессе родов продуцируется высокий уровень кортизола, который остается повышенным в течение первой недели жизни. Совокупное воздействие этих гормонов заключается в супрессии иммунного ответа и отвлечении иммунного ответа от ТВ1-ответа. Эти гормоны также стимулируют краткосрочные ТН2-иммунные ответы, в частности продукцию IgM. ИЛ-1В = интерлейкин-1 бета; ИЛ-6 = интерлейкин-6; ФНО-а = фактор некроза опухоли-альфа; ИФН-у = гамма-интерферон; ТФР-В = трансформирующий фактор роста бета. a РИСУНОК 6. Иммунный «хаос» у новорожденного теленка. По материалам Chase, Hurley и Reber“
Возраст теленка и акт отъема приводят к значительным защиты от проникновения патогенов и повышению риска изменениям микробной популяции в микробиоме из-за заболеваний. Слизистый слой истончается, а количество психологического стресса при отъеме, смешении животных секреторного IgA и антимикробных пептидов резко в новой среде и резкой смене рациона, которая происходит снижается, ослабляя барьер, что позволяет патогенам в это время. Микробиомные сдвиги приводят кмикробному = взаимодействовать со слизистой и вызывать заболевания. дисбалансу, известному как дисбиоз (см. главы 1 и 7). Дисбиоз Низкое потребление пищи и воды также способствует приводит к деплеции слизистого барьера, снижению развитию дисбиоза и послеотъемной> диареи.
ВРОЖДЕННЫЙ ИММУНИТЕТ ш количество дендритных клеток у новорожденного
У новорожденного гуморальные компоненты врожденной ниже, и их способность презентировать антиген в целях
иммунной системы присутствуют в ограниченном активации приобретенной иммунной системы также
количестве и функционируют не так хорошо, как у ограничена. Моноциты мигрируютвткани и развиваются в
взрослого (таблица 2). дендритные клетки после провоспалительной стимуляции.
m Активность комплемента при рождении составляет ш количество циркулирующих натуральных клеток-
около 50 % от активности у взрослых коров. Уровень киллеров (НК) также меньше в возрасте одной
комплемента в крови к 1-дневному возрасту быстро недели (3 % от общего количества лимфоцитов), чем у
снижается до менее 20 % от уровня взрослых коров, взрослого (рисунок 7). Доля циркулирующих НК-клеток
затем постепенно растет и к месячному возрасту увеличивается до 10 % к 6-8-недельному возрасту.
достигает примерно 50 % от уровня взрослого. Также у новорожденного снижена функция НК-клеток.
-
и Активность интерферона в эпителиальных клетках новорожденного кажется нормальной, но продукция интерферона | типа лейкоцитами снижена.
- `
-
ПРИОБРЕТЕННЫЙ ИММУНИТЕТ и Новорожденный теленок является агаммаглобулинемическим (не имеет антител) и зависит от приема колострума для получения антител.
-
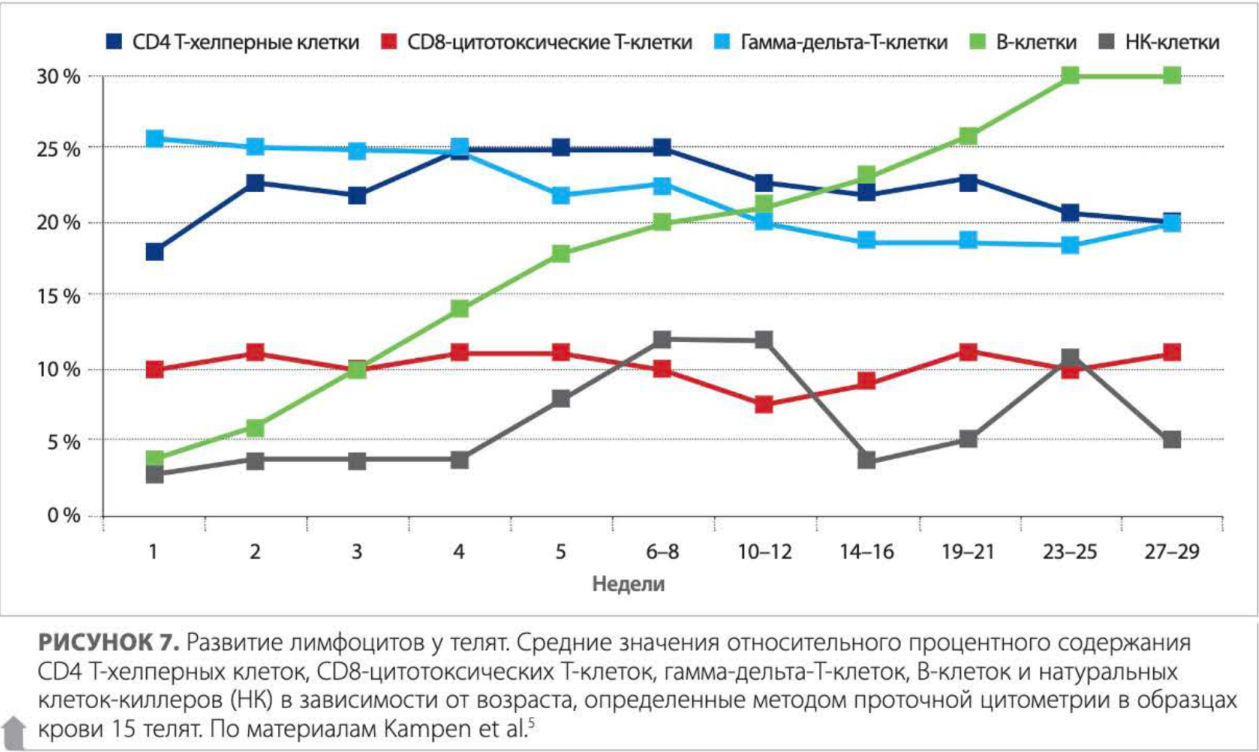
и Количество циркулирующих В-клеток у новорожденного значительно снижено, составляя лишь 4 % от общего числа лимфоцитов в возрасте одной недели по сравнению с 20-30 % у взрослых. (рисунок 7). Доля циркулирующих В-клеток постепенно увеличивается до 20 % от общего количества лимфоцитов к 6-8-недельному возрасту. Столь низкое количество В-клеток, сцепленных с эндогенными кортикостероидами телят и абсорбированными материнскими гормонами, приводит к сниженному антительному ответу. ]
-
Клеточные компоненты врожденного иммунитета также отличаются от таковых у взрослых: и количество нейтрофилов, циркулирующих в крови новорожденного теленка, примерно в четыре раза выше, чем у 3-недельных телят. Неонатальные нейтрофилы и макрофаги обладают пониженной фагоцитарной способностью, но их активность повышается после приема колострума. К 1-недельному возрасту нейтрофилы становятся функциональными и способны к эффективному ответу. Функциональность нейтрофилов постепенно достигает взрослого уровня к 5-месячному возрасту.
]
Ш С04Т-хелперные клетки № С08-цитотоксические Т-клетки № Гамма-дельта-Т-клетки № В-клетки № НК-клетки
ыы
25059 sea, aia eeiealicmiiasiie” анны
Ne =
Ce eS ee Laas
15% - .
5% a rs
0% -: : т т: : : т: : т: :
1 2 ы 4 sie Tete bed вы sfc oy
Недели |
РИСУНОК 7. Развитие лимфоцитов у телят. Средние значения относительного процентного содержания
CD4 Тхелперных клеток, СО-цитотоксических Т-клеток, гамма-дельта-Т-клеток, В-клеток и натуральных
клеток-киллеров (НК) в зависимости от возраста,5 определенные методом проточной цитометрии в образцах
a крови 15 телят. По материалам Kampen et al.
//.) ) ВНАЧАЛЕИММУННОЙ ПУТИ. СИСТЕМЫ РАЗВИТИЕ НОВОРОЖДЕННЫХ И МАКСИМИЗАЦИЯ ПОТЕНЦИАЛА
-
и Утелят, лишенных колострума, IGM начинает появляться в крови только через 4 дня после рождени дост и гаетя
-
ожидаемого функционального уровня (1 мг/мл) только в возрасте 8 дней. Уровни циркулирующих IgA, 1961 и [962 достигают заметных значений через 16-32 дня после рождения.
-
шУ новорожденного соотношение Т-клеточных субпопуляций (Т-хелперные:Т-цитотоксические), как у взрослого (рисунок 7). Альфа-бета-Т-клетки составляют 28-34 % от общего количества лимфоцитов, среди них около 20 % Т-хелперных клеток и 10 % CD8цитотоксических Т-клеток.
-
ш Гамма-дельта-Т-клетки составляют около 25 % от общего количества лимфоцитов в течение первой недели, но их число снижается примерно до 16 % к возрасту 19-21 недель. Общее количество гаммадельта-клеток в крови не меняется, но их доля в циркулирующих лимфоцитах уменьшается по мере увеличения доли В-клеток и общего количества Т-клеток (рисунок 7).
-
и Активация Т-клеток несколько депрессирована при рождении и остается постоянной в течение 28 дней после рождения.
-
Клеточно-опосредованные ответы на вакцины могут индуцироваться очень рано; однако животным может понадобиться достичь 3-4-недельного возраста, прежде чем вакцины индуцируют соответствующие антительные ответы, которые разовьются через 10-14 дней после вакцинации.
-
и МукозальныеТ-и В-клеточные ответы развиваются после рождения (рисунок 2). У жвачных интактные В-клетки развиваются в пейеровых бляшках подвздошной кишки, а затем по мере взросления животного мигрируют в лимфоидные фолликулы тощей кишки и брыжеечные лимфоузлы общей мукозальной иммунной системы.
nia) МУОЗалЬНЫИв MMM UTES, в ee eee лимфоидную ткань, связанную со слизистой. оболочкой. кишечника (GALT), в значительной степени влияют факторы окружающей среды на поверхности слизистой оболочки. Развитие GALT приводит к одному из двух различных ответов на антигены:
- активной защитной реакции по отношению к патогенам или активной толерантности к комменсальным микроорганизмам и диетическим антигенам.
Две критические контрольные точки для воздействия окружающей среды Ha GALT возникают сразу после рождения и при отъеме. Колострум важен для развития кишечника и роста и для выработки неантигенспецифического иммунитета. Колострум также важен для обеспечения наличия патогенспецифических антител. Колострум содержит высокий уровень ИЛ-4 и трансформирующего фактора роста бета (ТФР-В), который оказывает противовоспалительное действие и ускоряет переключение антител класса IgA на обычные пищевые белки, а также предотвращает экспрессию активных иммунных ответов и способствует развитию толерантности к нутриентным антигенам. Наличие комменсальной 2 микробной флоры (микробиома) имеет важное значение в развитии GALT. Второй важной контрольной точкой воздействия окружающей среды для GALT является отъем. Период отъема характеризуется сменой рациона и иногда сопровождается низким потреблением корма, низкими темпами роста и развития, диареей и повышенным риском заболеваний из-за кишечных патогенов. Масштаб и степень тяжести этого «отьемного» кризиса для GALT зависит от того, насколько сильно была развита иммунная система в предотъемный период. Управление иммунной системой для оптимальной профилактики заболеваний в возрасте раннего отъема по-прежнему будет оставаться проблематичным.

—42 |
