
поступающие из кардии, не соприкасаясь со слизистой оболочкой, продуцирующей желудочный сок. По мере наполнения желудка стенки его приспосабливаются к увеличению объема и форме расслоения.
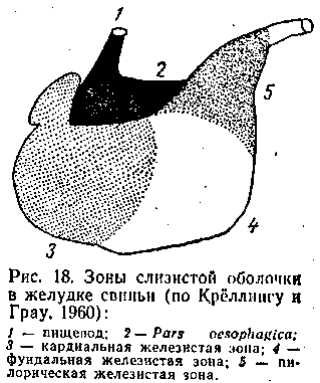
При наполненном желудке порции корма, проглоченные последними, образуют самый верхний слой непосредственно вдоль малой кривизны. В результате типичных сокращений желудка часть корма, поступившего в желудок в конце кормления, может быстро проходить через зону пилорических желез в тонкий отдел кишечника. Большая же часть расслоившегося содержимого желудка в результате усиливающейся по мере его наполнения моторики все
теснее соприкасается со слизистой оболочкой этих трех железистых зон и таким способом перемешивается с желудочным соком. Чем медленнее происходит это перемешивание отдельных слоев содержимого, тем дольше может происходить процесс расщепления углеводов под действием α-амилазы слюны околоушной железы. По мере усиления действия кислого желудочного сока переваривание углеводов затормаживается и начинается процесс расщепления белков.
С изменением консистенции корма происходит смещение расслоения в желудке, которое зависит от направления и силы давления, оказываемого порциями корма, поступающего из пищевода в желудок. Твердое содержимое желудка вытесняет кашицеобразную массу, расположенную вдоль большой кривизны, в сторону кардиальной и пилорической железистых зон и таким образом быстрее вступает в контакт с желудочным соком, секретируемым слизистой оболочкой. Несмотря на
частичное перемешивание содержимого, происходящее в результате сокращений, характерное расслоение сохраняется еще долго после приема корма в зависимости от скорости опорожнения желудка.
Наряду с физическими свойствами корма, количеством остаточного содержимого и количеством принятого корма известную роль в расслоении содержимого желудка играет давление в брюшной полости, зависящее от движений животного.
Опорожнение желудка—рефлекторный процесс, который вызывается химическим и частично механическим раздражением слизистой оболочки желудка и двенадцатиперстной кишки.
Секреция желудочного сока, столь важная для начальной стадии и дальнейшего продолжения процесса пищеварения, подчиняется сложной системе регуляции, в которой три фазы секреции дополняют, стимулируют и подавляют друг друга. На образование и выделение достаточного количества желудочного сока в практических условиях можно успешно влиять дачей оптимальных по составу кормосмесей и соблюдением научно обоснованных условий кормления и содержания.
Биохимические процессы пищеварения. Во всех железистых зонах слизистой оболочки желудка специфические клетки выделяют секреты, которые вместе образуют желудочный сок. Железы состоят из образующих ферменты главных клеток и выделяющих соляную кислоту обкладочных клеток. Муцины желудочного сока продуцируются определенными эпителиальными клетками, расположенными на поверхности слизистой оболочки, и добавочными клетками, расположенными в железистых протоках. Кроме того, желудочный сок содержит различные органические и неорганические компоненты.
Из неорганических соединений особое функциональное значение приписывается соляной кислоте. Она образуется в обкладочных клетках фундальной железистой зоны, и этот процесс сопровождается поглощением энергии. Вначале здесь возникает гидрокарбонат, который синтезируется из ионов С0 2 и
ОН при участии карбоангидратазы, постоянно присутствующей в обкладочных клетках. Во время перехода ионов НС0 3 в кровь в обкладочные клетки поступают ионы хлора, которые при выходе из желез соединяются с ионами водорода и образуют соляную кислоту. Соляная кислота, вступающая в контакт с обычными секретами слизистой оболочки и остаточным содержимым желудка, связывается большей частью муцинами, белками и другими компонентами содержимого. Свободная соляная кислота составляет в чистом желудочном соке свиней около 0,3—0,4%. Сумма свободной и связанной соляной кислоты обусловливает общую кислотность желудка, которая служит мерилом пищеварительной активности желудочного сока.
После отъема ритм изменений рН в желудке поросят приближается к ритму рН взрослых животных. При средней величине рН 1,5—2,5 отмечаются кратковременные подъемы до 3,0—4,0, появляющиеся с интервалом . около 20 минут. Только через 9 часов после последнего кормления периодические колебания рН снова ограничиваются пределами 1,5—2,0.
Непосредственно после приема корма в желудке устанавливается уровень рН, соответствующий данному корму. По мере перемешивания содержимого желудка с кислым желудочным соком рН становится равным 2,0—3,5. При кормлении жидкими кормами в перерывах между кормлениями отмечаются периодические колебания величины рН содержимого желудка, которые примерно соответствуют ритму обратного поступления содержимого двенадцатиперстной кишки в желудок. При этом значение рН временно достигает величины 6,6—7,0.
Соляная кислота желудочного сока способствует набуханию белков корма и активизирует пепсиноген главных клеток. Одновременно с этим она подавляет действие амилазы слюны и проявляет, по крайней мере временно, слабое антибактерицидное действие и, следовательно, тормозит процесс брожения и гниения.
В желудке свиней расщепление белков происходит также при рН 3,5—4,5.
