
7
6
5
4
3
0 50 100 150 200 250
MEp
MJ ME/литр
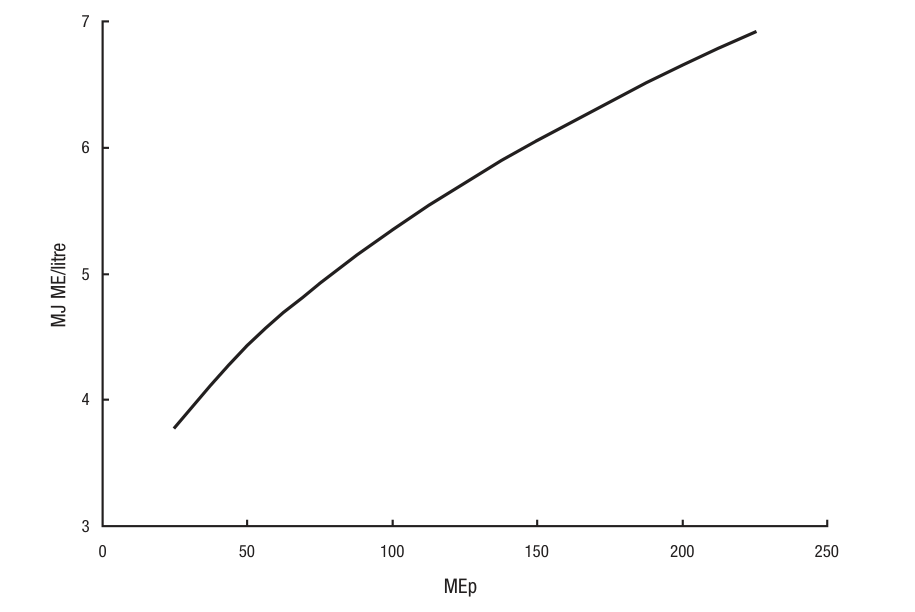
Рисунок 13. Влияние количества обменной энергии, доступной для производства молока, на потребность в энергии в расчёте на литр молока. Jones (2003).
Генетический потенциал, живая масса, оценка упитанности и потребление питательных веществ определяют потенциальную молочную продуктивность коровы. Максимальный потенциал достигается на пике лактации, когда коровы хорошо развиты, имеют оптимальную упитанность и получают рацион, обеспечивающий максимальное поступление питательных веществ в правильном соотношении.
Опыты, описанные Gordon (1984) и Jones (2003), проводились на протяжении полных лактаций, охватывали широкий диапазон уровней потребления энергии и включали большое число коров. Показанное в обоих исследованиях снижение прироста удоя на каждую дополнительную единицу потреблённой обменной энергии свидетельствует о том, что потребность в энергии на литр молока не обязательно постоянна, как предполагается в основных системах кормления (MAFF 1975; ARC 1980; INRA 1989; NRC 1989; AFRC 1993; NRC 2001).
Когда генетический потенциал молочной продуктивности превышает либо способность коровы потреблять корм, либо допустимый уровень кормления, потребность в энергии на литр молока может оставаться постоянной. Однако если потребление питательных веществ превышает генетически обусловленную способность коровы производить молоко, всё большая их доля неизбежно будет направляться в ткани организма. Это приведёт к снижению прироста удоя и увеличению потребности в энергии на литр молока.
Если зависимость удоя от количества концентратов линейна, как установили McLachlan и соавт. (1994), вероятно, генетический потенциал молочной продуктивности коров превышал уровень поступления питательных веществ, который могли обеспечить тропические пастбища.
Зависимость, представленную на рисунке 13, можно использовать для расчёта потребности в энергии на литр молока в зависимости от количества обменной энергии, доступной для производства молока, выраженного как доля от её количества, необходимого для достижения максимального удоя. Если предположить, что
форма этой зависимости сходна у коров с разным потенциалом молочной продуктивности, можно построить ряд кривых отклика удоя, как на рисунке 3.
Эти кривые позволяют точнее прогнозировать удои на основе сведений о рационе и коровах. Они также помогают составлять рационы для максимизации прибыли путём сопоставления затрат на корма с доходами от молока.
Важность переваривания клетчатки
Faverdin и соавт. (1991) рассчитали средние коэффициенты замещения пастбищного корма концентратами на основе крахмала, высококачественной и низкокачественной клетчатки: 0.69, 0.63 и 0.51 соответственно. Высказывалось предположение, что столь выраженный эффект может быть обусловлен изменениями рубцового брожения, приводящими к снижению скорости переваривания клетчатки в рубце (Milne и соавт. 1981).
По мере увеличения доли зерна в кормлении на молочных фермах всё важнее будет определять свойства зерна, позволяющие свести к минимуму его отрицательное влияние на переваривание клетчатки. Это даст возможность выбирать зерно, обеспечивающее максимальное производство молока при минимальном риске ацидоза (Stockdale и соавт. 1997). Opatpatanakit и соавт. (1994) изучали влияние зерновых на переваривание клетчатки in vitro и обнаружили, что пшеница, ячмень и кукуруза оказывают угнетающее действие, тогда как овёс и сорго усиливают переваримость нейтрально-детергентной клетчатки как райграса, так и люцерны.
(b) Состав молока
Повышение уровня концентратов также влияет на состав молока. Большое количество зернового крахмала, сбраживаемого в рубце, снижает pH рубцового содержимого и увеличивает образование пропионовой кислоты. Кроме того, возрастает образование транс--10-изомера линолевой кислоты (Griinari и соавт. 1998), который оказывает специфическое угнетающее действие на синтез жира в молочной железе.
Снижение выхода молочного жира при увеличении количества концентратов носит криволинейный характер: в трёх опытах максимальные значения наблюдались при потреблении 4–6 kg DM концентратов (Stockdale и Trigg 1985; Stockdale и соавт. 1987; Stockdale и соавт. 1990; Reeves и соавт. 1996).
Пропионат, как и аминокислоты пищевого белка, служит предшественником для синтеза глюкозы. Увеличение доступности пропионата уменьшает количество пищевого белка, превращаемого в глюкозу, благодаря чему больше аминокислот остаётся доступным для синтеза белка молока. Увеличение содержания и выхода белка молока видно из данных таблицы 29.
Нарушения пищеварения, приводящие к изменению состава молока, можно свести к минимуму
следующими способами:
-
Обеспечивать достаточное количество клетчатки в рационе.
-
Добавлять в рацион буферные вещества (см. главу 9).
-
Скармливать концентраты меньшими порциями, но чаще. Дальнейшее развитие этого подхода — кормление полнорационной кормосмесью, как на молочной ферме со стойловым содержанием.
-
Скармливать длинностебельное сено перед концентратами.
NRC (2001) рекомендует минимальное содержание клетчатки: 17–21% кислотно-детергентной клетчатки (ADF) и 25–33% нейтрально-детергентной клетчатки (NDF). Эта рекомендация относится к рационам на основе люцерны или кукурузного силоса. При выпасе на пастбищах умеренной зоны в фазе вегетативного роста клетчатка, вероятно, менее эффективно стимулирует жевание, поэтому, когда на долю кормового компонента приходится около 75% NDF, может потребоваться более высокое содержание NDF. Однако Wales и соавт. (2000b) обнаружили, что, когда коровы паслись на высококачественном пастбище умеренной зоны, а содержание NDF в рационе
содержание составляло 33%, из которых 78% приходилось на пастбищный корм, нормальная работа рубца сохранялась.
Частицы клетчатки должны быть достаточно длинными, чтобы стимулировать жвачку. Для оценки этого используют показатель физически эффективной NDF (peNDF), связанный с долей NDF, остающейся после сухого просеивания на сите с отверстиями размером 1.18 mm или более (Mertens 1997), либо с размером частиц (>0.6–0.8 cm) (Sutton 1990). Другой термин, используемый применительно к NDF, — эффективная NDF (eNDF), характеризующая способность NDF поддерживать процентное содержание жира в молоке. Разграничение peNDF и eNDF, по-видимому, не имеет особого смысла; последний термин широко распространён.
В двух опытах, в которых основные рационы содержали много клетчатки (Moate 1983; Stockdale и др. 1990), содержание жира в молоке не менялось при повышении уровня дополнительного кормления. Stockdale и др. (1987) установили, что кормление концентратами не оказывало существенного влияния на содержание жира в молоке, пока соотношение липогенных и глюкогенных летучих жирных кислот в рубце не опускалось ниже 4:1. В их опыте это соответствовало содержанию нейтрально-детергентной клетчатки 250 g/kg DM. Снижение содержания жира в молоке наблюдалось, когда концентраты составляли 40–50% рациона (Stockdale и др. 1987). Эта доля концентратов ниже той, при которой снижение содержания жира в молоке наблюдалось в опытах, проведённых в Великобритании (Sutton 1990). Это может объясняться более низким содержанием клетчатки в австралийских пастбищных кормах или меньшей способностью этой клетчатки стимулировать жевание по сравнению с консервированными кормами, используемыми за рубежом.
Выход молочного белка и его содержание в молоке в целом возрастали по мере увеличения потребления энергии (таблица 30).
Белковые добавки
(а) Производство молока
Влияние белковых добавок на производство молока изучалось лишь в немногих опытах. Можно было бы ожидать, что прирост производства молока на каждую следующую порцию белкового концентрата будет уменьшаться по мере приближения коровы к её генетическому потенциалу. Однако при использовании белковых добавок снижение предельного отклика может быть менее выраженным по следующим причинам:
- Коэффициент замещения — в целом белковые добавки расщепляются в рубце медленнее, чем зерно злаков, и вызывают меньшее снижение pH рубца. Valentine и Bartsch (1987) обнаружили, что у коров, получавших дроблёное зерно ячменя, pH рубца снижался до минимального значения 5.4. Напротив, у коров, получавших люпин или кормовые бобы, измельчённые молотковой мельницей, pH рубца оставался выше 6.0. Начиная с 3–6 часов после кормления, pH рубца у коров, получавших зерно злаков, был значительно ниже, чем у коров, получавших зернобобовые (Valentine и Bartsch 1987). Эти различия обусловлены более низким содержанием крахмала и более высоким содержанием клетчатки в зернобобовых по сравнению с зерном злаков и, возможно, более низкой скоростью расщепления крахмала в люпине . Bartsch и Valentine (1986) рассчитали содержание крахмала в люпине, горохе, бобах и ячмене: соответственно 0.7, 47.8, 37.4 и 58.9% DM.
Различия в pH рубца, вероятно, приводят к различиям в коэффициентах замещения. Paynter и Rogers (1982) рассчитали коэффициенты замещения: 0.64 для плющеного ячменя и 0.39 для хлопкового шрота. В опытах, где основу рациона составляло сено злаковых культур, Bartsch и др. (1987) обнаружили, что коэффициент замещения хлопкового шрота был ниже, чем у ячменя, в одном
