
ИНСТРУМЕНТА. ВАКЦИНЫ 5 ИСПОЛЬЗОВАНИЕ ОСНОВНОГОИММУНОЛОГИЧЕСКОГО
АДАПТИВНЫИВАКЦИНАЦИЮ ИММУННЫЙ ОТВЕТ НА
дифференцируется в эффекторные Т-клетки. дифференцируются в различные функциональныеCD4* T-KneTKU подклассы, каждый из которых имеет характерные функции и профиль секреции цитокинов, в зависимости от первичных цитокинов, секретируемых дендритной — клеткой (сигнал 3):
Адаптивный иммунный ответ запускается в локальном лимфоузле, когда зрелая дендритная клетка, загруженная с процессированным антигеном, поступает из места инъекции по лимфатическим сосудам. Ha формирование адаптивного ответа обычно требуется от 10 до 14 дней (рисунок 2).
- ш ИЛ-12 способствует дифференцировке Th1. a ИЛ-4 стимулирует дифференцировку Th2. и ИЛ-биТФР-В совместно способствуют дифференцировке Th17.
В лимфоузле зрелая дендритная клетка вступает в контакт с интактными Т-клетками, каждая из которых экспрессирует уникальныйь мембранный‘ Т-клеточный рецептор (ТКР). Для активации Т-клетки ее ТКР должен распознатьГКГС на поверхностиспецифическийдендритнойантиген, презентированныйклетки. Антигены, ассоциированные с молекулами | класса ГКГС, презентируются ТКР Т-клеточной — субпопуляции, называемой CD4* Т-клетками (также известными как Т-хелперные, [Th] клетки), в то время как антигены, отображаемые молекулами| класса ГКГС, презентируются CD8* Т-клеточной субпопуляции (которые станут цитотоксическими Т-клетками). Активация обоих Т-клеточных субпопуляций дендритными клетками зависит от трех сигналов:
Другим подклассом CD4‘i Т-клетки является фолликулярная Т-хелперная клетка (Tfh), локализованная в фолликулярной области лимфоузла, которая участвует в антиген-специфической В-клеточной активации. Для CD8 Т-клеток праймирующими цитокинами являются ИФН-а и ИЛ-12 (сигнал 3), которые способствуют дифференцировке CD8* Т-клеток в цитотоксические Т-клетки. CD8* Т-клетки опосредуют обнаружение и киллинг клеток, инфицированных внутриклеточными патогенами.3^
После активации и дифференцировки в эффекторные T- и В-клетки некоторые лимфоциты образуют популяцию долгоживущих клеток памяти, которые либо находятся в лимфатическом узле (центральные T- и В-клетки памяти), либо циркулируют вне лимфоидных тканей (эффекторные — Т- и В-клетки памяти) (рисунок 2).
-
связывание ТКР с молекулой ГКГС, загруженной со 2. специфическимвзаимодействие антигеноммежду (сигналдендритной1). клеткой и специфической Т-клеткой посредствомко-стимулирующих
-
секрециямолекул (сигналпраймирующих2). цитокинов дендритной клеткой, которые воздействуют на поверхностные рецепторы Т-клетки (сигнал 3) (рисунок 2).
-
Цель вакцинации — генерировать специфическую популяцию клеток памяти, которая будет служить быстрой первой линией защиты от будущего воздействия одного и одного и и того же патогена. же патогена. патогена.
-
7
-
В быстрой первой линией защиты от будущего резульате этой активации специфическая воздействия одного и одного и и того же патогена. же патогена. патогена.
-
Т-клетка пролиферируется (клональная экспансия) и : i . Интактные В-лимфоциты (или В-клетки) в лимфоузле активируются путем связывания антигена с его специфическим В-клеточным рецептором (ВКР) (рисунок 2). ВКР может распознавать антиген либо в растворимой форме, поступающий из места инъекции по лимфатическим сосудам, либо презентированный молекулами ! класса [KIC на дендритных клетках. Высокоорганизованные и повторяющиеся антигенные белки (например, на поверхностях вирусов и бактерий) эффективно сшивают ВКР, принадлежащие одной и той же В-клетке, передавая сильные сигналы активации.?
-
s В НЫ . в Второй сигнал для активации В-клеток обеспечивают Т®-клетки: антиген, связанный ВКР
-
интернализуется, процессируется, экспонируется наповерхности В-клетки вассоциациисмолекулами | класса [KIC и презентируется специфическому TKP Т®-клетки. Цитокин ИЛ-21, продуцируемый Tfhклеткой, способствует пролиферации и дифференцировке В-клеток в плазмоциты, секретирующие антитела, в первую очередь изотипа IgM, а затем переключающиеся Ha IgG, IgA или IgE в зависимости отантигена.? Хотя В-клетки могутактивироваться непосредственноантигеномдля продукции антител,
сопутствующая активация антиген-специфических Т-хелперных клеток важна для переключения класса Ig и генерации долгоживущих плазмоцитов.
МЕХАНИЗМ ДЕИСТВИЯ ВАКЦИН ы
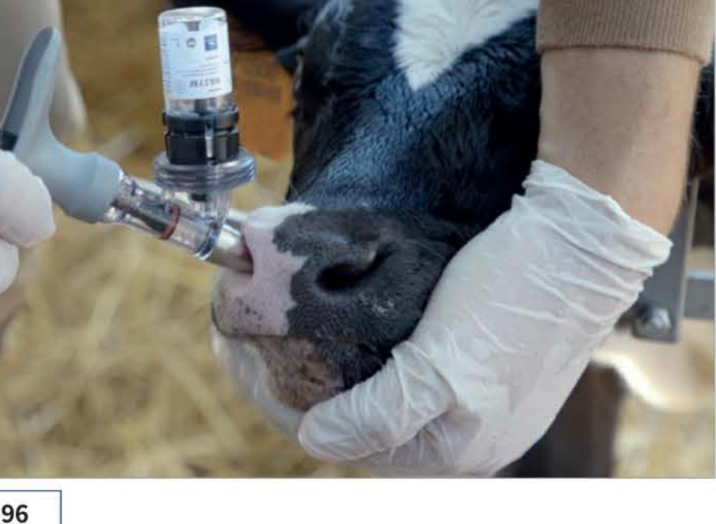
М укозальнаяУКОЗАЛЬНАЯвакцинация ВАКЦИНАЦИЯпредпочтительна для 2 . : профилактики инфицирования патогенами, колонизирующими и инвазирующими поверхность слизистой оболочки. Интраназальное или пероральное Первым шагом в spieepdalellen GUS а введение вакцин чаще всего связано с мукозальным SETS Ее Сены ЕЛА иммунным ответом, но некоторые — составы активация врожденной иммунной (системы парентеральных вакцин также могут генерировать посредством взаимодействия ПАМО антигена мукозальные иммунные ответы.’ При интраназальном со специфическими РРО на апикальной или пероральном введении инактивированные антигены ПОВЕРХНОСТИ МЕТЕТОК УМУКОРВЛЬНОЕО Е Чите: должны противостоять расщеплению внеклеточными ЕЕСИ О HEE Пот инициируется в местах индукции, называемых протеазами, содержащимисявслизи, и не должны быстро лимфоидными тканями, ассоциированными удаляться при мукоцилиарном клиренсе. Инкапсуляция в И GEGROGKANIA (MALT), в которых иммунолипосомыи использование адгезивных полимеров находятся В-клетки, Тклетки и дендритные являются адъювантными механизмами, призванными клетки (рисунок 3). Сначала вакцинный увеличить время удержания антигена на поверхности антиген захватывается и транслоцируется с мукозального эпителия. поверхности слизистой оболочки (просвета) в нижележащую MALT через М-клетки, В отличие от большинства системных вакцинаций, которые являющиеся специализированными клетками, вызывают только слабый иммунный ответ слизистой расположенными среди эпителиальных оболочки или вообще не вызывают его, эффективная клеток. Как только антиген достигает MALT, он мукозальная иммунизация способна индуцировать как распознается дендритными клетками таким мукозальный, так и системный иммунный ответ, что же образом, как описано выше в разделе представляет собой двойную линию защиты от патогенов. «Врожденный иммунный ответ на вакцинацию». На втором этапе дендритные клетки, презентирующие вакцинные антигены, взаимодействуют с интактными Т-клетками в Мукозальная вакцинация зоне MALT (рисунок 3). Реакции прайминга и # Wiig, дифференцировки описаны выше в разделе # Wiig, «Адаптивныйиммунныйответнавакцинацию».8 We. Просвет Лимфоидная ткань, ассоциированная офф # eee со слизистыми оболочками (MALT) М-елета "ie ate Вакцинные антигены Ay захватываются из ae тай просвета М-клетками, wa - '® CD8Tc которые расположены среди эпителиальных ® Cb4Te клеток, и А о> stdON транслоцируютсялимфоидную тканьв Интактная AK + 4 ассоциированную _ AK aN _ со слизистыми Г. ** о оболочками (MALT), ДК Изактиая | ? | T-xennep в субэпителиальной В-клетка LO2 y области. MALT ар > содержит дендритные $ a клетки (ДК), Тклетки a & Плазмеци® (ди ке < A которые необходимы л Я для генерации антиген# специфического иммунного ответа.
a РИСУНОК 3. Иммунный ответ после мукозальной вакцинации.
ВАКЦИНАЦИЯ В КАЧЕСТВЕ ПРОФИЛАКТИЧЕСКОГО СРЕДСТВА
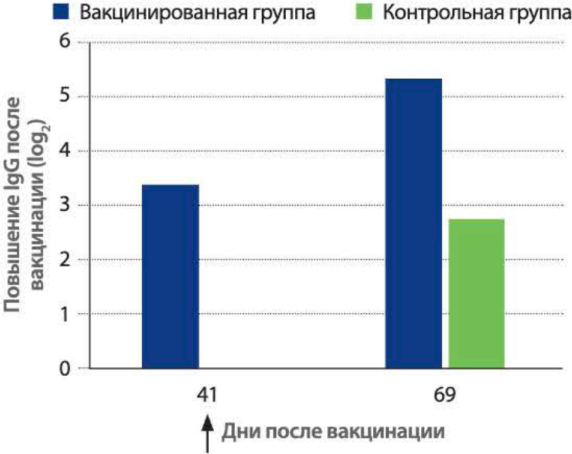
ianagem ет являетсязаболеваний,основойпосколькупрофилактикииммунный ответинфекционныхпротив последующего воздействия патогена быстрее и интенсивнее у вакцинированного животного по сравнению с невакцинированным. Хотя при воздействии~ патогена на вакцинированное животное также запускается врожденный- иммунный$ ответ, популяция лимфоцитов памяти, индуцированных вакцинацией (CD4* Th-knetku, CD8* Т-клетки, В-клетки), быстро активируется и дифференцируется в эффекторные клетки, в отличие от более медленного процесса активации, необходимого для активации интактных T- и В-клеток. Затем в В-клетках памяти быстро продуцируются специфические антитела, которые достигают более высоких концентраций в кровир по сравнению с неиммунизированным животным (рисунок 4).р Антитела являютсяу OMHOUрован ИЗ Основных эффекторных молекул адаптивного иммунного ответа и способствуют устранению инфекции при помощи различных механизмов: и они нейтрализуют патогены, токсины и адгезины. и они способствуют лизису патогенов посредством связывания комплементом. и они способствуют Ффагоцитозу, опосредованному макрофагами и нейтрофилами, за счет опсонизации патогена. в они способствуют лизису инфицированных клеток или паразитов в процессе антителозависимой цитотоксичностис помощью макрофагов, эозинофилов, нейтрофилов и натуральных клеток-киллеров.

=
\
}
и
|
9 4
з
Е :
or», | *
E
hs. i
ь Ae> ^^—— ~~~- Gia=
2 $ $ 5 ; SS:
~
=
J
: ` a
№. ^
A мА
- as . Fe . et
в. 3i?
96
№ Вакцинированная группа — № Контрольная группа
°
5
=
со 4
=
ome=З-|--ae ь
5 =
Е
37 2- : :
Е: Е
1- - р р —
0.
41 69
4 Дни после вакцинации
й = Иммунизацияиальной вакцинойтелят винактивированной0 день (вакцинированнаябактер группа) индуцировала выработку специфических антител IgG в крови в 41 день по сравнению с невакцинированными животными (контрольная группа). B41 день (черная стрелка) все животные былиэкспериментальноинфицированывирулентными бактериями того же вида. Через двадцать восемь дней (69 день) продукция антител в ответ на экспериментальное инфицирование была выше в вакцинированной группы, чем У неиммунизированных телят (контрольная группа).
РИСУНОК 4. Иммунная память, индуцированная t вакцинацией.
При инфекциях, вызванных внутриклеточными патогенами, С08Т-клетки памяти, индуцированные вакцинацией, будут быстро активироваться в эффекторные цитотоксические клетки, разрушая инфицированные клетки хозяина до пр а мятиспространенияв эффектор и н ыф е кции.клетки Послеони активациибудут реагировать ТН1-клетокна патоген путем секреции в основном ИФН-у, цитокина, " se С : который способствует активации CD8 Т-клеток. С другой стороны, Th2 и Thl7-kneTku памяти, индуцированные — 6 6 ь вакцинацией, необходимы для быстрого ответа с целью элиминации внеклеточных патогенов, обеспечивая цитокины, = стимулирующие продукцию — антител В-клетками и способствующие фагоцитозу макрофагами и нейтрофилами.
Таким образом, иммунный ответ памяти у вакцинированного животного эффективен в борьбе с инфекцией, что предотвращает развитие заболевания.
