
ВРОЖДЕННЫЙ ИММУНИТЕТ ш количество дендритных клеток у новорожденного
У новорожденного гуморальные компоненты врожденной ниже, и их способность презентировать антиген в целях
иммунной системы присутствуют в ограниченном активации приобретенной иммунной системы также
количестве и функционируют не так хорошо, как у ограничена. Моноциты мигрируютвткани и развиваются в
взрослого (таблица 2). дендритные клетки после провоспалительной стимуляции.
m Активность комплемента при рождении составляет ш количество циркулирующих натуральных клеток-
около 50 % от активности у взрослых коров. Уровень киллеров (НК) также меньше в возрасте одной
комплемента в крови к 1-дневному возрасту быстро недели (3 % от общего количества лимфоцитов), чем у
снижается до менее 20 % от уровня взрослых коров, взрослого (рисунок 7). Доля циркулирующих НК-клеток
затем постепенно растет и к месячному возрасту увеличивается до 10 % к 6-8-недельному возрасту.
достигает примерно 50 % от уровня взрослого. Также у новорожденного снижена функция НК-клеток.
-
и Активность интерферона в эпителиальных клетках новорожденного кажется нормальной, но продукция интерферона | типа лейкоцитами снижена.
- `
-
ПРИОБРЕТЕННЫЙ ИММУНИТЕТ и Новорожденный теленок является агаммаглобулинемическим (не имеет антител) и зависит от приема колострума для получения антител.
-
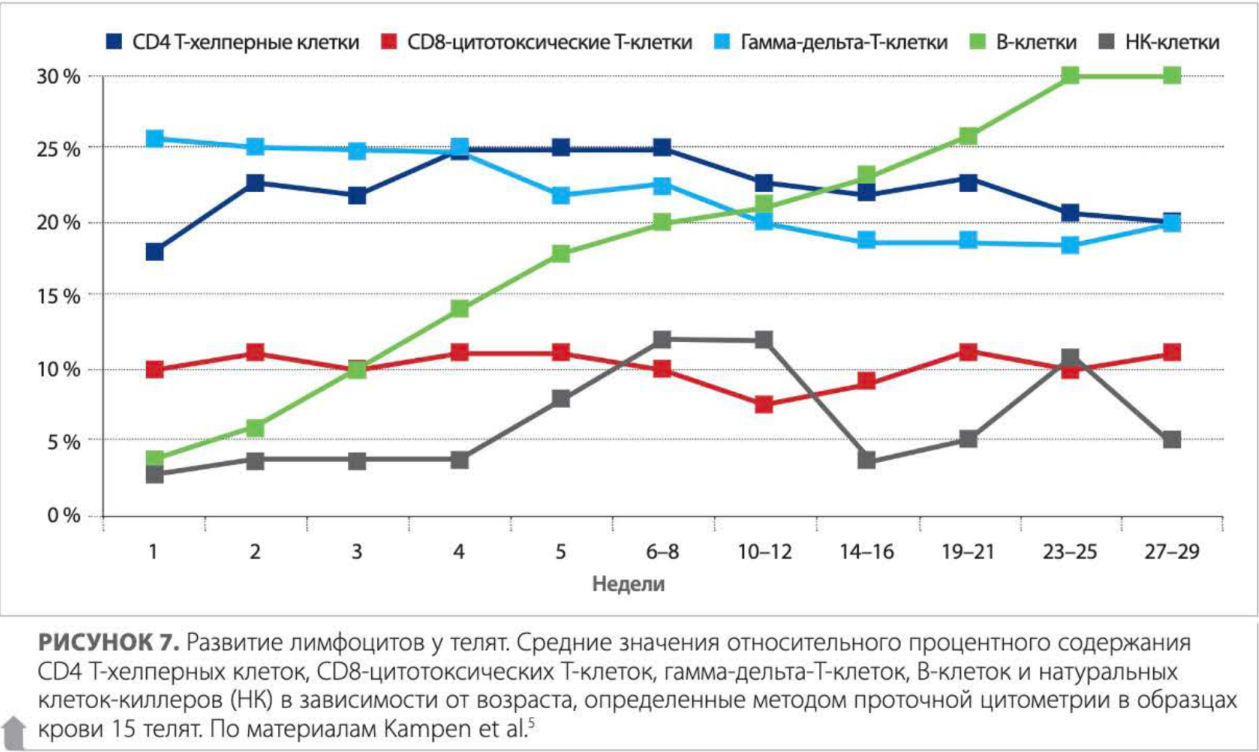
и Количество циркулирующих В-клеток у новорожденного значительно снижено, составляя лишь 4 % от общего числа лимфоцитов в возрасте одной недели по сравнению с 20-30 % у взрослых. (рисунок 7). Доля циркулирующих В-клеток постепенно увеличивается до 20 % от общего количества лимфоцитов к 6-8-недельному возрасту. Столь низкое количество В-клеток, сцепленных с эндогенными кортикостероидами телят и абсорбированными материнскими гормонами, приводит к сниженному антительному ответу. ]
-
Клеточные компоненты врожденного иммунитета также отличаются от таковых у взрослых: и количество нейтрофилов, циркулирующих в крови новорожденного теленка, примерно в четыре раза выше, чем у 3-недельных телят. Неонатальные нейтрофилы и макрофаги обладают пониженной фагоцитарной способностью, но их активность повышается после приема колострума. К 1-недельному возрасту нейтрофилы становятся функциональными и способны к эффективному ответу. Функциональность нейтрофилов постепенно достигает взрослого уровня к 5-месячному возрасту.
]
Ш С04Т-хелперные клетки № С08-цитотоксические Т-клетки № Гамма-дельта-Т-клетки № В-клетки № НК-клетки
ыы
25059 sea, aia eeiealicmiiasiie” анны
Ne =
Ce eS ee Laas
15% - .
5% a rs
0% -: : т т: : : т: : т: :
1 2 ы 4 sie Tete bed вы sfc oy
Недели |
РИСУНОК 7. Развитие лимфоцитов у телят. Средние значения относительного процентного содержания
CD4 Тхелперных клеток, СО-цитотоксических Т-клеток, гамма-дельта-Т-клеток, В-клеток и натуральных
клеток-киллеров (НК) в зависимости от возраста,5 определенные методом проточной цитометрии в образцах
a крови 15 телят. По материалам Kampen et al.
//.) ) ВНАЧАЛЕИММУННОЙ ПУТИ. СИСТЕМЫ РАЗВИТИЕ НОВОРОЖДЕННЫХ И МАКСИМИЗАЦИЯ ПОТЕНЦИАЛА
-
и Утелят, лишенных колострума, IGM начинает появляться в крови только через 4 дня после рождени дост и гаетя
-
ожидаемого функционального уровня (1 мг/мл) только в возрасте 8 дней. Уровни циркулирующих IgA, 1961 и [962 достигают заметных значений через 16-32 дня после рождения.
-
шУ новорожденного соотношение Т-клеточных субпопуляций (Т-хелперные:Т-цитотоксические), как у взрослого (рисунок 7). Альфа-бета-Т-клетки составляют 28-34 % от общего количества лимфоцитов, среди них около 20 % Т-хелперных клеток и 10 % CD8цитотоксических Т-клеток.
-
ш Гамма-дельта-Т-клетки составляют около 25 % от общего количества лимфоцитов в течение первой недели, но их число снижается примерно до 16 % к возрасту 19-21 недель. Общее количество гаммадельта-клеток в крови не меняется, но их доля в циркулирующих лимфоцитах уменьшается по мере увеличения доли В-клеток и общего количества Т-клеток (рисунок 7).
-
и Активация Т-клеток несколько депрессирована при рождении и остается постоянной в течение 28 дней после рождения.
-
Клеточно-опосредованные ответы на вакцины могут индуцироваться очень рано; однако животным может понадобиться достичь 3-4-недельного возраста, прежде чем вакцины индуцируют соответствующие антительные ответы, которые разовьются через 10-14 дней после вакцинации.
-
и МукозальныеТ-и В-клеточные ответы развиваются после рождения (рисунок 2). У жвачных интактные В-клетки развиваются в пейеровых бляшках подвздошной кишки, а затем по мере взросления животного мигрируют в лимфоидные фолликулы тощей кишки и брыжеечные лимфоузлы общей мукозальной иммунной системы.
nia) МУОЗалЬНЫИв MMM UTES, в ee eee лимфоидную ткань, связанную со слизистой. оболочкой. кишечника (GALT), в значительной степени влияют факторы окружающей среды на поверхности слизистой оболочки. Развитие GALT приводит к одному из двух различных ответов на антигены:
- активной защитной реакции по отношению к патогенам или активной толерантности к комменсальным микроорганизмам и диетическим антигенам.
Две критические контрольные точки для воздействия окружающей среды Ha GALT возникают сразу после рождения и при отъеме. Колострум важен для развития кишечника и роста и для выработки неантигенспецифического иммунитета. Колострум также важен для обеспечения наличия патогенспецифических антител. Колострум содержит высокий уровень ИЛ-4 и трансформирующего фактора роста бета (ТФР-В), который оказывает противовоспалительное действие и ускоряет переключение антител класса IgA на обычные пищевые белки, а также предотвращает экспрессию активных иммунных ответов и способствует развитию толерантности к нутриентным антигенам. Наличие комменсальной 2 микробной флоры (микробиома) имеет важное значение в развитии GALT. Второй важной контрольной точкой воздействия окружающей среды для GALT является отъем. Период отъема характеризуется сменой рациона и иногда сопровождается низким потреблением корма, низкими темпами роста и развития, диареей и повышенным риском заболеваний из-за кишечных патогенов. Масштаб и степень тяжести этого «отьемного» кризиса для GALT зависит от того, насколько сильно была развита иммунная система в предотъемный период. Управление иммунной системой для оптимальной профилактики заболеваний в возрасте раннего отъема по-прежнему будет оставаться проблематичным.

—42 |
НИЕЕЛЬС a ЖетИВНЫВ ИлитУ
“
МАТЕРИНСКОЕ ВМЕШАТЕЛЬСТВО И АКТИВНЫЙ ИММУНИТЕТ
Кратковтеменное вмешательство в ответ на вакцины, вызванное материнскими антителами
Одной из основных проблем развития активного иммунного ответау молодых телят является вмешательство материнских антител (также известное как «на фоне материнских антител») (рисунок 1). Эта проблема была продемонстрирована на примере ряда патогенов, включая ротавирус, ВД KPC, респираторно-синцитиальный вирус крупного рогатого скота (РСВ КРС), герпесвирус-1 крупного рогатого скота (BHV-1) и Mannheimia (Pasteurella) haemolytica. В случае многих вакцин определение сроков парентерального введения предусматривает расчет того момента времени, когда уровень материнских антител достаточно низок, чтобы активный иммунный ответ развился в достаточной степени и обеспечил вакцинный иммунитет (рисунок 1). Период полураспада большинства материнских антител составляет 16-28 дней. Срок первичной вакцинации может составлять от нескольких недель до 8 месяцев. Kak показано на рисунке 1, он может варьироваться у разных животных и зависит от уровня материнских антител и вакцинного антигена.
Материнское вмешательство представляет собой серьезную проблему для разработки вакцин. Уровень антител часто снижается до уровня, еще достаточно высокого, чтобы блокировать ответ на вакцину, но недостаточно высокого, чтобы противостоять полевой инфекции; это создает окно возможностей для инфицирующих микроорганизмов. В случае таких вирусов, как BHV-1 и ВД KPC, часто наиболее подходящим временем для введения модифицированных живых вакцин является 3-4-месячный возраст, позволяющий избежать материнского вмешательства.В случае бактеринов (пораженных цельных бактериальных клеток, используемых в качестве вакцины) период вмешательства материнских антител обычно короче; например, 40 % телят, вскормленных колострумом и вакцинированных М. haemolytica в 2-4-недельном возрасте, достигнут сероконверсии.
Формирование у телят активного защитного иммунитета против РСВ КРС является одной из наиболее сложных задач. Отмечалось, что материнское вмешательство часто присутствует у телят в 1-6-месячном возрасте. Разработка плана вакцинации для избежания «окна восприимчивости» к инфицированию РСВ КРС является важной, но сложной задачей (рисунок 1). Проблема с РСВ КРС заключается в том,
что период полураспада антител составляет около 40 дней, и что титры, достигающие уровня 1 : 4, могут влиять на применение модифицированных живых парентеральных вакцин против РСВ КРС. Для преодоления материнского вмешательства разработан ряд подходов к вакцинации. Одной из наиболее успешных стратегий является использование у молодых телят интраназальных вакцин против BHV-1, PCB КРС и вируса парагриппа 3. Дополнительные экспериментальные исследования с интраназальной вакцинацией против ВД КРС телят в 2-5-недельном возрасте тоже продемонстрировали защиту от инфицирования ВД КРС. Также была разработана экспериментальная интраназальная живая вакцина на основе Pasteurella multocida, которая, как было показано, индуцирует высокие уровни секреторных антител. Преимущество интраназальных вакцин заключается в том, что они способны реплицироваться в слизистой оболочке носа и стимулировать мукозальную иммунную систему при незначительном вмешательстве секреторныхантител.Крометого, мукозальный иммунитет, вырабатываемый интраназальными вакцинами, с большей вероятностью предотвратит инфицирование, чем просто уменьшит тяжесть заболевания. Часто после интраназальной вакцинации обнаруживаются низкие титры системных антител или их отсутствие, что затрудняет оценку иммунитета с помощью серологии. Несмотря на отсутствие сероконверсии, интраназальные вакцины вырабатывают защитный иммунитет который длится несколько месяцев. Дополнительным преимуществом интраназальных вакцин является их способность индуцировать интерферон, вызывающий противовирусное состояние втечение 40 часов —— после введения. Индукция интерферона у молодого теленка также может способствовать развитию зрелой иммунной системы. Другим подходом к преодолению материнского вмешательства является использование адъювантных парентеральных модифицированных живых или инактивированных вакцин. Особое значение имеет тип адъюванта, так как не все виды адъювантов обеспечат защиту на фоне материнских антител, при этом квасцы обладают наименьшей способностью обеспечивать такую защиту. Некоторые адъювантные парентеральные вакцины также могут индуцировать защитный мукозальный иммунитет и ответ секреторного IgA; большое значение при этом имеет используемый адъювант.
