Таблица 8 - Молекулярные размеры (п.о.) фрагментов гидролиза ДНК Pasteurella multocida
| Фрагмент | Размеры фрагментов ДНК Pasteurella multocida штамма 26 (Кб) | ||||
|---|---|---|---|---|---|
| ApaI | Notl | Ceul | ApaI - Ceul | Notl – Ceul | |
| 1 | 2 | 3 | 4 | 5 | 6 |
| A | 460,0 | 850,0 630,0 | 980,0 630,0 | 460,0 330,0 | 630,0 520,0 |
| B | 450,0 | ||||
| C | 340,0 | 230,0 | 450,0 | 230,0 | 230,0 |
| D | 230,0 | 230,0 | 230,0 | 185,0 | 180,0 |
| E | 228,0 | 180,0 | 55,0 | 180,0 | 175,0 |
| F | 185,0 | 110,0 | 175,0 | 110,0 | |
| G | 180,0 | 110,0 | 125,0 | 55,0 | |
| H | 130,0 | 9 | 75,0 | 9 | |
| I | 95,0 | 55,0 | |||
| J | 55,0 | 53,0 | |||
| K | 33,0 | ||||
| L | 9 | ||||
| Суммарный размер | 2,353 | 2,349 | 2,345 | 2,360 | 2,359 |
| Число фрагментов | 10 | 8 | 5 | 12 | 8 |
Из таблицы видно, что в результате исследований нами определено среднее значение молекулярной массы геномной ДНК штамма Pasteurella multocida 90 – 2,353 8 (n=5) п.о
Таким образом, показано, что данные относительно молекулярного размера ДНК Pasteurella multocida совпадают с литературными, особенно с размером ДНК Pasteurella multocida А:1. Установлено, что используемый нами метод экстрагирования ДНК позволяет получать полноразмерную и нефрагментированную нуклеиновую кислоту. Полученные данные в дальнейшем можно использовать для дифференциации штаммов на основе ПЦР с последующим рестрикционным анализом.
2.5 Разработка и оптимизация метода ПЦР для диагностики Pasteurella multocida
Полимеразная цепная реакция, ПЦР не сходит с заголовков статей научных журналов с тех пор, как была открыта Кэри Б. Мюллисом в 1983 году, за что он был удостоен Нобелевской премии.
Появление метода ПЦР было обусловлено определенными достижениями молекулярной генетики, прежде всего расшифровкой нуклеотидной последовательности геномов ряда микроорганизмов. Простота исполнения и непревзойденные показатели
чувствительности и специфичности принесли новому методу небывалую популярность.С быстротой молнии метод распространился по всему миру. ПЦР используется для проведения научных и практических исследований. Но прежде всего метод нашел широкое применение в области микробиологической диагностики. В настоящее время метод ПЦР автоматизирован, довольно прост в исполнении и доступен любой молекулярно-биологической лаборатории. [193].
Основной целью настоящей работы являлась разработка метода ПЦР для идентификации возбудителя пастереллеза КРС, включающая выбор стратегии конструирования специфических праймеров для наработки нуклеотидных последовательностей, определение оптимальных параметров амплификации и адаптацию метода для рутинных исследований.
В РК аналогичные работы до настоящего времени не проводились. Впервые в Казахстане с использованием последних достижений молекулярной биологии и генной инженерии была организована разработка метода нового поколения диагностики пастереллеза на основе ПЦР.
2.5.1 Конструирование и синтез специфических праймеров для идентификации Pasteurella multocida методом ПЦР
Подбор праймеров для детекции геномной ДНК Pasteurella multocida является одной из основных задач при разработке ПЦР тест системы. Этот этап представляет из себя аналитическую работу, которая включает анализ и сравнение нуклеотидных последовательностей, как полных геномов, так и отдельных генов возбудителей пастереллеза и родственных к ним микроорганизмов (P. multocida subsp. multocida, P. multocida subsp. gallicida, P. multocida subsp. septica, P. dagmatis, P. canis biotype 1, P. canis biotype 2, P. stomatis, P. anatis, P. langaa, Pasteurella sp. B strain, P. haemolytica, H. influenzae type b, A. pleuropneumoniae, Actinobacillus sp. Strain, E. coli, P. aeruginosa, S. typhimurium, S. aureus, S. faecalis, B. cereus). Конструирование праймеров происходит на основе существующих знаний о геноме Pasteurella multocida. Первоначально необходимо выбрать ген-мишень, к которому будут подбираться специфические праймеры.
По данным исследований последних лет, с вирулентностью Pasteurella multocida ассоциированы множества генов, кодирующих белки с разными функциями. Таким как, адгезия и проникновение в клетку хозяина, приобретение железа, порины наружной мембраны, нейроминидазы, супероксид дисмутазы, выработка дерманекротоксина и гиалуронидазы. Работа BarbaraJ.M. etal. (2000) показала, что геном Pasteurella multocida содержит 104 вероятных генов вирулентности. Это 7% всего генома. DaboS.M. et al. (2007) предполагают, что гены pfhB1 и
pfhB2 потенциальные носители вирулентности. Оба гена высоко гомологичный с filamentoushemagglutinin (fbaB) B. pertussis, который отвечает за проникновение Pasteurella multocida в клетку хозяина. Центральный регион этих белков содержит интегрин-связывающие участки, участвующие в адгезии B. Pertussis. Более того, карбоксильная группа этих белков содержит участки, с 66% гомологичностью с сыворотко-устойчивым белком р76 Heamafilussomnus. Наличие р76 обуславливает сопротивление опсонизации, тем самым увеличивая выживаемость патогена в хозяине.
По работам FerreiraT.S.Petal. (2012), среди генов кодирующих порины наружной мембраны, наиболее ярко выражены гены tadD (93.4%), ptfA (91.3%), omp87 (84.7%).
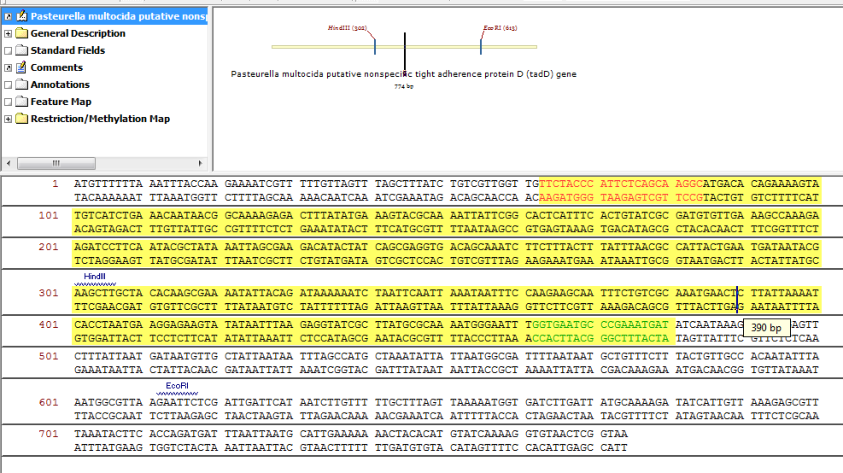
Для моделирования праймеров нами взяты нуклеотидные последовательности генов, кодирующих порины наружной мембраны Pasteurella multocida из базы данных Genbank , с использованием пакета компьютерных программ Vector NTI Advance 9, проведено попарное сравнение последовательности нуклеотидов между собой для определения наиболее вариабельных и консервативных участков генома. Характеристики и параметры выбранны праймеров были установлены с помощью программы Oligo Analizer.
В результате исследований было сгенерировано 3 пары праймеров. Подобранные пары праймеров с основными характеристиками представлены на рисунках 14,15 и в таблице 9.