
Nij=Pi Pj 2N — для гетерозигот,
где Nii u Nij — теоретически ожидаемое число животных;
Pi, Pj — частота i и j аллелей,
М — общее количество животных.
Число степеней свободы f равняется К-п (число фенотипов минус число аллелей).
В нашем примере (по щелочной фосфатазе): Твв=0,43846х37=16,22; Тсс=0,11413х37=4,22281; Твс=0,66216х 0,33784x2x37=16,554105916
Для оценки значимости селективного различия между генотипами, обусловленного действием естественного отбора или селекции, необходимо проверить соответствие фактических частот генотипов теоретически ожидаемым, для чего воспользуемся критерием x (хи - квадрат, или иначе критерием соответствия К. Пирсона, 1900).
Величина хи — квадрат выражается любым положительным числом от0 до 00.
=r (O-TY/T,
где Ф — фактически наблюдаемое число овец для каждого фенотипа,
Т — теоретически ожидаемое число овец для каждого фенотипа.
В нашем примере:
у2вв= (14-16,2)?/16,2=0,3, Фсс= (2-4,2)214,2=1,15, Хвс= (21-16,67/16,6=1,17
¥ овш=х0,3+1,17+1,15=2,6688. При f=3-2=1 значение 7°=2,66 указывает на то, что отклонение фактически наблюдаемого числа фенотипов щелочной фосфатазы от теоретически ожидаемого расщепления незначительно.
Ожидаемый уровень гомозиготности (Са) вычисляют по формуле Робертсона (1956).
п Са? - для одного локуса,
=
ш
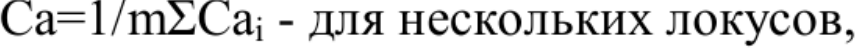
Ca=1/m=Ca; - для нескольких локусов,
=
п — число аллелей в локусе,
g — частота аллелей,
т — число локусов, Са! — гомозиготность по одному локусу, Са — гомозиготность по всем локусам (средняя). Возвратимся к нашему примеру по щелочной фосфатазе: Са гомозиготности A=0,43846+0,11413=0,5526,
0,5526х100 %=55,26 %
Этот показатель может быть выражен в виде десятичной дроби или (чаще) в процентном выражении.
Для трех исследованных нами локусов (AEs, Ар Tf)
Са=0,5365+0,5526+0,2516/3=0,4469, или 44,69 %
Число эффективно действующих аллелей (уровень полиморфности локуса - Ма) является величиной обратной этому коэффициенту.
Na=1/Ca
В нашем случае Ма равно: по локусу арилэстеразы —1/0,5365=1,8639 по локусу щелочной фосфатазы — 1/0,5526=1,8096 по локусу трансферрина - 1/0,2516=3,9739
Чем выше степень гомозиготности, тем меньше число эффективных аллелей в генотипах и тем значительнее уменьшение генетического разнообразия в популяции. При отсутствии полиморфизма величина Ма будет самой низкой (равна единице). Если частоты аллелей одинаковы в
двухаллельных системах (Pa=g,=0,5), то Na=2, различны — дробные значения больше 1.
Степень гомозиготности пород, стад, линий характеризуется также суммарно по степени гомозиготности нескольких локусов разных генетических систем по формуле Гельдермана (цит. Е.Н. Меркурьева, Г.Н. Шангин-Березовский, 1983).
SH=VX(Hi-H)’/n, где
ЗН - коэффициент гомозиготности по нескольким ло-
кусам,
Hi - средняя гомозиготность каждого локуса, Н - средняя гомозиготность по изученным локусам, М - число изученных локусов.
Долю гомозиготных генотипов по каждому локусу определяют от общего числа обследованных животных обычной пропорцией. Пример: Локус | ство жи- | зиготных геДоля гомозиготныхо BOTHBIX HOTHIIOB генотипов, % ЕЕ ыы
Средняя гомозиготность:
Н=(0,5946-+0,4324-+0,3243)/3=1,3513/3=0,4504; Сумма квадратов отклонений: х(Н!-Н)7=(0,5946-0,4504)=(0,1442)?=0,02079; х(Н_-Н)*=(0,4324-0,4504)?=(-0,018)?=0,000324; х(Нз-Н)/=(0,3243-0,4504)=(-0,1261)?=0,01590;
