
ри, P2, рз... ри — теоретическая эффективность по каждому локусу.
Так теоретическая эффективность системы арилэстеразы (AEs)=0,20095, щелочной фосфатазы (Ар)=0,173888, трансферрина (Tf)=0,51104.
Суммарный эффект применения трех используемых нами полиморфных систем составил:
P=1(1-0,20095) x (1-0,173888) х (10,51104)=0,32081.
Индекс аллельного генетического сходства двух животных определяется по формуле:
га=ЗЛи-+тр-$,
где г. — индекс сходства, $ — число сходных аллелей у двух сравниваемых жиBOTHBIX,
п: — число выявленных антигенов или аллелей у первого животного,
п2 — число выявленных антигенов или аллелей у второго животного При максимальном сходстве ra=1, при минимальном - 0 Данный индекс можно использовать при сравнении иммуногенетических данных родоначальника линии с его выдающимися потомками, а также в анализе сочетаемости родительских пар.
Пример 1
| ных | AEs | Ap | Tf | BBIAB- ленных аллелей |
|---|---|---|---|---|
| ное | ||||
| г.=0 Пример 2 | ||||
| ных | AEs | Ap | Tf | Число ленных |
| 06 [Fae|B | [вв | ADS аллелей | ||
| Hoe |
ta=1/5+3-1=1/7=0,1428571,
TO есть коэффициент аллельного сходства между животными незначителен.
Критерий достоверности (tp — критерий Стьюдента), применяется для оценки различий животных с разными аллелями, а также величин частот одного и того же аллеля в двух сравниваемых популяциях: ®0=М1-Мо/\/и +то>,
f=mtm-2
где М; и М» - частоты аллеля двух сравниваемых популяций, m, и mM) — их ошибки шип — количество животных в каждой группе.
Пример: частота аллеля В щелочной фосфатазы в одной группе животных равна 0,662, в другой — 0,425. Достоверны ли различия в частотах? tp=0,6620,425/0,055°+0,0387=0,237/0,0668=3,55. Разница высокодостоверна, P<0,001.
Оценка генетической близости между породами, линиями овец проводится на основании анализа генных концентраций с помощью формул расчета генетических дистанций: М. Nei (1971), Р.Недиск (1971, 1975), 1.5. Rogers (1983) и другие. Анализ генетических расстояний, особенно в селекционной работе при создании новых линий, помогает понять механизмы эволюционных изменений.
М. Nei (1971)
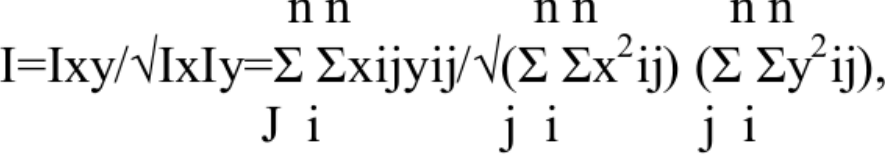
nn nn nn
I=Ixy/VIxly=2 Exijyij/V(e хх?) (© ХУ,
Ji ji ji
где п — число исследованных локусов,
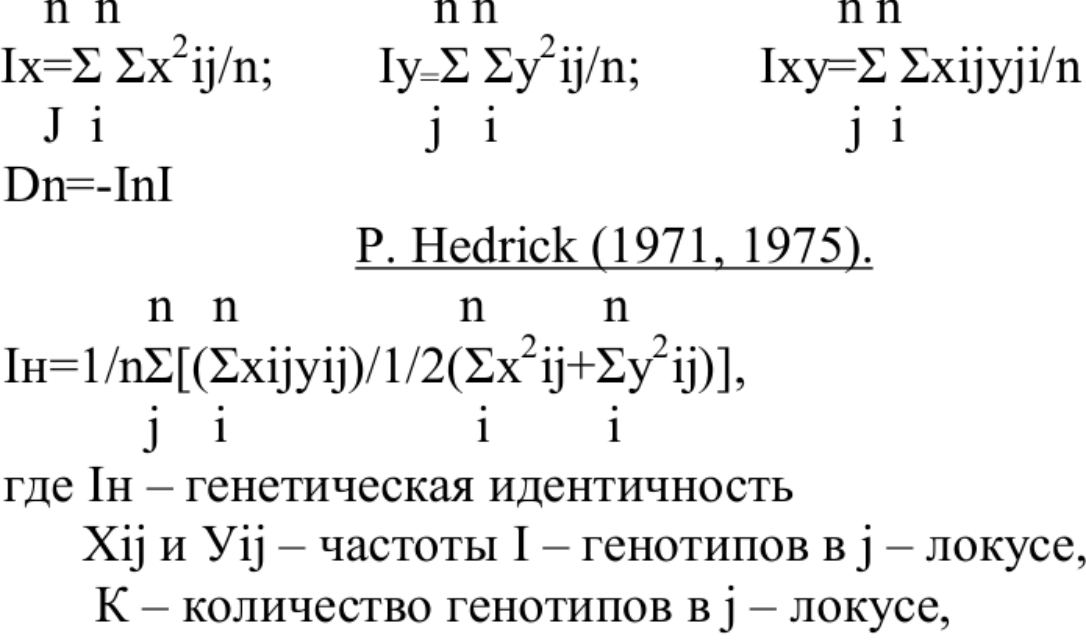
xij, yij — частоты I — аллеля j — локуса в популяциях X иу, соответственно, а
nn nn nn
Ix=d Ux’ ij/n; Ту-х Ly ij/n; Ixy=2 Lxijyji/n
Ji ji ji
Dn=-InI
P. Hedrick (1971, 1975).
no n n
Tn=1 /n2[(Zxijyij)/1/2(2x7ij+Zy*ij)],
joi i i
где [н — генетическая идентичность
Хи У! - частоты I — генотиповв ] — локусе,
К - количество генотиповв j — локусе,
