
Наибольшую концентрацию в данной популяции имели Аа, Вс, Ве — антигены (0,472; 0,544; 0,473) А и В систем групп крови. Факторы Bb, Bd, Bg, Cb, Da, Ma uК систем - В, С, О, Ми К - встречались со средней частотой (0,295; 0,369). Антигены Ab, Са и Mb получили наименьшее распространение (0,143; 0,216).
Нами был изучен антигенный спектр крови австралийского мериноса, широко используемого в стадах почти всех отечественных тонкорунных пород.
Аллелофонд австралийского мериноса представлен шестью системами групп крови.
В системе А выявлены Ааи Ab антигены со средней частотой встречаемости (0,246; 0,401).
В сложной В системе эритроцитарные детерминанты Bb, Be, Вс, Bi, Bg встречались со средней частотой (0,212; 0,249; 0,312; 0,259; 0,483) кроме фактора Bd, встречаемость которого была низкой (0,017).
В системе С факторы Са и Cb имели среднюю частоту встречаемости (0,117; 0,241). В системе М фактор Ма имел концентрацию 0,368, а Mb — 0,216.
B Du R - системах определено по одному антигену. Фактор Ра имел широкое распространение (0,567), несколько меньше антиген R (0,498).
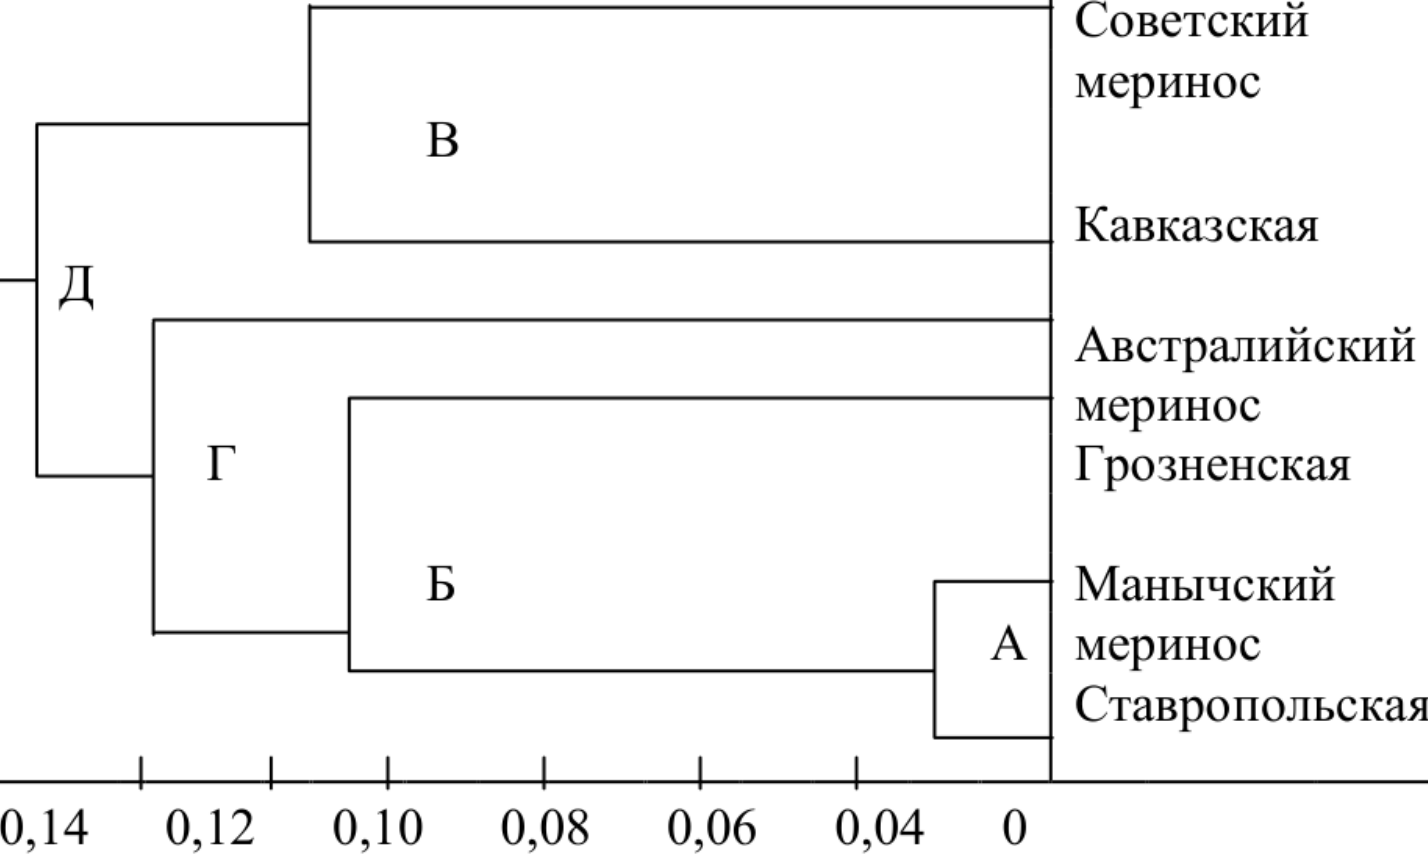
На основании данных иммуногенетического типирования и показателей частот встречаемости антигенных факторов рассчитаны индексы генетического сходства (га), генетические дистанции (4) между тонкорунными породами и проведен кластерный анализ с построением дендрограммы (таблица 12, рисунок 1).
Таблица 12 Индексы генетического сходства (га), генетические дистанции (4) между тонкорунными поро-
дами овец
| По- рода, r,/d | IT | KA | MM | CM | CT | AM |
|---|---|---|---|---|---|---|
| | rT | | - | [0,1156 | | 0,0781 | | 0,0741 | | 0,1133 | | 0,1509 | |
| |_KA_| | 0,8908 | | - | [0,1492 | | 0,1032 | | 0,1471 | | 0,1518 | |
| |_MM_| | 0,9249 | | 0,8614 | | - | 10,1384 | | 0,0237 | | 0,0702 | |
| |_CM_| | 0,9286 | | 0,9016 | | 0,8708 | /_- | [0,1327 | | 0,1895 | |
| |_CT_| | 0,8928 | | 0,8631 | | 0,9764 | | 0,8757 | |__- _| | 0,154 | |
| ГАМ | | 0,8599 | | 0,8064 | | 0,9322 | | 0,8273 | | 0,8569 | | - | |
Выявлено, что наименьшее генетическое расстояние были между породами манычский меринос — ставропольская (d=0,0237). Несколько большее генетическое удаление имели породы манычский и австралийский меринос (d=0,0702), грозненская — советский меринос (d=0,0741), грозненская — манычский меринос (d=0,0781). Еще большие генетические дистанции выявлены между животными пород советский меринос и кавказской, ставропольской, манычский меринос (d=0,103-0,138), а также между овцами пород кавказской, грозненской, манычского мериноса, — ставропольской (d=0,115-0,149).
Наибольшие генетические дистанции определены между австралийским мериносом и овцами ставропольской, кавказской пород и советского мериноса (4=0,151-0,189). Кластерный анализ показал, что кластер А (4=0,237)образовали наиболее генетически близкие породы — ставропольская и манычский меринос (рисунок 1).
Советский
меринос
Кавказская
Австралийский
меринос
Грозненская
Манычский
А | меринос
Ставропольская
0,14 0,12 0,10 0,08 0,06 0,04 0
Рисунок. | Дендрограмма генетических дистанций между тонкорунными породами овец Юга России
Кластер В (d=0,095) отражал генетическое расстояние между тонкорунной грозненской породой и породами входящими в кластер А. В кластере В (d=0,1032) нашли соприкосновение породы советский меринос и кавказская. Кластер Г (d=0,1252) объединил породы кластера В и породу австралийский меринос. Кластер D (d=0,1476) отражал точку соединения двух кластеров — Г, включающий ставропольскую, манычский меринос, грозненскую и породу австралийский меринос и кластер В, включающий породы кавказскую и советский меринос.
В теоретическом аспекте и для прикладной селекции важным моментом является выяснение точечных микроэволюционных процессов, происходящих за последнее время в популяциях тонкорунных пород.
