
С целью изучения генетических изменений в породах овец был проведен сравнительный анализ показателей генетических дистанций между ними в разные периоды. Установлено, что за десять лет произошло определенное генетическое сближение изученных пород (табл. 13).
Таблица 13. Индексы генетического сходства, генетические дистанции между тонкорунными породами овец
| Поро- | KA | | | [0,151 | | 0,149 | | 0,176 | 0,147 | 0,217 | 0,151 | |
| | MM | | 0,858 | 0,861 | - | | - | [0.052 | 0,023 | 0,062 | 0,070 | |
| |_ CT | | 0,838 | 0,863 | 0,948 | | 0,976| | - | - 10,116 | 0,154 | |
| | АМ | [0,804 | 0,806 | 0,939 | | 0,932 | | 0,889 | 0.856] - | - | |
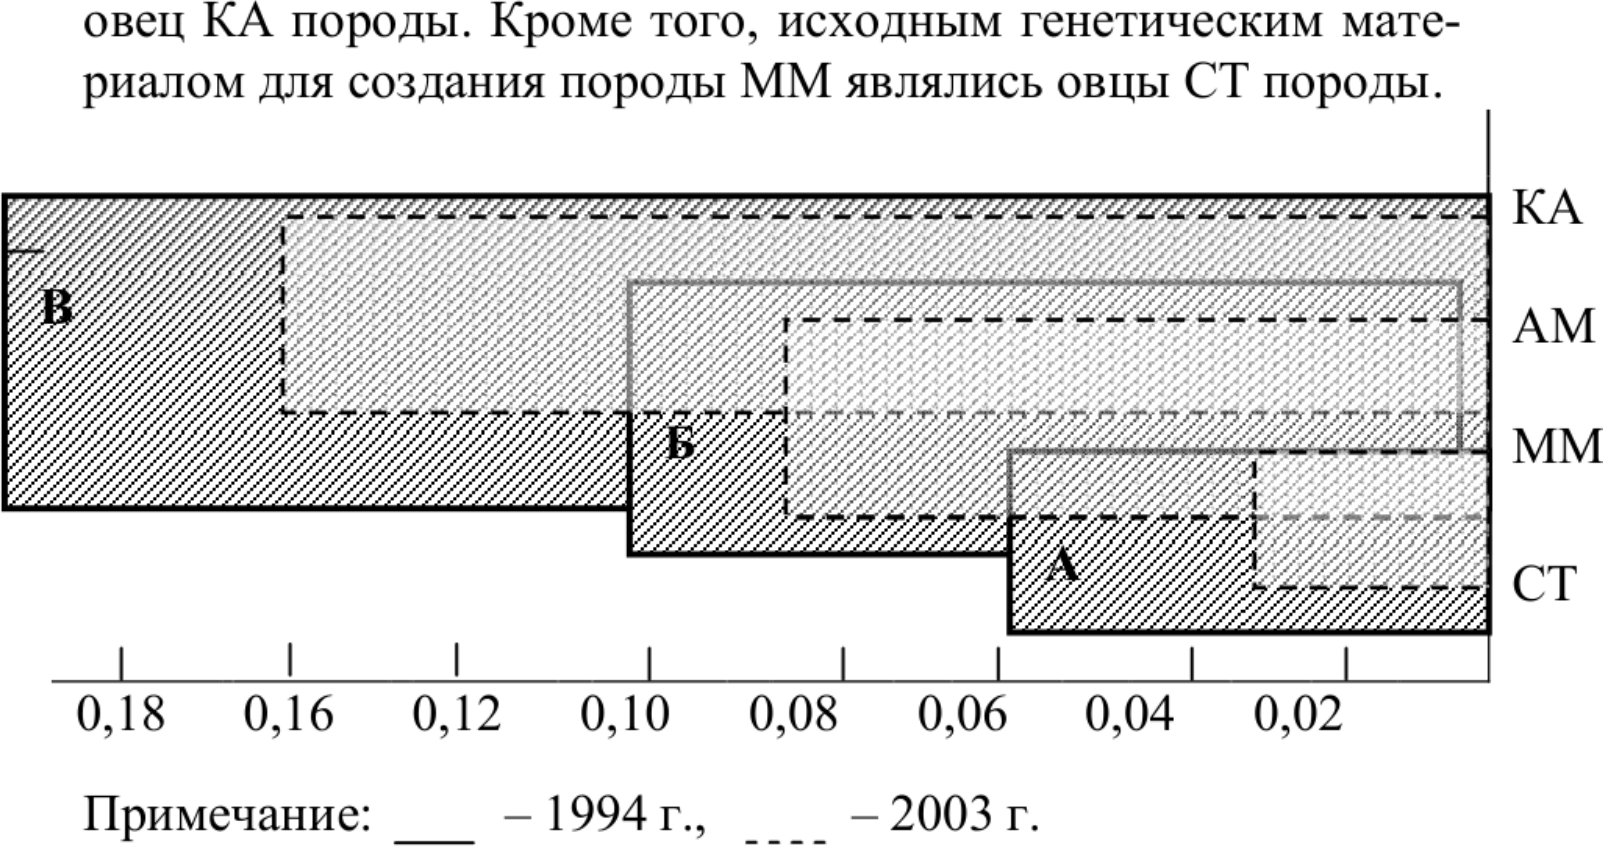
Tak, генетическая дистанция между породами CT и MM сократилась более чем в два раза (0,0237 в1994 году против 0,0529 в 2003 году); между породами СТ и КА -в 1,2 раза (0,1760 в1994 году против 0,1471 в 2003 году); между КА и АМ -в 1,4 раза (0,2178 в1994 году против 0,1518 в 2003 году) (рисунок 2).
Сравнение расположения изученных тонкорунных пород на дендрограммах, построенных по данным исследований 1994 и 2003 годов, показало, что оно было аналогичным. В 2003 году, как и в 1994, наибольшую генетическую близость проявляли породы СТ и ММ. Порода овец АМв разные периоды исследований была ближе к указанным породам, чем КА порода. Установленный факт, по-видимому, объясняется разной интенсивностью использования генофонда овец АМ в популяциях исследованных пород. В популяции овец ММ использование баранов АМ было значительно шире и более длительным (В.А. Мороз, 1992), чем в популяции
овец КА породы. Кроме того, исходным генетическим мате-
риалом для создания породы ММ являлись овцы СТ породы.
_ РРР КА
1/7 Uy V7 Yi РА РР ММ
РРРWM:7/7__
| |
0,18 0,16 0,12 0,10 0,08 0,06 0,04 0,02
Примечание: __ - 1994г., ___ — 2003 г.
Рисунок 2 Дендрограммы генетических дистанций между тонкорунными породами овец в 1994 и 2003 гг.
Процесс генетического сближения тонкорунных пород, по-видимому, с одной стороны, вызван длительной однонаправленной селекцией на повышение шерстной продуктивности мериносовых овец, при которой проводимый отбор животных схожих фенотипов неизбежно приводит к отбору животных схожих генотипов. С другой стороны, сокращение генетических расстояний между изучаемыми породами обусловлено длительным (более 25 лет) и интенсивным использованием генофонда породы австралийский меринос, что в определенной мере являлось составной частью проводимой селекции. Полагаем также, что изменения в распределении отдельных антигенных факторов в исследованных популяциях носят адаптивный характер или могут быть детерминированы дрейфом генов, кодирующих группы крови.
Генофонд полутонкорунных пород. Не меньший научный и практический интерес представляет изучение генетических особенностей полутонкорунных пород. Это в первую очередь относится к северокавказской и советской мясошерстным породам овец.
Северокавказская мясошерстная (CK) — одна из лучших пород комбинированного направления продуктивности. Выводилась путем скрещивания маток ставропольской породы с баранами импортных пород — линкольн и ромни-марш. Планомерно проводимая селекция и жесткий отбор позволили создать массив животных, характеризующихся крупным ростом, отличными мясными формами, длинной кроссбредной шерстью с правильной формой извитости и люстровым блеском. Репродуктором этой породы является ПЗ «Восток» Ставропольского края.
Генофонд овец северокавказской мясошерстной породы представлен антигенными факторами шести систем групп крови (рисунок 3).
ВА, С, и М системах групп крови определено по два эритроцитарных фактора. При этом антигены Аа и СЬ имели высокую частоту встречаемости, факторы Са и Mb - среднюю, антигены Ab и Ма — низкую.
Полиморфная система В — представлена шестью эритроцитарными антигенами, имеющими различную концентрацию. Факторы Bd, Bi и Bg имели высокую частоту встречаемости, детерминанты Ве и ВЬ выявлялись со средней, антиген Вс — с низкой. В системах О и R выявлено по одному антигену — Da и В, которые имели соответственно среднее и низкое распространение в данной породе.
